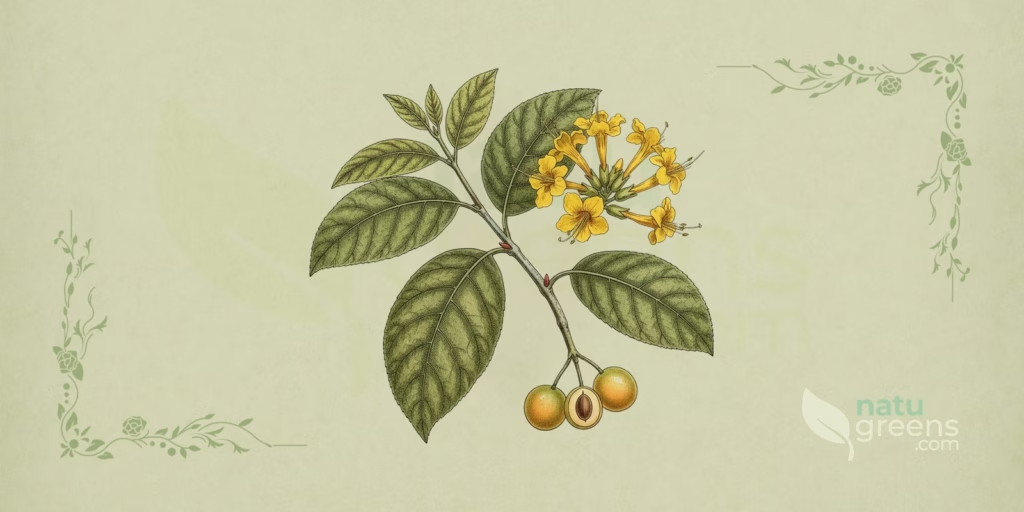
Cordia lutea är en kraftigt förgrenad buske eller ett litet träd i familjen Boraginaceae, igenkännlig på långt håll på de gula, trumpetformade blommorna som täcker kronan under stora delar av året. Arten upptar de torra lågländerna i västra Sydamerika, från Colombia till Peru, och når även Galápagosöarna, där den hör till de vanligaste hemmahörande växterna i den torra kustzonen. I de torra skogarna i nordvästra Peru är den ett strukturellt inslag i landskapet, och delar buskskiktet med algarrobo- och sapoteträd.
Det folkliga namnet varierar efter region. Muyuyo är den gängse formen i Ecuador och på Galápagos, medan overo och flor de overo används i norra Peru. På engelska fick växten trädgårdsnamnet yellow geiger, i motsats till orange geiger, som används för Cordia sebestena. Det finns inget etablerat svenskt namn för denna art, vilket gör det vetenskapliga namnet till den säkraste referensen för den som söker arten i plantskolor eller herbarier.
Det som gör Cordia lutea anmärkningsvärd sträcker sig bortom det prydnadsmässiga värdet. Den är en av få neotropiska Boraginaceae med ett väldokumenterat heterostylt fortplantningssystem, upprätthåller ett nätverk av dag- och nattaktiva pollinatörer på oceaniska öar fattiga på insekter, och ger frukter med ett fruktkött så slemmigt att andinska och kustnära samhällen använde det som lim. Denna profil samlar den formella taxonomin, den diagnostiska morfologin, ekologin i torra zoner, den beskrivande fytokemin och den historiska användningsregistreringen, utan någon rekommendation om nutida bruk. För ytterligare en grundlig botanisk profil på denna webbplats, se Camellia sinensis (grönt te).
Taxonomi
Cordia lutea tillhör Boraginaceae i den breda avgränsning som APG IV använder, inom underfamiljen Cordioideae. En del av litteraturen behandlar Cordiaceae som en egen familj, en ordning som inte förändrar artens relativa placering. Släktet Cordia omfattar några hundra pantropiska arter, med störst mångfald i Neotropen.
- Rike: Plantae
- Division: Tracheophyta (angiospermer)
- Klass: Magnoliopsida
- Ordning: Boraginales
- Familj: Boraginaceae Juss.
- Underfamilj: Cordioideae
- Släkte: Cordia L.
- Art: Cordia lutea Lam., 1791
Protologet publicerades i första bandet av Tableau encyclopédique et méthodique des trois règnes de la nature, Botanique, av Jean-Baptiste de Lamarck, på sidan 421, 1791. Registreringen finns i International Plant Names Index under identifikationsnummer 274993-2, och Plants of the World Online upprätthåller binomialet som accepterat namn, utan gällande förslag om omkombination.
Synonymin är lång, en spegling av de upprepade släktomorganiseringar som Boraginales genomgick under 1800- och 1900-talen. Plants of the World Online erkänner omkring ett dussin underordnade namn, däribland:
- Calyptracordia rotundifolia (Ruiz & Pav.) Friesen
- Coilanthera rotundifolia (Ruiz & Pav.) Raf.
- Cordia flava (Andersson) Gürke
- Cordia marchionica Drake
- Cordia rotundifolia Ruiz & Pav.
- Ectemis lutea (Lam.) Raf.
- Firensia lutea (Lam.) Raf.
- Gerascanthus luteus (Lam.) Borhidi
- Gerascanthus rotundifolius (Ruiz & Pav.) Friesen
- Lithocardium flavum (Andersson) Kuntze
- Lithocardium rotundifolium (Ruiz & Pav.) Kuntze
- Varronia flava Andersson
- Varronia rotundifolia (Ruiz & Pav.) A. DC.
En nomenklatorisk varning är på sin plats: i icke-specialiserade källor cirkulerar kombinationen Varronia lutea, tillskriven Borhidi, som inte motsvarar något giltigt publicerat namn för denna växt. Den rekombination av Borhidi som verkligen finns är Gerascanthus luteus.
Vad gäller etymologin hedrar släktnamnet Valerius Cordus (1515-1544), en tysk botaniker och farmaceut vars verk om materia medica cirkulerade i hela renässansens Europa. Epitetet kommer från det latinska luteus, gul, en direkt hänvisning till kronans färg, artens mest iögonfallande kännetecken i fält.
Morfologisk beskrivning av Cordia lutea
Det är en tätt förgrenad buske eller ett litet träd, mellan 2 och 8 meter högt, med öppen krona och utbredd växtform. Stammen överstiger sällan 20 centimeter i diameter och är vanligen krokig, täckt av grå, fint sprucken bark. Under de torraste årstiderna tappar växten en del av eller alla sina blad, ett lövfällande beteende som varierar efter nederbördsmönstret i varje population.
Blad
Bladen är strödda, enkla och utan stipler, fyra till tio centimeter långa. Konturen går från äggformad till nästan rund, med rundad till trubbig spets och fint tandad till knaggig kant. Ovansidan är sträv att röra vid och nästan glatt, medan undersidan bär hår fördelade längs huvudnerven och bladskivan. Bladskaftet är kort, vilket ger den lövade grenen ett kompakt intryck sett uppifrån.
Blommor
Blommorna uppstår i toppställda kvastar och koncentrerar artens fulla diagnostiska värde. Fodret är cylindriskt, omkring 10 millimeter långt och 5 till 7 millimeter brett, längsgående strimmigt och kvarsittande. Kronan är sammanvuxen, levande gul, trumpetformad, och mäter 2 till 4 centimeter i diameter vid svalget, med fem till åtta utspridda flikar. Ståndarna varierar också från fem till åtta och sitter i röret. Doften är sötaktig och märkbar på kort avstånd.
Arten är heterostyl, med två blomformer fördelade på olika individer. Den ena har lång pistill och lågt sittande ståndarknappar, den andra kombinerar kort pistill med högt sittande ståndarknappar. Denna ömsesidiga arkitektur gynnar överföring av pollen mellan komplementära former, och pollineringsförsök visar markant högre fruktsättning vid korsningar mellan legitima former.
Frukter och frön
Frukten är en klotformad stenfrukt på 8 till 12 millimeter i diameter, vit och genomskinlig vid mognad, sittande vid basen på det kvarsittande fodret, som förblir grönt och strimmigt. Fruktköttet är rikligt slemmigt och fäster lätt vid ytor, en egenskap med direkta ekologiska konsekvenser. Smaken börjar behagligt söt och övergår till bitter inom några sekunder. Varje frukt hyser ett till fyra frön skyddade av en hård endokarp.
Stjälk och rot
Stjälkarna är långa, smala och upprätta, med unga, hårbeklädda grenar som förlorar behåringen vid förvedning. Den grå barken lossnar i tunna flagor hos äldre exemplar. Växten skjuter lätt nya skott från basen och slår rot från förvedade sticklingar, en egenskap som länge har utnyttjats för att anlägga levande häckar i de torra zonerna i Ecuador och Peru.
Utbredning och habitat
Det hemmahörande arealet täcker västra Sydamerika och omfattar Colombia, det kontinentala Ecuador, det insulära Ecuador på Galápagosöarna och Peru. På peruanskt territorium följer arten Stillahavskustlinjen och de torra interandinska dalarna, och ingår i de torra skogarna i Tumbes, Piura och Lambayeque. På Galápagos betraktas den som hemmahörande och upptar den torra zonen i lågländerna, med stark närvaro nära kustlinjen.
Utanför det naturliga arealet har Cordia lutea introducerats på Hawaii och Marquesasöarna. På ön Hawaii är den registrerad som förvildad, och den riskbedömning för invasivitet som tillämpats på ögruppen gav arten en låg poäng, utan dokumenterad negativ påverkan utanför det ursprungliga utbredningsområdet hittills. Detta resultat kontrasterar mot beteendet hos andra arter av släktet på öar i Stilla havet, vilket förstärker behovet av fortsatt övervakning.
Det karakteristiska biomet är det säsongstorra tropiska biomet. Populationerna sträcker sig från havsnivå till omkring 1500 meter, med punktvisa registreringar på högre höjder i de interandinska dalarna. Växten trivs vid låg nederbördsmängd och tål långa perioder utan regn, och beter sig som en fakultativ xerofyt som snabbt reagerar på nederbördsimpulser. Vad gäller substrat förekommer den på sandiga jordar, på svällande lera från tidigare fuktiga flodbäddar och på mark med förhöjd salthalt, en tolerans som är ovanlig bland prydnadsträd med iögonfallande blomning.
Odling
Förökning sker genom frön och genom sticklingar, och båda vägarna används i restaureringsplantskolor i Ecuador och Peru. Fröna uppvisar vila kopplad till den hårda endokarpen och slemmet som omger frukten, så noggrann rengöring av fruktköttet är det första steget för varje parti. Mekanisk skarifiering och behandling med gibberellinsyra nämns i litteraturen som medel för att jämna ut groningen, och peruanska försök visar att passage genom matsmältningskanalen hos naturliga spridare också förändrar fröernas groningsrespons.
Sticklingsförökning är den mest direkta vägen för produktion i stor skala. Försök utförda i provinsen Santa Elena, på den ecuadorianska kusten, visar tillfredsställande rotfästning hos sticklingar även utan användning av rotningsmedel, med resultat som stöder användningen av arten i foderodlingar och levande häckar. Det förvedade materialet reagerar väl, och skottbildningstätheten är vanligtvis hög.
I fält kräver växten fullt solljus och väldränerad jord. Den tål långvarig torka, salthalt och fattiga jordar, men tål inte frost, vilket begränsar odlingen till tropiska och subtropiska regioner utan risk för minusgrader. Sparsam bevattning räcker efter etablering, och överskott av fukt i substratet är det vanligaste felet i plantskolan.
Registreringarna av specifika skadedjur är få. På Hawaii har arten identifierats som alternativ värdväxt för lobatasköldlusen, vilket har medfört växtskyddsmässig uppmärksamhet i ögruppens prydnadsplanteringar. Sköldlöss uppträder i allmänhet på grenarna när ventilationen är otillräcklig. Skörden av frukter sker när stenfrukten uppnår den vita, genomskinliga färgen och fruktköttet mjuknar, tidpunkten då fröna redan är mogna och extraktionen är enklare.
Fenologi
Den årliga cykeln följdes i detalj i Reserva Ecológica Privada Chaparrí, i Chongoyape, Lambayeque, mellan juli 2004 och juni 2005. Den vegetativa utvecklingen sker under hela året och når sin topp mellan februari och april, med värden nära 60 procent. Skottbildningen koncentreras mellan januari och juni, med ett maximum på omkring 20 procent i januari och februari. Blomningen dominerar från december till juni, likaså kring 20 procent i genomsnitt, medan fruktsättningen fördelas över hela året och når sitt maximum på 14 procent i augusti, med gröna och mogna frukter på samma planta. Temperaturen visade sig korrelerad med alla tre faserna.
Pollineringen kombinerar dag- och nattaktiva agenter. Timmerbin är de mest effektiva dagbesökarna, och på Galápagos fylls denna roll av Xylocopa darwini, ögruppens enda hemmahörande bi och en extrem generalist i de lokala pollineringsnätverken. På natten tillkommer nattfjärilarna, som visade sig mer effektiva vid pollenöverföring mellan olika växter. Korsningssystemet är blandat, med relativt låg fruktproduktion till följd av kombinationen av självpollinering och korspollinering i en miljö med få tillgängliga insekter.
Spridningen är övervägande zookor. Fåglar och lavaödlor äter frukterna på Galápagos, och det klibbiga fruktköttet fäster vid kroppen hos stora djur, däribland jättesköldpaddor och sjöfåglar, vilket öppnar en extra epizookor transportväg. I norra Peru äter sechurauträven, Lycalopex sechurae, frukterna och hör till de dokumenterade spridarna av arten i torrskogen.
Släktingar och förväxlingar
Inom släktet löser kronans färg och fruktens utseende de flesta tveksamheter. Tre släktingar koncentrerar de vanligaste förväxlingarna i samlingar och trädgårdsodling:
- Cordia sebestena L.: orangeröd krona, inte gul, och större, mer läderartade blad. Det är arten som bär trädgårdsnamnet orange geiger, och som förekommer naturligt i Karibien.
- Cordia sinensis Lam.: små, krämgula blommor, med frukter som mognar i nyanser från orange till rött, i motsats till den genomskinligt vita färgen hos Cordia lutea. Afroasiatisk utbredning, med en analog ekologisk roll i torra zoner.
- Cordia subcordata Lam.: orange krona, hjärtformade blad av större storlek och förvedad frukt med flytande endokarp anpassad för havsspridning. Förekommer på öarna i Stilla havet och Indiska oceanen, där den kan samexistera med introducerade populationer av Cordia lutea.
Utanför Boraginaceae gäller den vanligaste förväxlingen Tecoma stans (L.) Juss. ex Kunth, från familjen Bignoniaceae, som uppvisar gula, rörformade blommor med liknande utseende på avstånd. Åtskillnaden är omedelbar utifrån bladen, sammansatta och oparigt pinnade hos Tecoma stans och enkla hos Cordia lutea, och utifrån frukten, en avlång, linjär kapsel som inte har något att göra med den vita stenfrukten hos Boraginaceae.
En identifieringsvarning förtjänar att nämnas. Boraginaceae samlar släkten som ansamlar levertoxiska pyrrolizidinalkaloider, däribland Echium, Heliotropium och Symphytum. Sterilt vegetativt material av Boraginaceae är svårt att bestämma med säkerhet, och insamlingar utan blomma eller frukt tillåter inte att man med säkerhet skiljer Cordia lutea från dessa grannar.
Fytokemi
Den bäst karakteriserade kemiska profilen är blommornas. En preliminär fytokemisk utvärdering utförd med material från Otuzco, i Peru, identifierade fenolföreningar, leukoantocyanidiner och flavonoider som de dominerande klasserna i de metanoliska och etanoliska extrakten erhållna genom återflöde. Kvantifieringen genom högtrycksvätskekromatografi registrerade 60,63 milligram rutin och 0,558 milligram kvercetin per gram torrt provmaterial, vilket gör rutin till den dominerande flavonoiden med bred marginal.
En tidigare undersökning av den kemiska sammansättningen, citerad i samma arbete, fann fraktioner av rutin och kvercetin av samma procentuella storleksordning och registrerade fettsyror bland beståndsdelarna, med linolsyra, palmitinsyra och glycerylhexadekanoat i halter nära 0,1 procent. Analys genom gaskromatografi kopplad till masspektrometri av det etanoliska blomextraktet registrerade dessutom butylestrar av långkedjiga fettsyror och gibberellinsyra.
Samma undersökning påvisade inga pyrrolizidinalkaloider i de analyserade blommorna. Fyndet är anmärkningsvärt eftersom denna grupp av metaboliter är vanlig i Boraginaceae, och frånvaron i ett prov sträcker sig inte automatiskt till andra populationer, andra växtdelar eller andra fenologiska faser.
I frukterna är den dominerande komponenten slemmet, ett polysackaridkomplex ansvarigt för fruktköttets viskösa och klibbiga konsistens. Det är denna fraktion som ger den mogna frukten förmågan att fästa vid ytor, och som stödde den historiska användning som beskrivs nedan. Barken och bladen koncentrerar fenolföreningar, utan att det finns en lika detaljerad kvantitativ karakterisering för dem som för blommorna.
Historia och etnobotanik
Lamarck beskrev formellt arten 1791 utifrån sydamerikanskt material, i en tid då de peruanska samlingarna från Ruiz och Pavón försåg de europeiska herbarierna. Inte av en slump hamnade namnet Cordia rotundifolia, publicerat av dessa två spanska botaniker, i synonymin till Lamarcks binomial.
De mest karakteristiska användningsregistreringarna för växten har inget medicinskt med sig. Fruktens slem användes som papperslim och som hårfixativ av ecuadorianska samhällen, en tillämpning som på senare år åter har studerats som kosmetisk råvara vid Universidad Politécnica Salesiana. Träet användes till att bygga båtar, kanoter och enkla strukturer i kustsamhällena. Vid Ecuadors kust införlivades arten i fodersystem, och utnyttjade den lövtäthet den uppnår, och över hela utbredningsområdet planterade jordbrukarna den som levande häck och fällde den för ved. Den mogna frukten åts rå som vild frukt, även om den efterföljande bitterheten begränsade aptiten på den.
Etnobotaniska undersökningar utförda i Peru mellan 1990- och 2000-talen, däribland studien genomförd i provinsen Canta, i Lima, registrerade Cordia lutea bland växterna som ingick i det hemmavarande repertoaren hos de andinska och kustnära samhällena. Dessa inventeringar dokumenterar det kulturella minne som är knutet till arten och utgör inte någon form av rekommendation. På Galápagos förekommer växten i de historiska förteckningarna över nyttoväxter från ögruppens tidigaste bosättningar, huvudsakligen på grund av frukten och träet.
Bevarande
Cordia lutea bedömdes på IUCN:s rödlista och klassificerades som Livskraftig, i bedömningen från 2019 utförd inom ramen för Global Tree Specialist Group. Motiveringen bygger på den breda utbredningen, den talrika populationen och frånvaron av relevanta hot identifierade för arten i hela dess utbredningsområde. Den förekommer inte i något av CITES bilagor.
Den lugnande läsningen av den individuella statusen bör inte dölja sårbarheten i miljön där växten lever. De torra skogarna i nordvästra Peru och de torra kustsnåren i Ecuador hör till de mest fragmenterade ekosystemen i Sydamerika, pressade av jordbruksexpansion, vedutvinning och getbete. Arten används ofta i program för återställande av degraderad mark i de torra zonerna i båda länderna, just på grund av den lätta förökningen och toleransen för svåra jordar.
Det finns dessutom en indirekt bevarandedimension. I Chaparrí ingår Cordia lutea i den grupp av arter som förser den vitvingade guanen, Penelope albipennis, en endemisk fågel från norra Peru och en av de mest hotade på kontinenten, med föda. Fenologiska studier av denna diet utformades just för att förstå den säsongsbetonade tillgången på resurser för fågeln, vilket ger växten en funktionell roll som överskrider dess egen hotkategori.
Kuriosa
- Arten är distyl: det finns individer med lång pistill och lågt sittande ståndarknappar och individer med den motsatta ordningen, och fruktsättningen är endast robust när pollen färdas mellan de två komplementära typerna.
- Nattfjärilar överträffar bin i pollenöverföring mellan olika växter, ett kontraintuitivt resultat för en gul, iögonfallande och under dagen doftande blomma.
- Fruktköttet är så klibbigt att det har tjänat som papperslim och som hårfixativ, och det utforskas fortfarande som kosmetisk råvara.
- På Galápagos minerar fjärilen Bucculatrix cordiaella bladen, vars artnamn direkt syftar på värdväxten.
- I den engelskspråkiga handeln med prydnadsväxter är arten yellow geiger, som bildar par med orange geiger, namnet som ges åt Cordia sebestena.
Observera: detta innehåll är informativt och ersätter inte professionell medicinsk rådgivning. Rådgör med läkare eller fytoterapeut innan du använder medicinalväxter, särskilt under graviditet, amning eller vid medicinering.
Referenser och vetenskapliga studier
Se Alla 10 Citerade Källor
- Charles Darwin Foundation. Galapagos Species Checklist: Cordia lutea Lam. Fundación Charles Darwin, Puerto Ayora, Ecuador.
- 2007 De la Cruz, H.; Vilcapoma, G.; Zevallos, P. A. Ethnobotanical study of medicinal plants used by the Andean people of Canta, Lima, Peru. Journal of Ethnopharmacology, 111(2), 2007.
- International Plant Names Index. Cordia lutea Lam., Tabl. Encycl. 1: 421 (1791), ID 274993-2. Royal Botanic Gardens Kew, Harvard University Herbaria e Australian National Botanic Gardens.
- 2019 IUCN. The IUCN Red List of Threatened Species: Cordia lutea. Bedömning från 2019, Global Tree Specialist Group.
- Lamarck, J.-B. Tableau encyclopédique et méthodique des trois règnes de la nature. Botanique, vol. 1, p. 421. Paris, 1791.
- 2008 Martos, J. R.; Scarpati, M.; Rojas, C.; Delgado, G. E. Fenología de algunas especies que son alimento para la pava aliblanca Penelope albipennis. Revista Peruana de Biología, 15(2), 2008.
- 1999 McMullen, C. K. Flowering Plants of the Galápagos. Cornell University Press, Ithaca, 1999.
- 2011 McMullen, C. K. Pollination of the heterostylous Galápagos native Cordia lutea (Boraginaceae). Plant Systematics and Evolution, 2011.
- Plants of the World Online. Cordia lutea Lam. Royal Botanic Gardens Kew, London.
- 2019 Venegas Casanova, E. A.; Gómez Alva, A. M.; Chávez León, A. N.; Valdiviezo Campos, J. E.; Ormeño Llanos, M.; Vásquez Corales, E. Evaluación fitoquímica preliminar del extracto metanólico y etanólico de las flores de Cordia lutea Lam. (Boraginaceae) y su capacidad antioxidante. Arnaldoa, 26(1): 359-368, 2019.