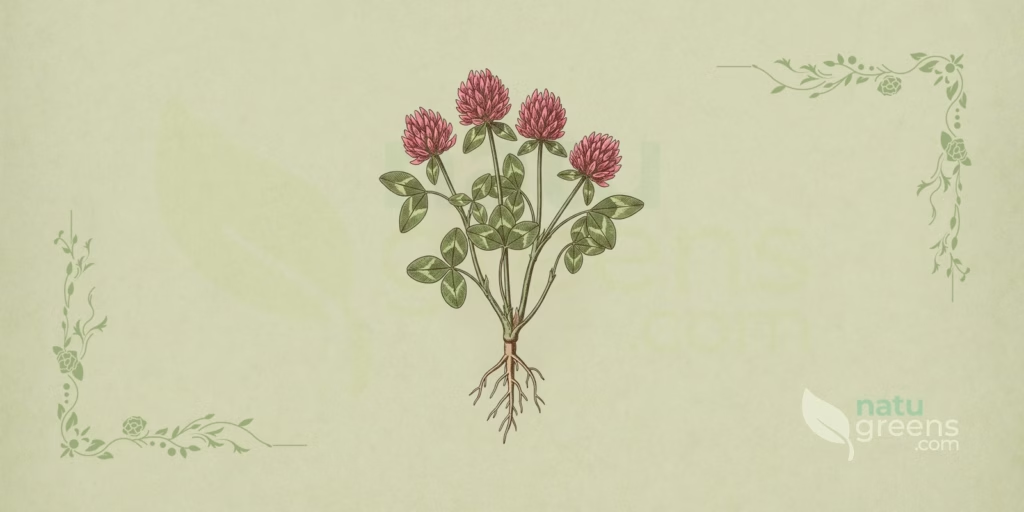
Rödklöver är en ört av blygsam storlek som intar en oproportionerligt stor plats i jordbrukshistorien på norra halvklotet. Vetenskapligt beskriven som Trifolium pratense L., tillhör den Fabaceae, ärtväxtfamiljen, som omfattar bönan, sojabönan, lusern och omkring tjugo tusen arter fördelade på alla kontinenter utom Antarktis. Inom denna enorma familj räknar släktet Trifolium omkring 250 arter, nästan alla från tempererade klimat, och rödklöver är den som täcker mest markyta efter vitklöver.
Den inhemska utbredningen täcker Makaronesien, nordvästra Afrika och ett sammanhängande bälte som sträcker sig från Västeuropa till Mongoliet och Himalayas sluttningar. Från 1600-talet tog kolonisatörer och fröhandelsföretag med sig arten till Amerika, Oceanien, Sydafrika och den yttersta nordatlantiska regionen, där den lätt naturaliserades på betesmarker, vägkanter och övergivna åkrar.
Det som gör växten anmärkningsvärd är inte utseendet, även om de klotformade, rosa-magentafärgade blomhuvudena är omisskännliga på en äng i juni. Det är roten. Knölarna som bildas på sidorötterna hyser bakterier av släktet Rhizobium, som kan omvandla atmosfäriskt kväve till upptagbar ammoniak, och det var denna förmåga, långt innan någon förstod biokemin bakom den, som gjorde rödklöver till en central del av det växelbruk som förvandlade det europeiska jordbruket mellan 1500- och 1700-talen.
Taxonomi hos släktet Trifolium
Det accepterade namnet är Trifolium pratense L., publicerat av Carl von Linné i Species Plantarum 1753 och bekräftat i International Plant Names Index under familjen Leguminosae, ett bevarat nomenklatoriskt synonym till Fabaceae. Den fullständiga hierarkiska klassificeringen följer nedan.
- Rike: Plantae
- Division: Magnoliophyta
- Klass: Magnoliopsida
- Ordning: Fabales
- Familj: Fabaceae (Leguminosae)
- Underfamilj: Faboideae (Papilionoideae)
- Tribus: Trifolieae
- Släkte: Trifolium Tourn. ex L.
- Art: Trifolium pratense L., 1753
Synonymer och infraspecifika taxa
Artens synonymi är ganska omfattande, även om en stor del av den idag är kopplad till den typiska underarten, Trifolium pratense subsp. pratense. Bland namn som behandlas som synonymer i Kews databaser finns följande.
- Trifolium microphyllum Desv.
- Trifolium pratense var. frigidum Gaudin
- Trifolium pratense var. sativum Afzel.
- Trifolium pratense var. variegatum M.Y.Liu & F.C.Wang
- Trifolium seravschanicum Ovcz.
IPNI registrerar över tjugo infraspecifika epitet publicerade under detta binomial, bland underarter, varieteter och former, vilket återspeglar mindre en verklig mångfald och mer den besatta uppmärksamhet europeiska botanister och förädlare ägnade växten under två århundraden. Taxa som subsp. baeticum (Boiss.) C.Vicioso, subsp. nivale (Sieber ex W.D.J.Koch) Ces. och subsp. kotulae (Pawl.) Soják beskriver berg- eller medelhavspopulationer med varierande acceptans beroende på vilken flora som konsulteras.
Etymologi
Släktnamnet kombinerar de latinska elementen tres, tre, och folium, blad, som en direkt hänvisning till det sammansatta bladet med tre småblad som definierar nästan hela släktet. Epitetet pratense kommer från pratum, äng, och betyder bokstavligen ”som växer på ängar”, en habitatbeskrivning Linné tillämpade på dussintals ängsarter. På svenska är det mest spridda namnet rödklöver.
Morfologisk beskrivning
Det är en kortlivad flerårig ört, vanligtvis mellan två och fem år, med en höjd från 20 till 80 centimeter beroende på agronomisk typ och jordförhållanden. Växtsättet går från upprätt till halvliggande, och de uppstigande stjälkarna förgrenar sig från basen, ofta täckta av fin behåring. Växten bildar en förvedad krona vid markytan, en struktur varifrån nya skott utgår varje säsong och vars hälsa i hög grad avgör hur många år individen överlever.
Blad
Bladen är strödda och trefingrade, med hinnartade basala stipler sammanvuxna med bladskaftet och en broddspets i toppen som slutar i en fin spets. Småbladen mäter 1,5 till 4 centimeter i längd och 1 till 2,5 centimeter i bredd, med äggformad till elliptisk form och hel eller finsågad kant. Bladskaftet är långt på de basala bladen, upp till 10 centimeter, och blir successivt kortare mot stjälkens topp.
Det mest användbara diagnostiska kännetecknet i fält är den ljusa, ibland vitaktiga V-formade fläcken som markerar mitten av varje småblad. Den förekommer hos de flesta individer, men inte alla, och dess frånvaro utesluter inte identifieringen. Anliggande behåring täcker båda sidor av bladskivan, vilket ger helheten en lätt sammetsartad struktur vid beröring.
Blommor
Blomställningen är ett klotformat till äggformat, terminalt huvud, med en diameter på 2 till 3 centimeter, som samlar 20 till 100 enskilda blommor på en kort blombotten. Varje blomma mäter 12 till 18 millimeter och har den fjärilslika krona som är typisk för underfamiljen, med fana, två vingar och köl. Färgen dominerar synfältet: intensivt rosa-röd till magenta, med sällsynta albinoformer med vit eller kräm krona. Fodret är rörformigt, hårigt, och slutar i fem ojämna tänder som sitter kvar efter blomningen.
Nektarn samlas i botten av blomröret, på ett djup som de flesta honungsbin inte når. Denna geometri förklarar varför effektiv pollinering är beroende av insekter med lång snabel, framför allt humlor av släktet Bombus, och varför kommersiell fröproduktion i områden utan robusta humlepopulationer ofta är problematisk.
Frukter och frön
Frukten är en liten balja, 3 till 4 millimeter, hinnartad, med lock, och helt dold av det kvarsittande fodret fram till mognad. Varje balja innehåller ett frö, sällan två, njurformat och 1,5 till 2,5 millimeter långt. Fröna är gulgröna när de är färska och mörknar till nyanser av honungsgult till ljusbrunt under lagring, en färgförändring som producenter använder som en ungefärlig indikator på partiets ålder.
Spridningen är huvudsakligen gravitationsbaserad: det torra fodret öppnar sig och fröet faller kort avstånd från moderplantan. Spridning över långa avstånd har för denna art historiskt varit ett verk av flockar och fröhandel, inte av egna morfologiska anpassningar.
Rot och stjälk
Roten är pålrotad och robust, och når 60 till 150 centimeters djup i lös, djup jord, vilket ger växten en större torktolerans än vitklöver. Längs sidorötterna bildas runda knölar, rosa till färgen när aktiva, bebodda av kvävefixerande bakterier från komplexet Rhizobium leguminosarum biovar trifolii. Stjälkarna är cylindriska, ihåliga i de längsta internoderna och täckta av anliggande hår, och utgår från en basal krona som successivt förvedas med åldern.
Utbredning och habitat
Det inhemska område som erkänns av Plants of the World Online täcker Makaronesien, nordvästra Afrika och ett sammanhängande block som sträcker sig från Europa till Mongoliet och når söderut till norra Indien och Himalayas sluttningar. Inom detta territorium upptar arten ängar på medelhöjd, gläntor i lövskog, vattendragsstränder och störda områden med rimligt bördig jord.
Introduktionen utanför det inhemska området följde expansionen av den europeiska djurhållningen. Arten är idag naturaliserad i stora delar av Nordamerika, den sydamerikanska sydkonen, Nya Zeeland, sydöstra Australien, Sydafrika, Island och Grönland. I Sverige är arten inhemsk och vanlig på ängar och betesmarker samt odlad som foderväxt och gröngödsling.
Det klimatiska optimumet ligger mellan 15 och 25 grader Celsius, med en årlig nederbörd på 600 till 1 200 millimeter väl fördelad över cykeln. Växten tål kraftig frost i vila, vilket placerar den bekvämt i zon 4 till 8 i USDA-systemet, men lider under långa varma, torra somrar. Vad gäller jorden föredrar den bördiga, djupa och väldränerade substrat, med ett pH mellan 6,0 och 7,5, och reagerar dåligt på markant surhet under 5,5. Höjdutbredningen sträcker sig från havsnivå till omkring 2 500 meter i Alperna och Anderna.
Vad gäller invasivitet klassificeras rödklöver som naturaliserad och tillfälligt ruderal, men förekommer inte bland de invasiva arterna med hög påverkan i de flesta riskbedömningssystem. Den begränsade konkurrensförmågan i naturliga miljöer och beroendet av specifika pollinatörer hjälper till att förklara detta relativt återhållsamma beteende.
Odling
Förökning sker uteslutande genom frö, sått bredkastat eller i rader på en till två centimeters djup. I jordar utan odlingshistoria av Trifolium är förhandsympning av fröna med kompatibla Rhizobium-stammar praktiskt taget obligatorisk, annars utvecklar grödan aldrig en effektiv noduleringen. Groningen sker mellan fem och tio dagar vid lämplig temperatur, och den inledande etableringen är den mest sårbara perioden av cykeln.
Näringskraven har en karakteristisk asymmetri: kvävegödsling är onödig, eftersom symbiosen täcker behovet, men responsen på fosfor och kalium är stark och kalkning är vanligtvis nödvändig för att korrigera surheten. Full belysning är ett krav, eftersom arten tål betydande skuggning dåligt. Blandodling med fleråriga gräs, som Dactylis glomerata, Lolium perenne och Phleum pratense, är den vanligaste praxisen på blandade betesmarker.
Bland skadegörarna orsakar vivlarna av släktet Hypera avlövning i grödor avsedda för hö, bladlössen Acyrthosiphon pisum och Therioaphis trifolii orsakar direkt skada och överför virus, och nematoden Ditylenchus dipsaci deformerar och svullnar stjälkarna. På sjukdomssidan är antraknos orsakad av Kabatiella caulivora huvudansvarig för förtida plantdöd, följt av kronröta från Sclerotinia trifoliorum under kalla, fuktiga vintrar, mjöldagg från Erysiphe trifoliorum och virus från klövermosaikkomplexet.
Skörden för hö sker vid blomningens början, med 10 till 25 procent av huvudena öppna, den punkt där balansen mellan massa och näringskvalitet är mest gynnsam. Beståndets varaktighet är två till tre år under intensiv slåtter och når fyra till fem år under måttlig betning, varefter återsådd blir nödvändig.
Fenologi
Blomningen koncentreras mellan maj och september på norra halvklotet och mellan oktober och mars på södra halvklotet, med en kulmen i tidig sommar. Tidiga typer blommar först och tillåter två till tre skördar per säsong; sena typer, högre och mer långlivade, blommar senare och ger en eller två skördar.
Pollineringen är entomofil och starkt beroende av humlor av släktet Bombus, vars snabel når nektarn i botten av blomröret. Apis mellifera besöker huvudena, men med minskad effektivitet, och samlar vanligtvis mer pollen än nektar. Arten är övervägande korspollinerande och uppvisar gametofytisk självinkompatibilitet, vilket innebär att frösättning beror på effektiv korspollinering.
Fruktsättningen följer blomningen med tre till fem veckors mellanrum, och fröna mognar inuti det kvarsittande fodret. Spridningen är gravitationsbaserad och kortdistans, kompletterad av tillfällig transport genom djur och jordbruksmaskiner. En del av fröna uppvisar fysisk vila på grund av ett ogenomträngligt fröskal, en mekanism som sprider groningen över flera säsonger och bildar en varaktig fröbank i jorden.
Släkta arter och förväxlingar
Släktet Trifolium är stort och morfologiskt sammanhängande, varför förväxlingar i fält är vanliga. De mest användbara särskiljningspunkterna framgår nedan, i förhållande till de vanligast inblandade arterna.
- Trifolium hybridum L. (alsikeklöver): vitrosa krona istället för magenta, tunnare och glatta stjälkar, småblad utan V-fläck och utan tydliga småbladsskaft.
- Trifolium incarnatum L. (blodklöver): cylindriskt och avlångt huvud, inte klotformat, karminröda blommor och tät, mjuk behåring över hela växten; ettårig cykel.
- Trifolium medium L. (skogsklöver): den allvarligaste förväxlingen, på grund av allmän likhet i växtsätt och färg. Skiljs genom sicksackformade stjälkar, smalare småblad, linjeformade istället för triangulära stipler och frånvaro av V-fläcken.
- Trifolium repens L. (vitklöver): utlöparaktigt, krypande växtsätt, vit krona, mycket långa bladskaft som utgår direkt från rotade utlöpare vid noderna.
Det finns inga farliga dubbelgångare i strikt mening för denna art, eftersom övriga trefingrade Fabaceae som förekommer i samma miljöer, som Medicago och Melilotus, har klasformiga blomställningar som lätt skiljs från rödklöverns kompakta huvuden.
Fytokemi
Den kemiska profilen hos Trifolium pratense domineras av isoflavoner, en flavonoidklass karakteristisk för Fabaceae. Blomställningarna och de unga bladen koncentrerar formononetin och biochanin A som huvudkomponenter, åtföljda av daidzein och genistein i mindre andel, både som aglykoner och som glykosider och malonylglykosider. Halten varierar med det fenologiska stadiet, genotypen och odlingsförhållandena, och tenderar att vara högre i unga ovanjordiska vävnader än i mogna stjälkar.
Vid sidan av isoflavonerna förekommer kumestrol, en kumestan vars koncentration är låg i frisk vävnad och ökar i material utsatt för svampstress eller mekanisk skada. Växten ackumulerar dessutom fenolsyror, särskilt klorogensyra och derivat av koffeinsyra, glykosylerade flavonoler som kvercetin och kämpferol, triterpena saponiner och tanniner i blygsam mängd, betydligt lägre än vad som observeras hos andra foderbaljväxter.
Proteinandelen av torrsubstansen ligger mellan 15 och 20 procent i hela växten under full vegetativ utveckling, ett värde som understödjer det agronomiska intresset för arten som foder. Roten upprepar däremot inte den ovanjordiska delens isoflavonprofil och koncentrerar främst reservkolhydrater.
Toxicitet
Frisk växtvävnad anses inte vara toxisk för nötkreatur under normala betesförhållanden. Den dokumenterade risken kommer utifrån växten: svampen Slafractonia leguminicola, orsaken till klöverns svarta fläcksjuka, infekterar bladverket under kalla, fuktiga perioder och producerar slaframin, en indolizidinalkaloid som motstår torkning och förblir aktiv i hö som lagrats under långa perioder. Djur som äter kontaminerat foder uppvisar kraftig salivering, tårflöde, diarré och frekvent urinering några timmar efter intag, en bild beskriven i den engelskspråkiga veterinärlitteraturen som slobbers. Hästar är särskilt känsliga, och nötkreatur påverkas också. Hö från andra skörden producerad under regniga år utgör den största risken, och fall av sekundär fotosensibilisering kopplade till konsumtion av infekterad klöver finns också registrerade i veterinärlitteraturen.
Historia och etnobotanik
Den äldsta skriftliga registreringen av rödklöver som foder finns hos romerska författare från det första århundradet, bland dem Plinius den äldre, som nämnde ängsbaljväxter använda som foder till arbetsdjur. Den systematiska odlingen är dock betydligt senare: den började i Nederländerna och på Iberiska halvön omkring 1400-talet och nådde England och Nordeuropa under 1600- och 1700-talen.
Denna sena spridning fick enorma konsekvenser. Introduktionen av rödklöver i det så kallade Norfolksystemet, tillsammans med foderrova och fleråriga gräs, gjorde det möjligt att eliminera träda och upprätthålla större flockar under vintern, och pekas ut av jordbrukshistoriker som en av drivkrafterna bakom den brittiska jordbruksrevolutionen. Tidens bönder visste bara att jorden ”vilade” bättre med klöver; mekanismen för biologisk kvävefixering demonstrerades först 1888 av Hermann Hellriegel och Hermann Wilfarth.
Inom det etnobotaniska fältet registrerar europeiska herbarier och örtaböcker från 1500- till 1800-talen att healare och apotekare använde de torkade blomställningarna mot luftvägsbesvär och hudirritationer, och att bönder i olika delar av Centraleuropa använde den färska växten i hemgjorda omslag. Samhällen på Brittiska öarna och i Skandinavien malde frön och torkade huvuden som mjölutfyllnad under bristår, en praxis dokumenterad i hungersnödsberättelser från 1800-talet. Nordamerikas ursprungsbefolkningar tog upp arten i sin lokala repertoar efter den europeiska introduktionen, och etnografiska registreringar från 1800-talet beskriver konsumtion av huvudena bland grupper från de stora slätterna. Alla dessa är historiska registreringar av tidigare praxis, utan koppling till någon nuvarande rekommendation.
Bevarande
Trifolium pratense har bedömts av Internationella naturvårdsunionen och förekommer i kategorin Livskraftig (LC), i linje med ett enormt utbredningsområde, talrika populationer och ingen påvisbar nedgång på global nivå. Arten förekommer inte i något av CITES bilagor.
De relevanta hoten är lokala och indirekta. Jordbruksintensifieringen har minskat arealen av halvnaturliga ängar i Västeuropa, och därmed den genetiska mångfalden hos vilda populationer, medan ersättandet av blandade betesmarker med fodermonokulturer har minskat nektartillgången för långtungade humlor. Denna minskning förekommer i litteraturen som en av de faktorer som är kopplade till nedgången för flera Bombus-arter på kontinenten, vilket skapar en återkopplingseffekt, eftersom växtens egen fröproduktion beror på dessa pollinatörer.
Ex situ-bevarandet är rimligt väl täckt. Genbanker i Europa, Nordamerika och Ryssland förvarar tusentals accessioner av lantsorter, gamla kultivarer och vilda populationer, material som stödjer förädlingsprogram inriktade på persistens och sjukdomsresistens.
Kuriosa
- Rödklöver har varit den officiella blomman för den amerikanska delstaten Vermont sedan 1894, vald för att den representerar de mejeribetesmarker som definierade regionens ekonomi.
- En väletablerad gröda kan tillföra jorden mellan 100 och 200 kilo kväve per hektar och år, en mängd jämförbar med en fullständig konventionell kvävegödsling.
- Svårigheten för Apis mellifera att pollinera arten fick Nya Zeeland att importera europeiska humlor i slutet av 1800-talet, en av de första medvetna introduktionerna av pollinatörer i historien och ett fall som fortfarande citeras i lantbrukshandböcker idag.
- Det finns tetraploida kultivarer erhållna genom inducerad kromosomdubblering, med synbart större blad och huvuden än de ursprungliga diploida linjerna och högre biomassaproduktion.
- Fyrbladsklövern i folktron är inte en egen art: det är en utvecklingsanomali som förekommer hos både Trifolium pratense och Trifolium repens, med en uppskattad frekvens på cirka en individ av fem tusen.
Observera: detta innehåll är informativt och ersätter inte professionell medicinsk rådgivning. Rådgör med läkare eller fytoterapeut innan du använder medicinalväxter, särskilt under graviditet, amning eller vid medicinering.
Referenser och vetenskapliga studier
Se Alla 8 Citerade Källor
Peer-Reviewed Vetenskapliga Studier (1)
- DOI1996 Taylor, N. L., Quesenberry, K. H. Red Clover Science. Kluwer Academic Publishers, Dordrecht. 1996. ↗
Kompletterande Läsning (7)
- Flora e Funga do Brasil. Trifolium in Flora e Funga do Brasil. Jardim Botânico do Rio de Janeiro. ↗
- International Plant Names Index. Trifolium pratense L. The Royal Botanic Gardens, Kew, Harvard University Herbaria & Australian National Botanic Gardens. ↗
- IUCN. The IUCN Red List of Threatened Species. Trifolium pratense. ↗
- Linnaeus, C. Species Plantarum, vol. 2, p. 768. Impensis Laurentii Salvii, Stockholm. 1753. ↗
- Merck Veterinary Manual. Slaframine Toxicosis in Animals. ↗
- POWO. Plants of the World Online. Trifolium pratense L. Royal Botanic Gardens, Kew. ↗
- 1984 Zohary, M., Heller, D. The Genus Trifolium. Israel Academy of Sciences and Humanities, Jerusalem. 1984.