Camellia sinensis to zimozielony krzew o szerokich liściach, którego liście dają początek wszystkim prawdziwym herbatom świata. Zielona, biała, żółta, oolong, czarna i pu-erh nie są różnymi roślinami: to produkty jednego gatunku, różniące się etapem, na którym zbiera się liść, oraz stopniem utleniania, jakiemu jest on następnie poddawany. Roślina należy do rodziny Theaceae, drzewiastej grupy z rzędu wrzosowców (Ericales), obejmującej około dziewięciu rodzajów rozmieszczonych w tropikalnych i subtropikalnych regionach Azji i obu Ameryk.
Rodzimy zasięg gatunku obejmuje wschodnie Himalaje, południowe Chiny i północne Indochiny, pas wilgotnych lasów subtropikalnych, gdzie rośnie jako drzewo runa leśnego. Wieki uprawy przekształciły ten leśny krzew w najszerzej uprawianą roślinę wieloletnią na świecie, zaraz po zbożach spożywczych, z komercyjnymi plantacjami w ponad sześćdziesięciu krajach i tak wyraźną wewnętrzną zmiennością morfologiczną, że współczesna taksonomia uznaje pięć odmian botanicznych w obrębie tej samej nazwy.
Poniższy tekst dotyczy rośliny, a nie napoju. Zbiera zweryfikowaną klasyfikację formalną i synonimikę według IPNI i Plants of the World Online, cechy identyfikacyjne w terenie, ekologię i rodzime rozmieszczenie, praktyki agronomiczne uprawy, kalendarz fenologiczny, gatunki rodzaju powodujące pomyłki w ogrodach, skład chemiczny opisany w literaturze, historię botaniczną oraz status ochrony.
Tradycyjne zastosowania, właściwości i sposoby przygotowania tej rośliny opisano w artykule Zielona Herbata (Camellia sinensis): Właściwości i Korzyści.
Taksonomia rodzaju Camellia
Uznaną nazwą jest Camellia sinensis (L.) Kuntze, potwierdzona w International Plant Names Index pod numerem rejestracyjnym 828548-1 i uznana za akceptowaną przez Plants of the World Online. Obecna kombinacja została opublikowana przez Otto Kuntzego w Revisio Generum Plantarum, w 1887 roku, przenosząc do rodzaju Camellia bazonim, który Linneusz opisał w 1753 roku jako Thea sinensis. Poniższa klasyfikacja podąża za ujęciem przyjętym przez Kew:
- Królestwo: Plantae
- Gromada: Streptophyta (okrytonasienne; Magnoliophyta w tradycyjnej nomenklaturze)
- Klasa: Equisetopsida (Magnoliopsida w starszych klasyfikacjach)
- Podklasa: Magnoliidae
- Rząd: Wrzosowce (Ericales)
- Rodzina: Theaceae Mirb.
- Rodzaj: Camellia L.
- Gatunek: Camellia sinensis (L.) Kuntze (1887)
Synonimy
Wbrew temu, co sugeruje dawna literatura, uznana dziś synonimia jest krótka. Plants of the World Online uznaje tylko dwie nazwy:
- Camellia thea Link (1822), nazwa nielegalna i zbędna
- Thea sinensis L. (1753), bazonim
Warto odnotować sprostowanie, które słabo krąży w źródłach wtórnych. Nazwy takie jak Thea bohea L. i Thea viridis L., często cytowane w tekstach z XIX wieku jako oznaczające odpowiednio rośliny herbaty czarnej i zielonej, nie potwierdzają tego rozróżnienia. Różnica między tymi dwoma produktami nigdy nie była botaniczna, lecz wynikała z przetwarzania po zbiorze, co taksonomia ostatecznie utrwaliła, łącząc wszystko pod jedną nazwą gatunkową.
Uznane odmiany
Plants of the World Online uznaje pięć odmian infragatunkowych, z których dwie odpowiadają za praktycznie całą światową produkcję:
- Camellia sinensis var. assamica (Royle ex Hook.) Steenis: pokrój drzewiasty, duże, błoniaste liście, przystosowana do wilgotnego klimatu tropikalnego. Dominuje w Asamie, na Sri Lance, w Kenii i w Azji Południowo-Wschodniej.
- Camellia sinensis var. dehungensis (Hung T.Chang, H.S.Wang & B.H.Chen) T.L.Ming: odmiana z Junnanu, o ograniczonym rozmieszczeniu.
- Camellia sinensis var. madoensis T.V.Nguyen, V.D.Luong & N.Trieu Le: opisana dla Wietnamu, znana z nielicznych populacji.
- Camellia sinensis var. pubilimba Hung T.Chang: rozpoznawalna po gęstym owłosieniu na spodniej stronie liścia, zwłaszcza wzdłuż nerwu głównego. Występuje w południowych Chinach.
- Camellia sinensis var. sinensis: odmiana typowa, krzewiasta, o małych, skórzastych liściach, odporna na mróz. Dominuje na plantacjach wschodnich Chin, Japonii, Korei i Tajwanu.
Dawna var. cambodiensis, częsta w literaturze agronomicznej, nie figuruje wśród uznanych taksonów i odpowiada materiałowi dziś traktowanemu w obrębie ujęcia var. assamica.
Etymologia
Nazwa rodzajowa została utworzona przez Linneusza na cześć Georga Josepha Kamela, morawskiego jezuity żyjącego w latach 1661-1706, który poświęcił się badaniu flory Filipin, latynizując swoje nazwisko jako Camellus. Epitet gatunkowy sinensis pochodzi z późnej łaciny i oznacza „z Chin”, odniesienie do terytorium, z którego dotarły do Europy pierwsze okazy znane zachodniej nauce, choć rodzimy zasięg gatunku rozciąga się znacznie poza granice Chin. Ludowa nazwa napoju w wielu językach europejskich podąża inną drogą: forma „tea” odzwierciedla wymowę dialektu Amoy w południowej części Fujian, podczas gdy formy typu „cza” oddają wymowę kantońską i mandaryńską znaku 茶, co odzwierciedla szlak morski, przez który każdy region otrzymał produkt.
Opis morfologiczny
Pokrój znacząco zależy od odmiany i sposobu prowadzenia. Pozostawiona bez cięcia var. assamica tworzy drzewo o pojedynczym pniu osiągające piętnaście metrów w lesie, podczas gdy var. sinensis pozostaje krzewem rozgałęzionym od podstawy, między półtora a pięć metrów. W uprawie komercyjnej oba te skrajne przypadki znikają: powtarzane cięcie utrzymuje roślinę na wysokości od metra do metra i pół i wywołuje powstanie gęstej, poziomej powierzchni pędów, tak zwanej tablicy zbiorczej, będącej faktycznie wykorzystywaną strukturą. Kora jest gładka, o szarobrązowym zabarwieniu, a korona ma tendencję do zaokrąglonego, zwartego kształtu.
Liście
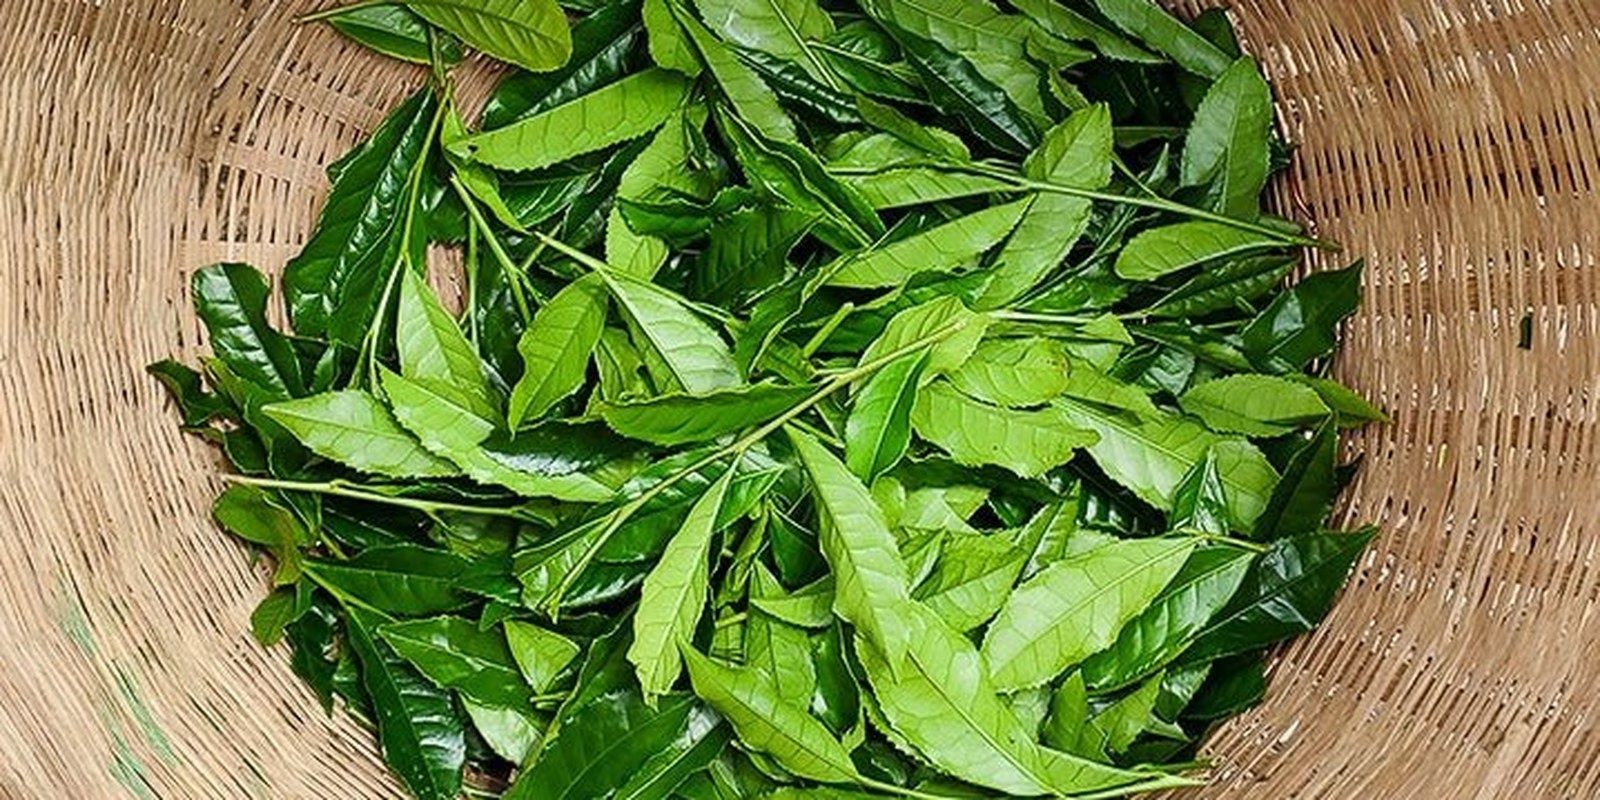
Świeżo zebrane liście Camellia sinensis w bambusowym koszu. Eliptyczno-lancetowata blaszka, drobno piłkowany brzeg oraz nerwy boczne wyginające się przed dotarciem do brzegu tworzą zespół cech używanych do rozpoznawania gatunku w terenie.
Liście są skrętoległe, pojedyncze, zimozielone i o skórzastej teksturze, z blaszką podługowato-lancetowatą do eliptycznej. Długość jest cechą najbardziej odróżniającą dwie główne odmiany i waha się od czterech do ośmiu centymetrów u var. sinensis oraz od dziesięciu do dwudziestu pięciu centymetrów u var. assamica, przy szerokości od dwóch do ośmiu centymetrów. Górna strona jest ciemnozielona i błyszcząca, dolna jaśniejsza i matowa. Brzeg ma drobne, regularne ząbkowanie, a unerwienie jest pierzaste, z siedmioma do dziewięciu parami nerwów bocznych uwypuklających się na spodniej stronie i wyginających się przed dotarciem do brzegu. Ogonek liściowy jest krótki, pięć do dziesięciu milimetrów. Jeszcze zamknięte pąki szczytowe są pokryte srebrzystobiałymi włoskami, cecha, która dała początek handlowym oznaczeniom typu Silver Tip.
Kwiaty
Kwiaty są obupłciowe i wyrastają pojedynczo lub w grupach po dwa do czterech w kątach liści, osadzone na krótkich, wygiętych szypułkach. Mają dwa do czterech centymetrów średnicy i liczą pięć do ośmiu płatków, zwykle siedem, białych do kremowych, lekko pachnących i o delikatnej fakturze. Kielich ma pięć do sześciu zielonkawych, trwałych działek. Pręcikowie jest liczne, z dwustu do trzystu pręcików o żółtych nitkach zrośniętych u nasady i pomarańczowych pylnikach, tworzących okazały krążek charakteryzujący kwitnienie rodzaju. Słupek kończy się trójdzielnym znamieniem. Zapylanie jest entomofilne i zależy głównie od pszczół i drobnych chrząszczy. Gatunek jest w dużej mierze samoniezgodny, co tłumaczy dużą zmienność roślin uzyskanych z nasion oraz preferencję współczesnej uprawy dla rozmnażania wegetatywnego.
Owoce i nasiona
Owocem jest drewniejąca, gładka torebka, brązowa w dojrzałości, o średnicy dwóch do trzech centymetrów i kształcie trój- lub czterolobowym w zależności od liczby płodnych komór. Pękanie jest przegrodowe. Każda torebka mieści od jednego do czterech kulistych nasion o średnicy jednego do półtora centymetra, o brązowej łupinie i bielmie bogatym w lipidy, stanowiące piętnaście do dwudziestu dwóch procent suchej masy. Dojrzewanie jest powolne i trwa dziewięć do dwunastu miesięcy po antezie, tak że kwiaty i owoce poprzedniego cyklu współistnieją na tej samej gałęzi przez większą część roku.
Korzeń i łodyga
Siewka rozwija dobrze zdefiniowany korzeń palowy, który u rośliny dorosłej ustępuje miejsca systemowi mieszanemu, z obfitymi korzeniami bocznymi i użyteczną głębokością od jednego do trzech metrów w zależności od gleby. Ta głębokość jest głównym czynnikiem determinującym tolerancję na krótkie okresy suszy. System korzeniowy jest wrażliwy na długotrwałe podtopienie i źle reaguje na zbite gleby lub wysoki poziom wód gruntowych, co tłumaczy agronomiczną preferencję dla dobrze zdrenowanych zboczy. Łodyga jest zdrewniała, o obfitym rozgałęzieniu sympodialnym, i tworzy blisko rozmieszczone węzły podtrzymujące gęstość pędów wykorzystywaną przy zbiorze.
Rozmieszczenie i siedlisko
Według Plants of the World Online rodzimy zasięg rozciąga się od wschodnich Himalajów po południowe Chiny i północne Indochiny, w tym Hajnan. Uznane jednostki rejestracyjne to, w porządku alfabetycznym: Asam, Chiny Środkowo-Południowe, Chiny Południowo-Wschodnie, Hajnan, Himalaje Wschodnie, Laos, Mjanma, Tajlandia i Wietnam.
Biomem występowania jest wilgotny biom subtropikalny. W warunkach naturalnych roślina zajmuje runo wiecznie zielonych lasów zboczowych, na kwaśnych, głębokich glebach bogatych w materię organiczną, na wysokościach od kilkuset metrów do ponad dwóch tysięcy metrów. Wymóg kwasowości jest ścisły, a zakres pH między czterema i pół a sześcioma określa dużą część światowej geografii produkcyjnej. Gatunek toleruje częściowe zacienienie, warunek odtwarzający środowisko leśne pochodzenia, który japońska agronomia przekształciła w celową technikę uprawy.
Poza rodzimym zasięgiem uprawa rozprzestrzeniła się na cały tropikalny i subtropikalny pas planety. Największe ośrodki produkcyjne znajdują się w Chinach, Indiach, Kenii, na Sri Lance, w Turcji, Wietnamie i Indonezji, z mniejszymi plantacjami w Japonii, na Tajwanie, w Gruzji, Iranie, Rwandzie, Malawi, Argentynie i Brazylii. Brazylijska uprawa koncentruje się w Vale do Ribeira, w stanie São Paulo, rozpoczęta w latach 30. XX wieku przez japońskich imigrantów w gminach Iguape, Pariquera-Açu i Registro, z mniejszymi ośrodkami w północnej Paranie.
Uprawa
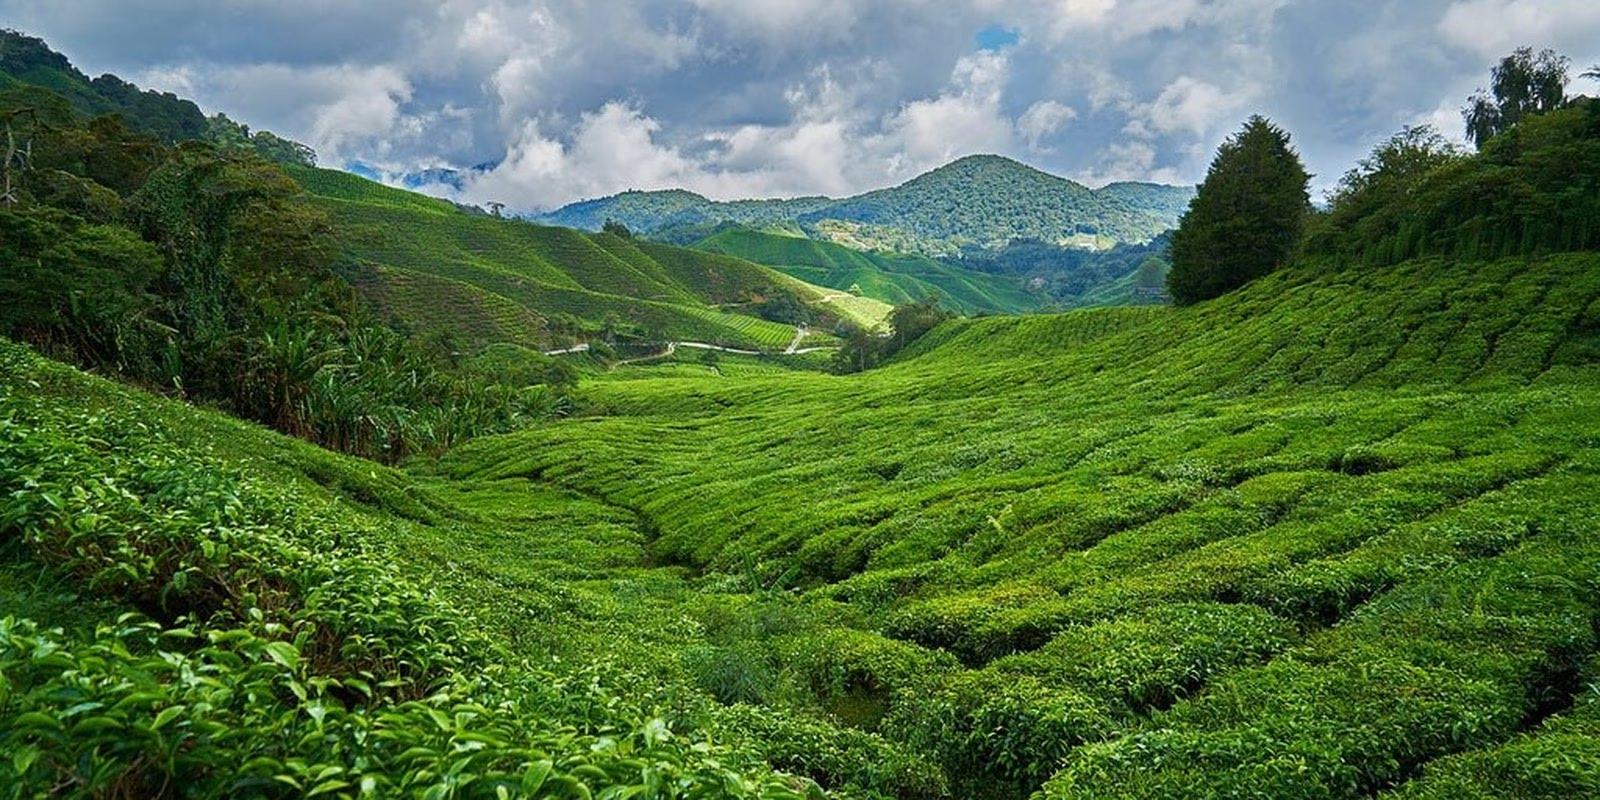
Komercyjna plantacja Camellia sinensis na tropikalnym zboczu. Cięcie pielęgnacyjne utrzymuje wysokość zbioru i wywołuje ciągłą powierzchnię pędów znaną jako tablica zbiorcza, na kwaśnych i dobrze przepuszczalnych glebach.
Rozmnażanie komercyjne odbywa się niemal wyłącznie za pomocą sadzonek półzdrewniałych, o długości pięciu do ośmiu centymetrów, niosących jeden lub dwa liście, traktowanych auksyną i ukorzenianych w wilgotnym podłożu przez sześćdziesiąt do dziewięćdziesięciu dni. Wybór ten uzasadnia samoniezgodność gatunku, która czyni potomstwo z nasion zbyt niejednorodnym dla jednolitej uprawy. Siew nadal jest stosowany w programach hodowlanych i w małych gospodarstwach rodzinnych, z powolnym kiełkowaniem trwającym sześćdziesiąt do stu dwudziestu dni, a kultura tkankowa jest rozwijana do szybkiego rozmnażania wyselekcjonowanych odmian.
Wymagania glebowo-klimatyczne są wąskie. Odpowiedni zakres temperatur mieści się między piętnastoma a dwudziestoma ośmioma stopniami Celsjusza w ciągu roku, przy czym var. sinensis znosi minima bliskie zeru, a var. assamica wymaga co najmniej dwunastu stopni. Silne przymrozki są śmiertelne. Wymagane roczne opady wynoszą od tysiąca pięciuset do trzech tysięcy milimetrów, dobrze rozłożonych, przy wilgotności względnej między siedemdziesięcioma a dziewięćdziesięcioma procentami, a silne, stałe wiatry powodują wystarczające uszkodzenia liści, by uzasadnić stosowanie wiatrochronów na plantacjach komercyjnych.
Zwykły rozstaw łączy metr dwadzieścia do metra pięćdziesiąt między rzędami z sześćdziesięcioma do osiemdziesięcioma centymetrami między roślinami, co daje gęstości od dziesięciu do czternastu tysięcy roślin na hektar. Azot jest najbardziej wymaganym składnikiem pokarmowym w uprawie intensywnej, następnie potas, fosfor i cynk. Prowadzenie zależy od trzech rodzajów cięcia o różnych funkcjach: cięcie formujące, w pierwszych trzech latach, wymusza wzrost boczny i buduje tablicę zbiorczą; cięcie pielęgnacyjne, coroczne lub co dwa lata, utrzymuje wysokość zbioru i stymuluje odrastanie; a cięcie odmładzające, stosowane co osiem do dwunastu lat, obniża roślinę do trzydziestu lub pięćdziesięciu centymetrów, aby odbudować koronę.
Zbiór wykorzystuje jedynie rosnący koniec każdej gałązki i podąża za utrwalonymi standardami, od pojedynczego pąka po zestaw pąka z dwoma liśćmi. Plantacje o wysokiej wartości zbiera się ręcznie; mechanizacja obsługuje produkcję na dużą skalę. Roślina wchodzi w produkcję komercyjną około trzeciego roku, osiąga szczyt między dziesiątym a trzydziestym rokiem i pozostaje produktywna przez pięć do dziesięciu dekad przy odpowiednim zarządzaniu.
Fenologia
Roczny cykl łączy długi okres wzrostu wegetatywnego z kwitnieniem skoncentrowanym pod koniec sezonu. Wzrost pędów odbywa się w kolejnych falach, znanych w literaturze agronomicznej jako flusze, oddzielonych odstępami siedmiu do czternastu dni podczas sezonu wzrostu. W klimacie tropikalnym proces jest praktycznie ciągły przez cały rok; w klimacie umiarkowanym lub subtropikalnym koncentruje się w czterech do sześciu falach między wiosną a jesienią, z wyraźnym spoczynkiem zimowym.
Kwitnienie następuje jesienią i na początku zimy, co odpowiada okresowi od września do stycznia na półkuli północnej i od marca do lipca na półkuli południowej. Każdy kwiat pozostaje receptywny przez kilka dni. Owocowanie jest powolne, a torebka dojrzewa dziewięć do dwunastu miesięcy później, tak że opadanie dojrzałych owoców zbiega się w przybliżeniu z kolejnym kwitnieniem. W uprawie prowadzonej pod częstym cięciem kwitnienie jest znacznie ograniczone, ponieważ ciągłe usuwanie końców przekierowuje wzrost na pędy wegetatywne i ogranicza tworzenie pąków kwiatowych.
Gatunki pokrewne i pomyłki
Rodzaj Camellia obejmuje około dwustu pięćdziesięciu uznanych gatunków, skoncentrowanych we wschodniej i południowo-wschodniej Azji. W ogrodach i szkółkach pomyłki są częste, zwłaszcza poza sezonem kwitnienia:
- Camellia japonica L.: klasyczna kamelia ozdobna, z dziesiątkami tysięcy zarejestrowanych odmian. Wyróżnia się szerokimi, grubymi liśćmi o intensywnym połysku i dużymi kwiatami, pięć do trzynastu centymetrów, w kolorze czerwonym, różowym lub białym, otwierającymi się pod koniec zimy i wiosną. Brak zastosowania w produkcji herbaty.
- Camellia nitidissima Chi: gatunek chiński znany z żółtozłocistych kwiatów, rzadki przypadek w rodzaju. Ograniczone siedlisko i silna presja zbioru objęły go ochroną prawną w Chinach.
- Camellia oleifera Abel: kamelia oleista, uprawiana na dużą skalę w południowych Chinach ze względu na nasiona, z których pozyskuje się olej spożywczy i kosmetyczny. Przypomina C. sinensis pokrojem i liściem, ale ma większe kwiaty i znacznie obszerniejsze torebki.
- Camellia reticulata Lindl.: gatunek z Junnanu o największych kwiatach w rodzaju, dochodzących do piętnastu centymetrów średnicy, i liściach o wyraźnie siatkowatym unerwieniu. Wyłącznie ozdobna.
- Camellia sasanqua Thunb.: japońska roślina ozdobna kwitnąca jesienią, o mniejszych i cieńszych liściach oraz średnich kwiatach, pięć do siedmiu centymetrów, białych do różowych. Nasiona również dostarczają oleju.
- Camellia taliensis (W.W.Sm.) Melch.: najbliższy dziki krewny, rodzimy dla Junnanu i północnej Mjanmy. Odróżnia się subtelnymi cechami kwiatowymi, a bliskość genetyczna czyni go kluczowym elementem badań nad pochodzeniem uprawianej herbaty.
Praktyczne kryteria odróżnienia od dwóch najczęstszych roślin ozdobnych są spójne. Kwiat C. sinensis jest mały, biały, z wyraźnymi żółtymi pręcikami, w przeciwieństwie do dużego i często pełnego kwiatu C. japonica. Liść jest węższy, a ząbkowanie drobniejsze niż u obu. Pomaga też kalendarz: C. sasanqua kwitnie jesienią, C. sinensis od jesieni do początku zimy, a C. japonica od końca zimy do wiosny.
Fitochemia
Liść Camellia sinensis należy do najlepiej scharakteryzowanych chemicznie materiałów roślinnych, a poniższy opis ma charakter ściśle kompozycyjny. Udokumentowane w literaturze grupy to, w porządku alfabetycznym:
- Wolne aminokwasy: L-teanina, czyli gamma-glutamyloetyloamid, jest dominującym aminokwasem niebiałkowym i odpowiada za dużą część rozpuszczalnego azotu w młodym liściu. Jej stężenie spada przy intensywnym świetle i rośnie w cieniu, co japońska agronomia wykorzystuje na plantacjach zadaszonych.
- Karotenoidy i pochodne lotne: luteina, beta-karoten i neoksantyna, których utleniający rozkład generuje lotne związki z klasy jononów i terpenoidów tworzące profil aromatyczny przetworzonego liścia.
- Flawonole i kwasy fenolowe: glikozydy kemferolu, mirycetyny i kwercetyny, kwas galusowy, kwas chlorogenowy i kwas kumarylochinowy.
- Metyloksantyny: kofeina jest główną i występuje w stężeniach od dwóch do czterech procent suchej masy młodego liścia, towarzyszy jej teobromina i teofilina w znacznie mniejszych ilościach. Są to alkaloidy purynowe kojarzone w literaturze ekologicznej z obroną przed roślinożercami.
- Polifenole typu flawan-3-ol: najliczniejsza grupa, odpowiadająca za około dwadzieścia do trzydziestu procent suchej masy młodego liścia. Obejmuje galusan epigalokatechiny, epigalokatechinę, galusan epikatechiny i epikatechinę, obok odpowiadających im katechin nieepimerycznych.
- Saponiny triterpenowe: teasaponiny, skoncentrowane głównie w nasionach i korze korzenia.
Z punktu widzenia sensorycznego ten skład tłumaczy zachowanie materiału. Flawan-3-ole odpowiadają za cierpkość i goryczkę, teanina za odczucie opisywane jako umami, a metyloksantyny przyczyniają się do gorzkiego posmaku. Przetwarzanie po zbiorze zasadniczo zmienia obraz. Gdy liść jest zgniatany i wystawiony na powietrze, polifenolooksydaza uwolniona przez pęknięcie komórek przekształca flawan-3-ole w teaflawiny i tearubiginy, pigmenty o barwie pomarańczowej do czerwonawej. To stopień tej konwersji odróżnia typy herbaty, a nie jakakolwiek różnica między roślinami.
Olej pozyskiwany z nasion składa się głównie z kwasu oleinowego, z mniejszymi frakcjami kwasu linolowego, palmitynowego i stearynowego, profil zbliżony do oliwy z oliwek.
Uwaga dotycząca toksyczności odnosi się niezależnie od jakiegokolwiek użycia. Liście i resztki liści zawierają kofeinę i teobrominę w stężeniach stanowiących realne ryzyko zatrucia dla psów, kotów, koni i ptaków domowych, gatunków, które wolno metabolizują metyloksantyny. Materiał roślinny suchy lub wilgotny, wyrzucony do kompostu dostępnego dla zwierząt domowych, zasługuje na uwagę. Teasaponiny z nasion są również opisywane jako drażniące i ichtiotoksyczne.
Historia i etnobotanika
Chińska tradycja przypisywała odkrycie naparu mitycznemu cesarzowi Shen Nungowi, postaci umiejscowionej około 2737 roku przed naszą erą, narracji należącej do domeny legendy założycielskiej, a nie do zapisu historycznego. Weryfikowalna dokumentacja zaczyna się znacznie później. Cha Jing, traktat, który Lu Yu napisał między 760 a 780 rokiem naszej ery za dynastii Tang, jest najstarszym tekstem poświęconym w całości roślinie i jej przetwarzaniu, i już w nim pojawiają się opisy uprawy, zbioru i klasyfikacji liści. Roślina pojawiała się także w chińskich kompendiach materii medycznej z tego okresu, a rozprzestrzenianie się konsumpcji w Azji Wschodniej towarzyszyło szerzeniu się buddyzmu, gdy mnisi na początku IX wieku przywieźli nasiona do Japonii.
Kontakt europejski był późny i pośredni. Portugalscy i holenderscy kupcy sprowadzili produkt do Europy w XVII wieku, ale roślina pozostawała nieznana zachodniej botanice przez dziesięciolecia. Engelbert Kaempfer, niemiecki lekarz w służbie Holenderskiej Kompanii Wschodnioindyjskiej, obserwował uprawy w Japonii między 1690 a 1692 rokiem i opublikował pierwszy europejski opis oparty na bezpośredniej obserwacji. To na podstawie tego materiału oraz suszonych okazów przesłanych z Chin Linneusz ustanowił Thea sinensis w Species Plantarum, w 1753 roku. Ostateczne przeniesienie do Camellia, zaproponowane przez Otto Kuntzego w 1887 roku, zakończyło ponad wiek nomenklatorycznej niestabilności.
Epizod o największych konsekwencjach agronomicznych miał miejsce w północno-wschodnich Indiach. Dzikie populacje o szerokim liściu zostały zarejestrowane w Asamie przez Roberta Bruce’a około 1823 roku, a botaniczne potwierdzenie nastąpiło w kolejnej dekadzie, otwierając drogę do komercyjnego ustanowienia uprawy w regionie od 1839 roku pod egidą Brytyjskiej Kompanii Wschodnioindyjskiej. Kilka lat później, między 1848 a 1851 rokiem, szkocki botanik Robert Fortune, na zlecenie tej samej kompanii, przewiózł do Indii tysiące sadzonek i nasion pozyskanych w Chinach wraz z wyspecjalizowanymi robotnikami, operację, która złamała chiński monopol i przekształciła światową geografię uprawy.
W społeczeństwach pochodzenia roślina wykroczyła poza dziedzinę rolniczą. Japoński rytuał herbaty, chanoyu, sformalizowany przez Sen no Rikyu w XVI wieku, oraz praktyki przygotowania z południowych Chin utrwaliły formy towarzyskości, które przetrwały wieki. Liście starych roślin z Junnanu prasowano w bloki, które służyły jako środek wymiany na szlakach handlowych łączących region z Tybetem.
Ochrona
Czerwona Lista IUCN klasyfikuje Camellia sinensis jako gatunek o niedostatecznych danych, kategoria DD. Pozorna sprzeczność między tym statusem a rolniczą wszechobecnością gatunku ma proste wyjaśnienie: ocena dotyczy populacji dzikich, słabo odgraniczonych i trudnych do odróżnienia od starych, zdziczałych plantacji, a nie obszaru uprawy, który przekracza pięć milionów hektarów na świecie. Gatunek nie figuruje w załącznikach CITES.
Rzeczywiste obawy dotyczące ochrony mają inny charakter. Zastąpienie tradycyjnych, heterogenicznych plantacji pochodzących z nasion monokulturami klonalnymi wywodzącymi się z nielicznych odmian znacząco zawęziło bazę genetyczną uprawy, sytuacja, którą banki genów w Chinach, Indiach i Japonii starają się kompensować, zachowując stare akcesje. W Junnanie przetrwały okazałe, wiekowe egzemplarze, traktowane jako dziedzictwo biologiczne i częściowo objęte obszarami chronionymi, ale narażone na presję zbioru ze względu na wartość handlową przypisywaną ich liściom. Zmiany klimatyczne dotykają regiony produkcyjne w nierówny sposób, z przesunięciem odpowiedniej strefy wysokościowej w Darjeeling, nieregularnością pór roku na Sri Lance i wzrostem zjawisk ekstremalnych w Afryce Wschodniej.
Sytuacja jest poważniejsza u innych gatunków tego samego rodzaju. Kilka żółtokwiatowych kamelii z południowych Chin i północnego Wietnamu, w tym C. nitidissima, zajmuje ograniczone siedliska, doświadcza intensywnego nielegalnego zbioru i figuruje w kategoriach zagrożenia, a niektóre gatunki rodzaju uznaje się już za wymarłe w naturze.
Ciekawostki
- Georg Joseph Kamel, jezuita upamiętniony w nazwie rodzaju, zmarł w Manili w 1706 roku, nigdy nie widząc rośliny herbaty. Hołd wyszedł od Linneusza i nie miał związku z gatunkiem.
- Światowy podział między formami „cha” i „tea” odzwierciedla geografię handlu. Języki, które otrzymały produkt drogą lądową, przyjęły warianty „cha”, podczas gdy te, które otrzymały go drogą morską, przez port Amoy, przyjęły warianty „te”.
- Ograniczenie światła docierającego do rośliny w tygodniach poprzedzających zbiór podnosi zawartość teaniny i obniża zawartość katechin. Technika zacieniania plantacji podtrzymuje od wieków produkcję zacienianych herbat z Uji.
- Skoczek Empoasca onukii jest szkodnikiem w niemal całej produkującej Azji, ale na Tajwanie jego atak jest celowo tolerowany. Reakcja rośliny na ukłucie zmienia profil lotnych substancji liścia i daje początek oolongowi znanemu jako Oriental Beauty.
- Kwiaty i owoce różnych cykli współistnieją na tej samej gałęzi przez miesiące, ponieważ torebka potrzebuje niemal roku, aby dojrzeć, i osiąga swój kres, gdy roślina znów kwitnie.
- Japońska odmiana Yabukita, wyselekcjonowana przez Hikosaburo Sugiyamę w 1908 roku, zajmuje sama ponad siedemdziesiąt procent obszaru uprawnego w Japonii, skrajny przykład zawężenia genetycznego niepokojącego banki genów.
Uwaga: ta treść ma charakter informacyjny i nie zastępuje porady specjalisty. Przed zastosowaniem roślin leczniczych skonsultuj się z lekarzem lub fitoterapeutą, zwłaszcza w ciąży, w okresie karmienia piersią lub podczas przyjmowania leków.
Referencje i badania naukowe
Zobacz Wszystkie 10 Cytowanych Źródeł
Recenzowane Badania Naukowe (4)
- DOI2012 Chen, L.; Apostolides, Z.; Chen, Z. M. (eds.). Global Tea Breeding: Achievements, Challenges and Perspectives. Springer, Berlin. 2012. ↗
- DOI2020 Hazra, A.; Saha, P.; Das, A. Genetic Diversity and Breeding of Tea (Camellia sinensis L.). In: Cash Crops. Springer, Cham. 2020. ↗
- DOI2014 Mondal, T. K. Breeding and Biotechnology of Tea and its Wild Species. Springer India, New Delhi. 2014. ↗
- DOI2014 Owuor, P. O.; Kamau, D. M. The Conservation of Tea Genetic Resources. Plant Genetic Resources, 12(S1), S100-S104. 2014. ↗
Źródła Instytucjonalne (1)
- GOV2007 Ming, T. L.; Bartholomew, B. Theaceae. In: Flora of China, vol. 12. Science Press and Missouri Botanical Garden Press, Beijing and Saint Louis. 2007. ↗
Lektury Uzupełniające (5)
- IPNI. International Plant Names Index: Camellia sinensis (L.) Kuntze, registro 828548-1. Royal Botanic Gardens Kew, Harvard University Herbaria and Australian National Botanic Gardens. ↗
- Kuntze, O. Revisio Generum Plantarum, vol. 1. Arthur Felix, Leipzig. 1891. ↗
- Linnaeus, C. Species Plantarum, vol. 1, p. 515. Laurentius Salvius, Stockholm. 1753. ↗
- POWO. Plants of the World Online: Camellia sinensis (L.) Kuntze. Royal Botanic Gardens, Kew. ↗
- Royal Botanic Gardens, Kew. Tea Plant: Camellia sinensis. Kew Science, Plant Profiles. ↗