Camellia sinensis er den eviggrønne busken med brede blader, hvis blader danner grunnlaget for all verdens ekte te. Grønn, hvit, gul, oolong, svart og puerh er ikke forskjellige planter: de er produkter av én enkelt art, adskilt av stadiet der bladet plukkes, og graden av oksidasjon det deretter utsettes for. Planten tilhører familien Theaceae, en vedaktig gruppe innen ordenen Ericales som omfatter omtrent ni slekter fordelt i Asias og Amerikas tropiske og subtropiske regioner.
Artens hjemlige areal dekker det østlige Himalaya, det sørlige Kina og det nordlige Indokina, et belte av fuktige subtropiske skoger der den vokser som et skogbunnstre. Århundrer med dyrking har forvandlet denne skogbusken til klodens mest dyrkede flerårige vekst etter matgressene, med kommersielle plantasjer i over seksti land og en intern morfologisk variasjon så utpreget at moderne taksonomi anerkjenner fem botaniske varieteter innenfor samme navn.
Følgende tekst omhandler planten og ikke drikken. Den samler den verifiserte formelle klassifikasjonen og synonymien ifølge IPNI og Plants of the World Online, feltkjennetegn for identifikasjon, økologi og hjemlig utbredelse, agronomiske dyrkingspraksiser, fenologisk kalender, slektsarter som gir opphav til forveksling i hager, kjemisk sammensetning beskrevet i litteraturen, botanisk historie og bevaringsstatus.
For tradisjonelle bruksområder, egenskaper og tilberedningsmåter for denne planten, se artikkelen Grønn Te (Camellia sinensis): Egenskaper og Fordeler.
Taksonomi for Camellia sinensis
Det aksepterte navnet er Camellia sinensis (L.) Kuntze, bekreftet i International Plant Names Index under registreringsnummer 828548-1 og anerkjent som akseptert av Plants of the World Online. Den nåværende kombinasjonen ble publisert av Otto Kuntze i Revisio Generum Plantarum, i 1887, der basionymet som Linnaeus hadde beskrevet i 1753 som Thea sinensis, ble overført til Camellia. Klassifikasjonen nedenfor følger avgrensningen som Kew bruker:
- Rike: Plantae
- Divisjon: Streptophyta (angiospermer; Magnoliophyta i den tradisjonelle nomenklaturen)
- Klasse: Equisetopsida (Magnoliopsida i eldre klassifikasjoner)
- Underklasse: Magnoliidae
- Orden: Ericales
- Familie: Theaceae Mirb.
- Slekt: Camellia L.
- Art: Camellia sinensis (L.) Kuntze (1887)
Synonymer
I motsetning til hva den eldre litteraturen antyder, er den i dag aksepterte synonymien kort. Plants of the World Online anerkjenner bare to navn:
- Camellia thea Link (1822), ugyldig og overflødig navn
- Thea sinensis L. (1753), basionymet
Det er en korreksjon som sirkulerer dårlig i sekundære kilder. Navn som Thea bohea L. og Thea viridis L., ofte sitert i tekster fra 1800-tallet som om de betegnet henholdsvis den svarte og den grønne teplanten, støtter ikke dette skillet. Forskjellen mellom de to produktene var aldri botanisk, men et spørsmål om bearbeiding etter innhøsting, noe taksonomien til slutt fastslo ved å samle alt under ett enkelt artsnavn.
Aksepterte varieteter
Plants of the World Online anerkjenner fem infraspesifikke varieteter, hvorav to utgjør praktisk talt hele verdensproduksjonen:
- Camellia sinensis var. assamica (Royle ex Hook.) Steenis: treaktig vekstform, store, membranøse blader, tilpasset fuktig tropisk klima. Dominerer i Assam, på Sri Lanka, i Kenya og Sørøst-Asia.
- Camellia sinensis var. dehungensis (Hung T.Chang, H.S.Wang & B.H.Chen) T.L.Ming: varietet fra Yunnan, med begrenset utbredelse.
- Camellia sinensis var. madoensis T.V.Nguyen, V.D.Luong & N.Trieu Le: beskrevet for Vietnam, kjent fra få bestander.
- Camellia sinensis var. pubilimba Hung T.Chang: gjenkjennelig ved den tette hårveksten på bladets underside, spesielt langs midtnerven. Forekommer i det sørlige Kina.
- Camellia sinensis var. sinensis: den typiske varieteten, buskformet, med små, læraktige blader, kuldetolerant. Dominerer plantasjene i det østlige Kina, Japan, Korea og Taiwan.
Den eldre var. cambodiensis, hyppig i den agronomiske litteraturen, figurerer ikke blant de aksepterte taksaene og tilsvarer materiale som i dag behandles innenfor avgrensningen av var. assamica.
Etymologi
Slektsnavnet ble skapt av Linnaeus til ære for Georg Joseph Kamel, en mährisk jesuitt som levde fra 1661 til 1706 og viet seg til studiet av Filippinenes flora, ved å latinisere sitt etternavn som Camellus. Artsepitetet sinensis kommer fra senlatin og betyr «fra Kina», en henvisning til territoriet der de første eksemplarene kjent av vestlig vitenskap ankom Europa fra, selv om artens hjemlige areal strekker seg langt utover Kinas grenser. Drikkens folkelige navn på norsk, «te», følger en annen rute: det gjenspeiler uttalen fra Amoy-dialekten i det sørlige Fujian, mens formen «cha» fra andre språk gjengir den kantonesiske og mandarin-uttalen av tegnet 茶, noe som gjenspeiler sjøveien som hver region mottok produktet gjennom.
Morfologisk beskrivelse
Habitusen varierer markant avhengig av varietet og skjøtsel. Latt vokse uten beskjæring danner var. assamica et tre med én enkelt stamme som kan nå femten meter i skog, mens var. sinensis forblir en busk, forgrenet fra bunnen, mellom halvannen og fem meter. I kommersiell dyrking forsvinner begge ytterpunktene: gjentatt beskjæring holder planten mellom en og halvannen meter i høyden og fremkaller dannelsen av en tett, horisontal overflate av skudd, det såkalte plukkebordet, som er strukturen som faktisk utnyttes. Barken er glatt, gråbrun i fargen, og kronen har en tendens til en avrundet, kompakt form.
Blader
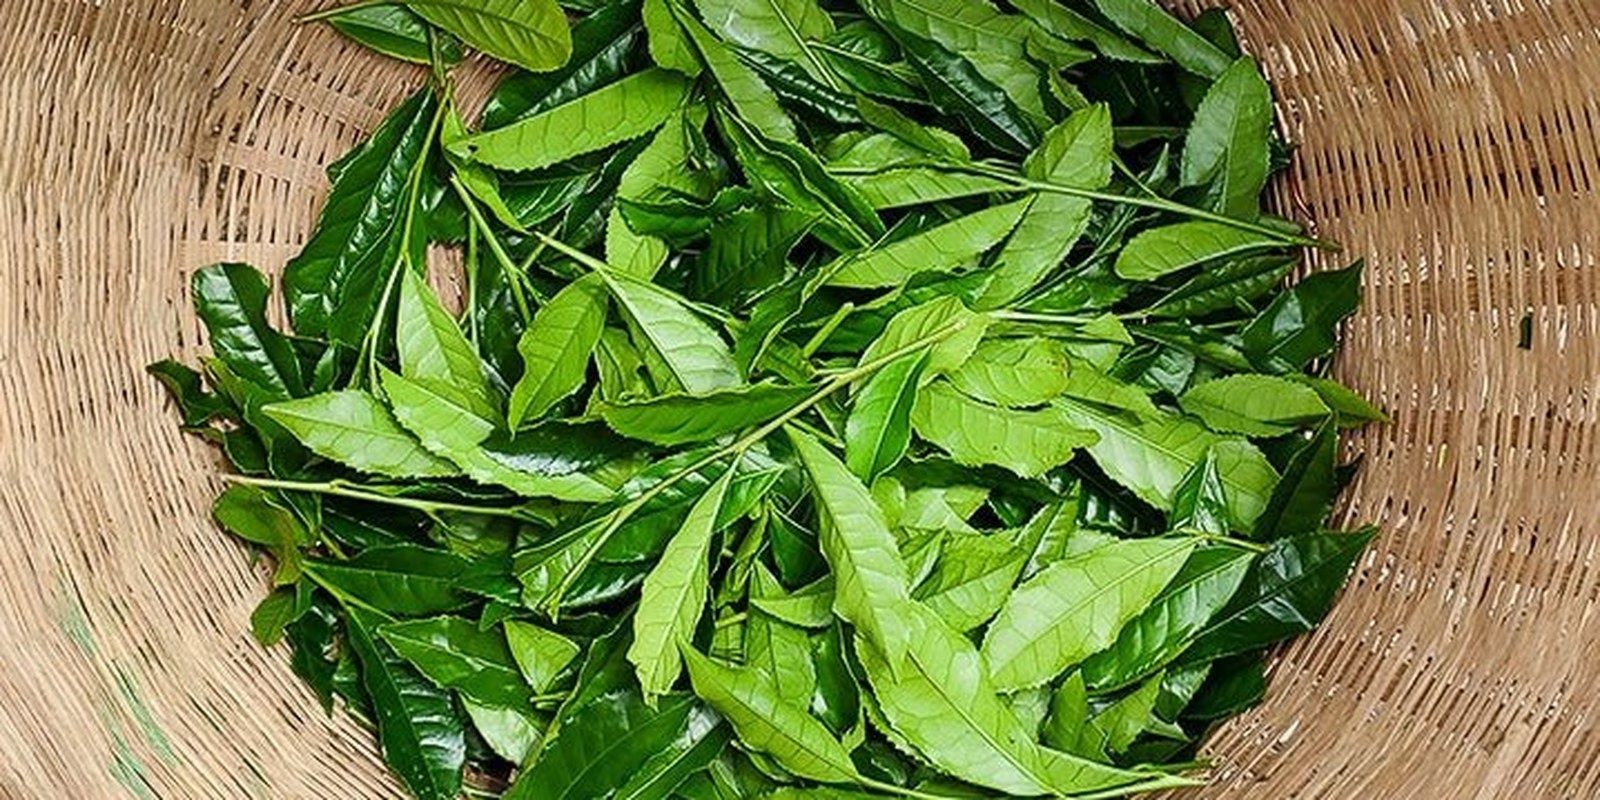
Nyplukkede blader av Camellia sinensis i en bambuskurv. Det elliptisk-lansettformede bladet, den fintaggede kanten og sidenervene som bøyer seg før de når kanten, utgjør kjennetegnene som brukes til å gjenkjenne arten i felt.
Bladene er spredte, enkle, eviggrønne og av læraktig struktur, med en avlangt lansettformet til elliptisk bladplate. Lengden er kjennetegnet som best skiller de to hovedvarietetene, og varierer fra fire til åtte centimeter hos var. sinensis og fra ti til tjuefem centimeter hos var. assamica, med en bredde mellom to og åtte centimeter. Oversiden er mørkegrønn og skinnende, undersiden lysere og matt. Kanten har en fin, regelmessig sagtakking, og nervaturen er fjærformet, med sju til ni par sidenerver som fremtrer i relieff på undersiden og bøyer seg før de når kanten. Bladstilken er kort, fem til ti millimeter. De ennå lukkede toppknoppene er dekket av sølvhvite hår, et kjennetegn som ga opphav til de kommersielle betegnelsene av Silver Tip-typen.
Blomster
Blomstene er tvekjønnede og oppstår enkeltvis eller i grupper på to til fire i bladhjørnene, båret av korte, tilbakebøyde blomsterstilker. De måler to til fire centimeter i diameter og har fem til åtte kronblader, vanligvis sju, hvite til kremfargede, lett duftende og av delikat struktur. Begeret har fem til seks grønnaktige, blivende begerblader. Pollenbærerne er tallrike, to- til tre hundre med gule tråder sammenvokst ved basen, og oransje støvknapper som danner den staselige skiven som kjennetegner slektens blomstring. Grifelen ender i et tredelt arr. Bestøvningen er entomofil og avhenger primært av bier og små biller. Arten er stort sett selvinkompatibel, en egenskap som forklarer den høye variabiliteten hos planter oppnådd fra frø og den moderne dyrkingens preferanse for vegetativ formering.
Frukter og frø
Frukten er en forvedet, glatt kapsel, brunaktig i fargen ved modning, med en diameter på to til tre centimeter og en tre- eller firelappet form avhengig av antall fruktbare rom. Åpningen er loculicid. Hver kapsel rommer ett til fire kuleformede frø på en til halvannen centimeter i diameter, med brun frøskall og lipidrikt endosperm, som utgjør femten til tjueto prosent av tørrvekten. Modningen er langsom og tar ni til tolv måneder etter blomstring, slik at blomster og frukter fra forrige syklus sameksisterer på samme gren i store deler av året.
Rot og stengel
Kimplanten utvikler en veldefinert pælerot, som hos den voksne planten viker for et blandet system med rikelige siderøtter og en nyttig dybde på en til tre meter avhengig av jordsmonnet. Denne dybden er den viktigste bestemmende faktoren for toleransen overfor korte tørkeperioder. Rotsystemet er følsomt for langvarig vannmetning og reagerer dårlig på komprimerte jordsmonn eller høyt grunnvannsspeil, noe som forklarer den agronomiske preferansen for godt drenerte skråninger. Stengelen er forvedet, med rikelig sympodial forgrening, og danner tettsittende noder som bærer skuddensiteten som utnyttes ved innhøstingen.
Utbredelse og habitat
Ifølge Plants of the World Online strekker det hjemlige arealet seg fra det østlige Himalaya til det sørlige Kina og det nordlige Indokina, inkludert Hainan. De anerkjente registreringsenhetene er, i alfabetisk rekkefølge: Assam, sentral-sørlige Kina, sørøstlige Kina, Hainan, Øst-Himalaya, Laos, Myanmar, Thailand og Vietnam.
Forekomstbiomet er det fuktige subtropiske biomet. Under naturlige forhold okkuperer planten skogbunnen i eviggrønne skråningsskoger, på sure, dype jordsmonn rike på organisk materiale, i høyder fra noen hundre meter til over to tusen meter. Kravet til surhet er strengt, og pH-intervallet mellom fire og en halv og seks bestemmer en stor del av verdens produksjonsgeografi. Arten tolererer delvis skygge, en betingelse som gjenskaper det opprinnelige skogmiljøet, og som japansk agronomi har omgjort til en bevisst dyrkingsteknikk.
Utenfor det hjemlige arealet har dyrkingen spredt seg til hele planetens tropiske og subtropiske belte. De største produksjonssentrene finnes i Kina, India, Kenya, Sri Lanka, Tyrkia, Vietnam og Indonesia, med mindre plantasjer i Japan, Taiwan, Georgia, Iran, Rwanda, Malawi, Argentina og Brasil. Den brasilianske dyrkingen konsentrerer seg i Vale do Ribeira, i delstaten São Paulo, påbegynt på 1930-tallet av japanske immigranter i kommunene Iguape, Pariquera-Açu og Registro, med mindre kjerner i det nordlige Paraná.
Dyrking
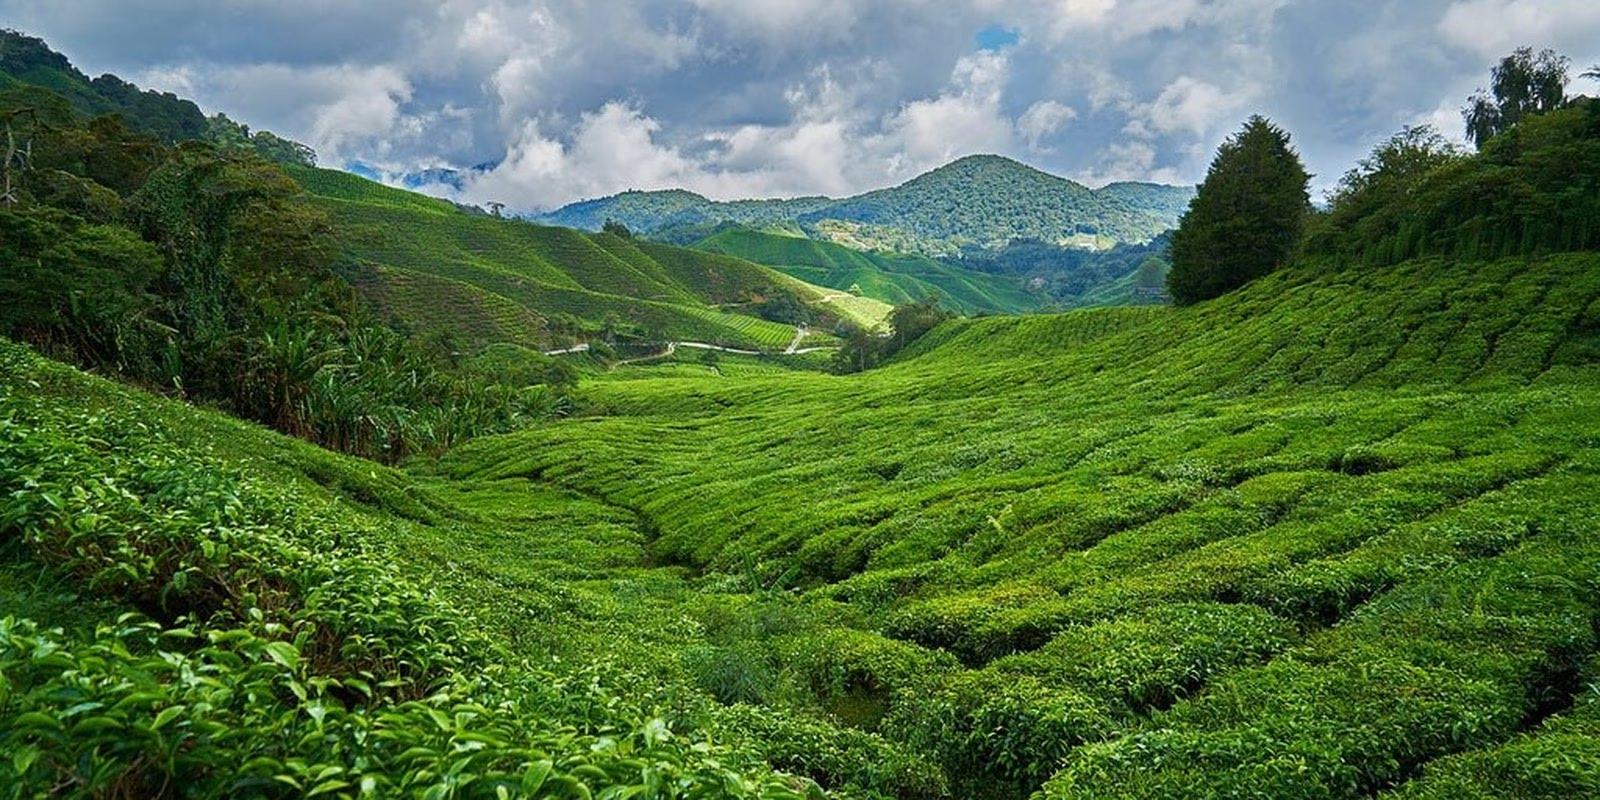
Kommersiell plantasje av Camellia sinensis i en tropisk skråning. Vedlikeholdsbeskjæring holder plukkehøyden og fremkaller den sammenhengende overflaten av skudd kjent som plukkebordet, på sure og godt drenerte jordsmonn.
Kommersiell formering skjer nesten utelukkende ved halvvedaktige stiklinger, fem til åtte centimeter lange, med ett eller to blader, behandlet med auxin og rotfestet i fuktig substrat i seksti til nitti dager. Dette valget begrunnes med artens selvinkompatibilitet, som gjør avkom fra frø for heterogent for ensartet dyrking. Frøsåing brukes fortsatt i foredlingsprogrammer og på små familiebruk, med langsom spiring som tar seksti til hundre og tjue dager, og vevskultur utvikles for rask formering av utvalgte kultivarer.
De jordbunns- og klimamessige kravene er snevre. Det passende temperaturintervallet ligger mellom femten og tjueåtte grader Celsius i løpet av året, der var. sinensis tåler minima nær null, og var. assamica krever minst tolv grader. Kraftig frost er dødelig. Den nødvendige årlige nedbøren varierer fra femten hundre til tre tusen millimeter, godt fordelt, med en relativ luftfuktighet mellom sytti og nitti prosent, og kraftig, vedvarende vind forårsaker tilstrekkelig bladskade til å berettige levegger på kommersielle plantasjer.
Den vanlige plantavstanden kombinerer en meter tjue til en meter femti mellom radene med seksti til åtti centimeter mellom plantene, noe som gir tettheter på ti til fjorten tusen planter per hektar. Nitrogen er den mest etterspurte næringsstoffen i intensiv dyrking, etterfulgt av kalium, fosfor og sink. Driften avhenger av tre beskjæringstyper med ulike funksjoner: formingsbeskjæringen, i de tre første årene, tvinger frem sidevekst og bygger opp plukkebordet; vedlikeholdsbeskjæringen, årlig eller annethvert år, opprettholder plukkehøyden og stimulerer gjenvekst; og foryngelsesbeskjæringen, brukt hvert åttende til tolvte år, senker planten til tretti eller femti centimeter for å bygge opp kronen på nytt.
Innhøstingen utnytter bare den voksende enden av hver gren og følger etablerte standarder som spenner fra den enkelte knoppen til kombinasjonen av knopp pluss to blader. Plantasjer av høy verdi høstes for hånd; mekanisering betjener storskalaproduksjonen. Planten går inn i kommersiell produksjon rundt det tredje året, når toppen mellom ti og tretti år og forblir produktiv i fem til ti tiår under passende skjøtsel.
Fenologi
Den årlige syklusen kombinerer en lang periode med vegetativ vekst med en blomstring som konsentreres sent i sesongen. Gjenveksten skjer i påfølgende bølger, kjent i den agronomiske litteraturen som flushes, adskilt av intervaller på sju til fjorten dager i vekstsesongen. I tropisk klima er prosessen praktisk talt kontinuerlig gjennom hele året; i tempererte eller subtropiske klima konsentreres den i fire til seks bølger mellom vår og høst, med en markert vinterhvile.
Blomstringen finner sted om høsten og tidlig på vinteren, noe som tilsvarer september til januar på den nordlige halvkule og mars til juli på den sørlige. Hver blomst forblir mottakelig i noen få dager. Fruktsettingen er langsom, og kapselen modner ni til tolv måneder senere, slik at fallet av modne frukter omtrent sammenfaller med den påfølgende blomstringen. I plantasjer under hyppig beskjæring reduseres blomstringen kraftig, fordi den konstante fjerningen av skuddspissene omdirigerer veksten til vegetative skudd og begrenser dannelsen av blomsterknopper.
Beslektede arter og forvekslinger
Slekten Camellia omfatter omtrent to hundre og femti aksepterte arter, konsentrert i det østlige og sørøstlige Asia. I hager og planteskoler er forveksling hyppig, spesielt utenfor blomstringssesongen:
- Camellia japonica L.: den klassiske prydkamelien, med titusenvis av registrerte kultivarer. Kjennetegnes ved brede, tykke blader med intens glans og store blomster, fem til tretten centimeter, i rødt, rosa eller hvitt, som åpner seg sent på vinteren og om våren. Ingen anvendelse i teproduksjon.
- Camellia nitidissima Chi: kinesisk art bemerkelsesverdig for sine gyllengule blomster, et svært sjeldent tilfelle innenfor slekten. Begrenset habitat og sterkt innsamlingspress har brakt den under lovbeskyttelse i Kina.
- Camellia oleifera Abel: oljekamelien, dyrket i stor skala i det sørlige Kina for frøene, hvorfra det utvinnes mat- og kosmetikkolje. Ligner C. sinensis i vekstform og blad, men har større blomster og betydelig større kapsler.
- Camellia reticulata Lindl.: art fra Yunnan med slektens største blomster, som når femten centimeter i diameter, og blader med tydelig nettformet nervatur. Utelukkende prydplante.
- Camellia sasanqua Thunb.: japansk prydplante med høstblomstring, med mindre og finere blader og middels store blomster, fem til sju centimeter, hvite til rosa. Frøene gir også olje.
- Camellia taliensis (W.W.Sm.) Melch.: den nærmeste ville slektningen, hjemmehørende i Yunnan og det nordlige Myanmar. Skiller seg ved fine blomsterkjennetegn, og den genetiske nærheten gjør den til et sentralt element i studiene av den dyrkede teens opprinnelse.
De praktiske skillekriteriene i forhold til de to vanligste prydplantene er konsistente. Blomsten hos C. sinensis er liten, hvit og med fremtredende gule pollenbærere, i motsetning til den store og ofte fylte blomsten hos C. japonica. Bladet er smalere, og sagtakkingen finere enn hos begge. Og kalenderen hjelper: C. sasanqua blomstrer om høsten, C. sinensis fra høst til tidlig vinter, og C. japonica fra slutten av vinteren til våren.
Fytokjemi
Bladet til Camellia sinensis er blant de kjemisk mest karakteriserte plantematerialene, og beskrivelsen nedenfor er strengt komposisjonell. De dokumenterte gruppene i litteraturen er, i alfabetisk rekkefølge:
- Frie aminosyrer: L-teanin, eller gamma-glutamyletylamid, er den dominerende ikke-protein-aminosyren og står for en stor del av det oppløselige nitrogenet i det unge bladet. Konsentrasjonen faller ved kraftig lys og stiger under skygge, en sammenheng japansk agronomi utnytter i overdekte plantasjer.
- Karotenoider og flyktige derivater: lutein, betakaroten og neoksantin, hvis oksidative nedbrytning genererer flyktige forbindelser av ionon- og terpenoidklassen som utgjør det bearbeidede bladets aromaprofil.
- Flavonoler og fenolsyrer: glykosider av kjempferol, myricetin og kvercetin, gallussyre, klorogensyre og kumarylkinasyre.
- Metylxantiner: koffein er den viktigste og forekommer i konsentrasjoner på to til fire prosent av det unge bladets tørrvekt, ledsaget av teobromin og teofyllin i langt mindre mengder. Det er purinalkaloider som i den økologiske litteraturen forbindes med forsvar mot planteetere.
- Polyfenoler av flavan-3-ol-typen: den mest utbredte gruppen, tilsvarende omtrent tjue til tretti prosent av det unge bladets tørrvekt. Omfatter epigallokatekingallat, epigallokatekin, epikatekingallat og epikatekin, i tillegg til de tilsvarende ikke-epimere katekinene.
- Triterpensaponiner: teasaponinene, konsentrert primært i frøene og rotbarken.
Fra et sensorisk synspunkt forklarer denne sammensetningen materialets oppførsel. Flavan-3-olene står for strammheten og bitterheten, teanin for følelsen som beskrives som umami, og metylxantinene bidrar til den bitre bunnen. Bearbeidingen etter innhøsting endrer bildet grunnleggende. Når bladet knuses og utsettes for luft, omdanner polyfenoloksidasen som frigjøres ved cellebrudd flavan-3-olene til teaflaviner og tearubiginer, oransje til rødlige pigmenter. Det er graden av denne omdannelsen som skiller teetypene, og ikke noen forskjell mellom planter.
Oljen som utvinnes fra frøene, består hovedsakelig av oljesyre, med mindre fraksjoner av linolsyre, palmitinsyre og stearinsyre, en profil nær olivenolje.
En toksisitetsmerknad gjelder uavhengig av enhver bruk. Bladene og bladrestene inneholder koffein og teobromin i konsentrasjoner som utgjør en reell forgiftningsrisiko for hunder, katter, hester og fjørfe, arter som metaboliserer metylxantiner langsomt. Plantemateriale, tørt eller vått, kastet i kompost tilgjengelig for husdyr, fortjener oppmerksomhet. Teasaponinene fra frøene beskrives også som irriterende og fisketoksiske.
Historie og etnobotanikk
Den kinesiske tradisjonen tilskrev oppdagelsen av avkoket den mytiske keiseren Shen Nung, en skikkelse plassert rundt 2737 før vår tidsregning, en fortelling som hører til grunnleggelseslegendens domene og ikke til den historiske dokumentasjonen. Den verifiserbare dokumentasjonen begynner mye senere. Cha Jing, traktatet Lu Yu forfattet mellom 760 og 780 e.Kr. under Tang-dynastiet, er den eldste teksten som utelukkende er viet til planten og dens bearbeiding, og der finnes allerede beskrivelser av dyrking, innhøsting og bladklassifikasjon. Planten opptrådte også i de kinesiske materia medica-kompendiene fra perioden, og spredningen av forbruket gjennom Øst-Asia fulgte spredningen av buddhismen, der munker tok med seg frø til Japan tidlig på 800-tallet.
Den europeiske kontakten var sen og indirekte. Portugisiske og nederlandske handelsmenn brakte produktet til Europa på 1600-tallet, men planten forble ukjent for vestlig botanikk i flere tiår. Engelbert Kaempfer, en tysk lege i tjeneste for Det nederlandske østindiske kompani, observerte plantasjene i Japan mellom 1690 og 1692 og publiserte den første europeiske beskrivelsen basert på direkte observasjon. Det var på grunnlag av dette materialet og av tørkede eksemplarer sendt fra Kina at Linnaeus etablerte Thea sinensis i Species Plantarum, i 1753. Den endelige overføringen til Camellia, foreslått av Otto Kuntze i 1887, avsluttet over et århundre med nomenklaturisk ustabilitet.
Episoden med de største agronomiske konsekvensene fant sted i det nordøstlige India. Ville bestander med bredt blad ble registrert i Assam av Robert Bruce rundt 1823, og den botaniske bekreftelsen kom det påfølgende tiåret, noe som banet vei for den kommersielle etableringen av dyrkingen i regionen fra 1839 under Det britiske østindiske kompani. Noen år senere, mellom 1848 og 1851, førte den skotske botanikeren Robert Fortune, på oppdrag fra samme kompani, tusenvis av stiklinger og frø hentet i Kina til India sammen med spesialiserte arbeidere, en operasjon som brøt det kinesiske monopolet og formet om verdensgeografien for dyrkingen.
I opprinnelsessamfunnene overskred planten det landbruksmessige feltet. Det japanske teseremonien, chanoyu, formalisert av Sen no Rikyu på 1500-tallet, og tilberedningspraksisene fra det sørlige Kina befestet former for sosialt samvær som har overlevd århundrer. Bladene fra gamle planter i Yunnan ble presset til blokker som tjente som byttemiddel langs handelsrutene som forbandt regionen med Tibet.
Bevaring
IUCNs rødliste klassifiserer Camellia sinensis som Utilstrekkelige Data, kategori DD. Den tilsynelatende motsetningen mellom denne statusen og artens landbruksmessige allestedsnærvær har en enkel forklaring: vurderingen gjelder de ville bestandene, dårlig avgrenset og vanskelig å skille fra gamle forvillede plantasjer, og ikke det dyrkede arealet, som overstiger fem millioner hektar på verdensbasis. Arten er ikke oppført på CITES’ vedlegg.
De reelle bevaringsbekymringene er av en annen art. Erstatningen av tradisjonelle, heterogene plantasjer oppstått fra frø med klonale monokulturer avledet fra få kultivarer har markant innsnevret dyrkingens genetiske grunnlag, en situasjon genbanker i Kina, India og Japan forsøker å kompensere ved å bevare gamle aksesjoner. I Yunnan overlever store, århundregamle eksemplarer, behandlet som biologisk arv og delvis inkludert i beskyttede områder, men utsatt for innsamlingspress på grunn av den kommersielle verdien som tillegges bladene deres. Klimaendringer påvirker produksjonsregionene ujevnt, med forskyvning av den passende høydesonen i Darjeeling, uregelmessige årstider på Sri Lanka og en økning i ekstreme hendelser i det østlige Afrika.
Bildet er alvorligere hos andre arter av samme slekt. Flere gulblomstrede kamelier fra det sørlige Kina og det nordlige Vietnam, blant dem C. nitidissima, okkuperer begrensede habitater, opplever intensiv ulovlig innsamling og figurerer i trusselkategorier, og enkelte arter av slekten anses allerede som utdødd i naturen.
Kuriositeter
- Georg Joseph Kamel, jesuitten som er hedret i slektsnavnet, døde i Manila i 1706 uten noensinne å ha sett en teplante. Hyllesten kom fra Linnaeus og hadde ingen forbindelse til arten.
- Den globale oppdelingen mellom formene «cha» og «te» gjenspeiler handelens geografi. Språk som mottok produktet via land, tok i bruk varianter av «cha», mens de som mottok det via hav, gjennom havnen i Amoy, tok i bruk varianter av «te».
- Å redusere lyset som når planten i ukene før innhøsting, hever teanin-innholdet og senker katekin-innholdet. Teknikken med å dekke til plantasjene har i århundrer understøttet produksjonen av de skyggede teene fra Uji.
- Sikaden Empoasca onukii er et skadedyr i nesten hele det produserende Asia, men på Taiwan tolereres angrepet dens bevisst. Plantens reaksjon på bittet endrer bladets flyktige profil og gir opphav til oolongen kjent som Oriental Beauty.
- Blomster og frukter fra ulike sykluser sameksisterer på samme gren i månedsvis, fordi kapselen bruker nesten et år på å modnes og når sitt endepunkt mens planten allerede blomstrer igjen.
- Den japanske kultivaren Yabukita, valgt ut av Hikosaburo Sugiyama i 1908, dekker alene over sytti prosent av det tilplantede arealet i Japan, et ekstremt eksempel på den genetiske innsnevringen som bekymrer genbankene.
Merk: dette innholdet er informativt og erstatter ikke profesjonell helserådgivning. Rådfør deg med lege eller fytoterapeut før du bruker medisinplanter, spesielt under graviditet, amming eller ved bruk av legemidler.
Referanser og vitenskapelige studier
Se Alle 10 Siterte Kilder
Fagfellevurderte Vitenskapelige Studier (4)
- DOI2012 Chen, L.; Apostolides, Z.; Chen, Z. M. (eds.). Global Tea Breeding: Achievements, Challenges and Perspectives. Springer, Berlin. 2012. ↗
- DOI2020 Hazra, A.; Saha, P.; Das, A. Genetic Diversity and Breeding of Tea (Camellia sinensis L.). In: Cash Crops. Springer, Cham. 2020. ↗
- DOI2014 Mondal, T. K. Breeding and Biotechnology of Tea and its Wild Species. Springer India, New Delhi. 2014. ↗
- DOI2014 Owuor, P. O.; Kamau, D. M. The Conservation of Tea Genetic Resources. Plant Genetic Resources, 12(S1), S100-S104. 2014. ↗
Institusjonelle Kilder (1)
- GOV2007 Ming, T. L.; Bartholomew, B. Theaceae. In: Flora of China, vol. 12. Science Press and Missouri Botanical Garden Press, Beijing and Saint Louis. 2007. ↗
Supplerende Lesning (5)
- IPNI. International Plant Names Index: Camellia sinensis (L.) Kuntze, registro 828548-1. Royal Botanic Gardens Kew, Harvard University Herbaria and Australian National Botanic Gardens. ↗
- Kuntze, O. Revisio Generum Plantarum, vol. 1. Arthur Felix, Leipzig. 1891. ↗
- Linnaeus, C. Species Plantarum, vol. 1, p. 515. Laurentius Salvius, Stockholm. 1753. ↗
- POWO. Plants of the World Online: Camellia sinensis (L.) Kuntze. Royal Botanic Gardens, Kew. ↗
- Royal Botanic Gardens, Kew. Tea Plant: Camellia sinensis. Kew Science, Plant Profiles. ↗