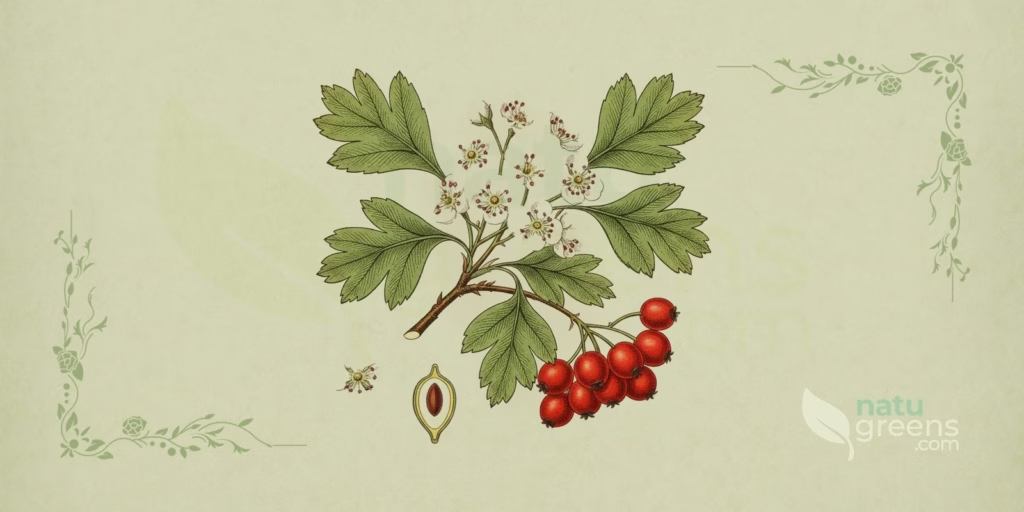
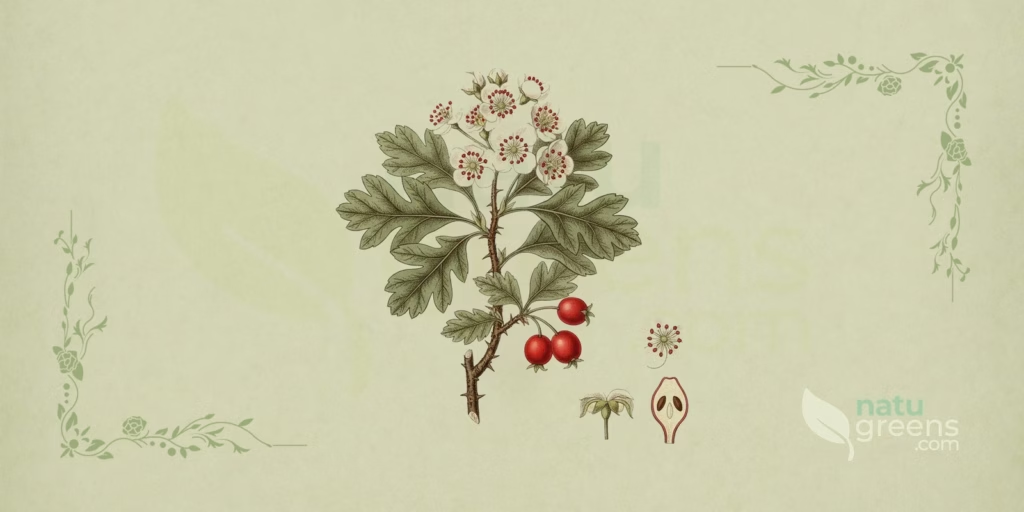
Crataegus laevigata er hagtornen fra de gamle skogene i det vestlige og sentrale Europa, et lite tre som opptar det skyggefulle indre av modne skoger, mens dens mer kjente slektning dominerer hekker og åpne skogkanter. Den tilhører Rosaceae, familien som omfatter epletreet, pæretreet, rosen og jordbæret, og inntar innenfor denne tribusen Maleae, gruppen av kjernefrukter. I Storbritannia, der den har gjennomgått en av de mest detaljerte økologiske studiene noensinne viet en europeisk vedplanteart, fungerer den som indikatorplante for gammelskog, en status som gjør det mulig å lese en skogs historie ut fra dens sammensetning.
Få europeiske planter bærer en så forvirret nomenklaturhistorie med seg. I over to århundrer ble denne arten og Crataegus monogyna behandlet som én ting, under navnet Crataegus oxyacantha, et binomen som til slutt ble formelt avvist på grunn av tvetydighet, nettopp fordi man ikke kunne avgjøre hvilken av de to plantene Linné henviste til. Sporet av denne forvirringen lever videre i eldre litteratur, i planteskolekataloger og på kommersielle etiketter, og forplikter enhver som leser kilder fra før det tjuende århundre til å undersøke det beskrevne materialet før den trykte betegnelsen aksepteres.
Denne siden samler artens botaniske profil: formell klassifikasjon, feltkjennetegn, utbredelse og miljø, dyrkingskrav, reproduktiv kalender, nære slektninger den forveksles med, beskrivende kjemisk sammensetning, historisk og etnografisk registrering samt bevaringsstatus. En annen botanisk profil på dette nettstedet er Cordia sinensis (grå cordia).
Taksonomi
Artens posisjon i den nåværende botaniske klassifikasjonen er som følger:
- Rike: Plantae
- Rekke: Tracheophyta (Magnoliophyta, angiospermer)
- Klasse: Magnoliopsida (eudikotyledoner)
- Orden: Rosales
- Familie: Rosaceae
- Underfamilie: Amygdaloideae
- Tribus: Maleae
- Slekt: Crataegus L., 1753
- Art: Crataegus laevigata (Poir.) DC., 1825
Basionymet er Mespilus laevigata Poir., utgitt i 1798 i Encyclopédie Méthodique, og overføringen til Crataegus ble gjort av Augustin Pyramus de Candolle i andre bind av Prodromus Systematis Naturalis Regni Vegetabilis, fra 1825. IPNIs registrering bekrefter forfatterskapet og den opprinnelige utgivelsessiden.
Slekten er en av de vanskeligste i familien. Avhengig av behandlingen som anvendes, svinger antallet aksepterte arter mellom cirka 140 og over tusen, en spredning som ikke reflekterer spesialistenes uvitenhet, men gruppens biologi: omfattende hybridisering, apomiksis og polyploidi gir mellomformer som motstår skarpe grenser.
Aksepterte synonymer
- Crataegus coriacea Gand.
- Crataegus helvetica Walo Koch
- Crataegus oxyacantha f. laevigata (Poir.) Beck
- Crataegus oxyacanthoides Thuill.
- Crataegus palmstruchii Lindm.
- Crataegus subinermis Gand.
- Mespilus digyna Gray
- Mespilus intermedia Poir.
- Mespilus laevigata Poir.
- Mespilus oxyacanthoides (Thuill.) DC.
- Oxyacantha obtusata (DC.) Roem.
- Oxyacantha vulgaris (DC.) Roem.
Linné samlet under Crataegus oxyacantha det som i dag anerkjennes som to atskilte arter, og regionale forfattere over nesten hele Europa fortsatte å bruke binomiet som samlebetegnelse. Den første britiske floraen som skilte C. laevigata fra C. monogyna, var Babingtons fra 1843, som behandlet dem som varieteter, selv om den allerede antydet at de kunne utgjøre selvstendige arter. Tvetydigheten ble først formelt løst da Byatt i 1974 påviste at det linnéske navnet ikke med sikkerhet kunne anvendes på noen av de to plantene, noe som førte til at det ble avvist.
Det finnes dessuten en mindre diskusjon om epitetets stavemåte. Gutermann hevdet i 2011 at den korrekte formen ville være levigata, basert på lesningen av De Candolles publikasjon, men den grundige undersøkelsen av originalen utført av Christensen og Talent i 2012 bekreftet laevigata som gyldig stavemåte.
Underarter
Sell og Murrells behandling anerkjenner to infraspesifikke enheter, av andre forfattere behandlet som varieteter. Subsp. laevigata dominerer i vest for utbredelsesområdet og i lavlandet, som den dominerende formen i Storbritannia, med blader på 15 til 35 millimeter, nesten glatte og uten hårtotter i nervevinklene på undersiden. Subsp. palmstruchii er hyppigere i fjell og i øst, med blader på 30 til 50 millimeter, tettere hårete nervatur på undersiden, tilstedeværende hårtotter i vinklene, håret hypanthium og større ellipsoide frukter, på 10 til 14 millimeter ganger 13 til 15 millimeter.
Etymologi
Slektsnavnet Crataegus kommer fra det greske krataigos, avledet av kratys, styrke eller robusthet. Andre del av sammensetningen tillater mer enn én lesning: noen forfattere forbinder den med akis, skarp spiss, med henvisning til tornene, mens andre knytter den til aix, geit, noe som antyder det levende gjerdet som kan holde buskapen inne. De tre tolkningene konvergerer mot de samme egenskapene ved planten, treets hardhet og grenenes bevæpning. Epitetet laevigata stammer fra det latinske laevigare, å glatte eller polere, og beskriver løvverkets glatte og skinnende overflate, en karakter som også har gitt arten det engelske navnet glatt hagtorn.
Morfologisk beskrivelse
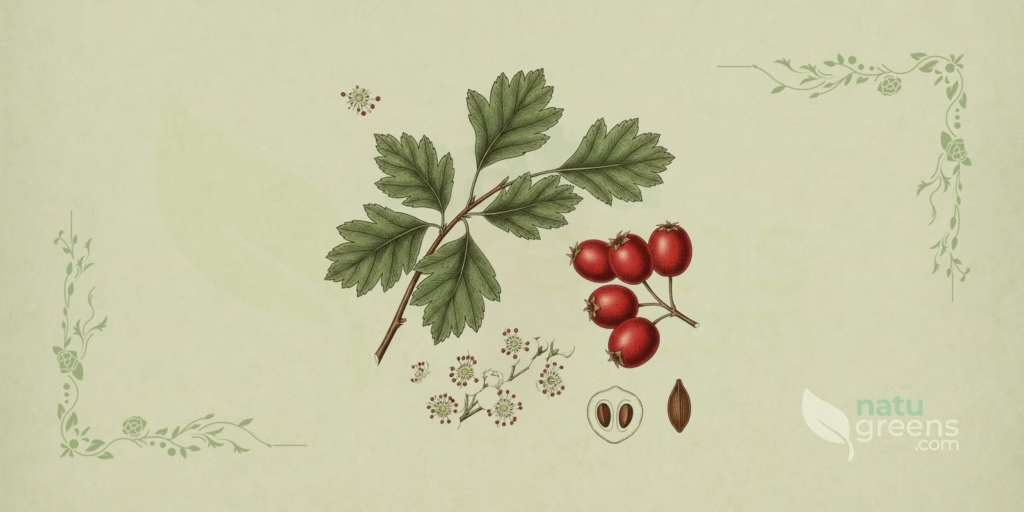
Lite løvfellende tre som med en viss hyppighet når 8 meters høyde og unntaksvis 12 meter, selv om den like ofte opptrer som en flerstammet busk med uordnet vekstform. Kronen er tett, bred og avrundet, og stammen fortsetter ikke langt inn i den, forgrenende tidlig. Grenene er spredte eller oppadstrebende, generelt mindre stive enn hos C. monogyna, og har tendens til å henge ved spissene. Knoppene er eggformede til nesten kuleformede, med avrundet spiss, og måler mellom 1,1 og 2,1 millimeter i lengden ved 1,2 til 1,9 millimeter i bredden, med mørkebrune skjell.
Blader
Bladene er spredte, ofte lærete, mørkegrønne og skinnende på oversiden og blekgrønne på undersiden. De er glatte, bortsett fra spredte hår langs hovednervene på begge sider som unge, og bærer karakteristisk ikke de hårtottene i nervevinklene som er vanlige hos C. monogyna i Storbritannia. Omrisset går fra omvendt eggformet til nesten rundt, med en til tre par stumpe og lave lapper som sjelden når halvveis til hovednerven. Lappene er avrundede i omriss og bredere enn lange, med kjervet-sagtakket rand unntatt i innbuktningene, og den basale lappen bærer 6 til 15 tenner.
Størrelsen varierer avhengig av posisjonen på grenen, og denne variasjonen har praktisk verdi for den som samler herbariemateriale. Bladene på de lange grenene er de største og dypest lappede, med en lengde på 1,9 til 7,2 centimeter ved 1,8 til 5,1 centimeter. De på de korte grenene ligger mellom 2,0 og 6,0 centimeter ved 1,5 til 3,2 centimeter, og de på de blomstrende grenene er enda mindre, med ett eller to par lapper eller ingen. Hovednervene er rette eller kurver forover mot bladspissen, i motsetning til hva som skjer hos C. monogyna, hvor de kurver bakover. Basis er kileformet eller avrundet, spissen tilspisset, bladstilken måler 6 til 20 millimeter, og akselbladene er iøynefallende og bladaktige på de lange grenene.
Blomster
Blomstene oppstår hovedsakelig på korte grener, samlet i løse halvskjermer på 3 til 11 stykker, med en bredde på 2,5 til 5,0 centimeter. Blomsterstilkene måler 6 til 30 millimeter og er glatte eller sjelden ullhårete, en karakter som hjelper til å skille arten fra C. monogyna, hvis blomsterstilker er hårete. Hver blomst er tvekjønnet og måler 15 til 18 millimeter i diameter. Begerbladene, fem i tallet, er bredt trekantede, like brede som lange, med hel rand og spiss topp. De fem kronbladene er hvite eller lyserosa, med stripete papiller, og måler 5 til 10 millimeter ved 5 til 9 millimeter. Hypantiet måler 3 til 4 millimeter og er glatt.
Pollenbærerne teller 17 til 22, med bleke støvtråder og lyserosa, sjelden fiolette støvknapper. Grifler er som regel to, kan variere fra en til fem i isolerte blomster, og arrene er gule. Antall grifler utgjør gruppens mest pålitelige diagnostiske karakter, fordi det direkte oversettes til antall steiner i frukten og forblir lesbart selv i tørket materiale.
Frukter og frø
Frukten er en kuleformet til ellipsoid kjernefrukt, mørkerød ved modenhet, med en diameter på 8 til 10 millimeter hos de fleste eksemplarer og en registrert spredning på 6 til 14 millimeter, ved 6 til 12 millimeter i lengden. Det gjennomsnittlige volumet, på cirka 1,60 kubikkcentimeter, er mer enn dobbelt så stort som det målt hos C. monogyna, cirka 0,73 kubikkcentimeter. Overflaten er som regel glatt og uten basale utvekster, og spissen bærer kronen av vedvarende, tilbakebøyde eller utbredte begerblader. Fruktkjøttet er gulaktig, med et fuktinnhold mellom 68 og 77 prosent.
Steinene, eller pyrenene, er som regel to og følger antallet grifler i blomsten de stammer fra. De måler cirka 5 til 6 millimeter, med en ryggutholing og bukside-utholinger, og skiller seg subtilt fra C. monogynas ved den mer stumpe enden, mot søsterartens spisse topp. Hver frukt inneholder gjennomsnittlig 2,1 til 2,8 frø, med en individuell vekt på 60 til 68 milligram, altså mindre enn C. monogynas, som ligger mellom 97 og 130 milligram. Spredningsøkologiske studier klassifiserer fruktene som ikke-giftige, uten risiko for dyrene som spiser dem, mennesker inkludert.
Bark og greiner
Barken er gråbrun til brunoransje og blir sprukket og furet med alderen. Kvistene er matt gråbrune, tett plassert, og fremstår skinnende og glatte som unge. Tornene er mindre tallrike og kortere enn hos C. monogyna, målende 6 til 15 millimeter, en forskjell som stemmer overens med artens skogaktige vekstform, mindre utsatt for beiting enn hekkpopulasjonene.
Utbredelse og habitat
Arten er hjemmehørende i det vestlige og sentrale Europa. Det naturlige utbredelsesområdet strekker seg fra De britiske øyer mot øst til Tsjekkia og Ungarn, med en nesten sikker hjemmehørende tilstedeværelse i Romania og Ukraina. Mot nord når den det sørlige Sverige, Latvia og Estland, og mot sør rekker den til de spanske Pyreneene og Italia, høyst sannsynlig inkludert Sicilia. De taksonomiske grunndataene registrerer dessuten forekomst i Østerrike, Belgia, Hviterussland, Korsika, Danmark, Slovakia, Sveits, Tyskland, Frankrike, Nederland, Polen og europeisk Russland. Den er mest utbredt i den sentralnordlige delen av dette området og blir sjelden i randområdene, som i Belgia, og er fraværende i Hellas.
På De britiske øyer er utbredelsen betydelig mer begrenset enn C. monogynas. Arten konsentrerer seg i det sørlige og østlige England, med naturlig fremrykking til Midlands, noe som ga den dens engelske folkenavn. Den er stort sett fraværende som spontan plante i Skottland og Wales, og de skotske registreringene tilsvarer nesten alltid plantede eksemplarer. Hvorvidt den er hjemmehørende i Irland, forblir til diskusjon: det finnes modne eksemplarer i flere fylker og en herbarieregistrering av hybriden fra 1895, men den mest aksepterte hypotesen tilskriver dens tilstedeværelse engelsk planteskolemateriale introdusert under de parlamentariske innhegningene.
Utenfor det naturlige området ble arten brakt til forskjellige tempererte regioner. Den er forvillet på Gulf Islands i delstaten Washington, i Canada og i det østlige USA, og ble på 1800-tallet introdusert i Tasmania og andre deler av Australia for hekkdannelse, hvor den i dag i flere delstater betraktes som en skadelig ugressplante. Det finnes dessuten registreringer fra Japan, New Zealand, Tanzania og Vest-Afrika, samt fra det tempererte Himalaya i India, mellom 1800 og 3000 meters høyde.
Det typiske habitatet definerer arten like mye som dens morfologi. Det dreier seg om en gammelskogplante, skyggetolerant, funnet i det indre av modne skoger, i skogkanter, gamle hekker og skråninger på leirjord. Den foretrekker tunge substrater, fra leire til leirjord, og unngår konsekvent kritt, kalkstein, oolittiske jordsmonn og flintholdige leirarter, en begrensning som forklarer dens konsentrasjon i de engelske Midlands og Wealden i sørøst. Ellenbergs indikatorverdi for pH i Storbritannia er 7, forenlig med svakt sure til svakt basiske forhold. I høyden rekker den fra havnivå i vest til 810 meter i de polske Sudetene, 956 meter i Slovenia, 1281 meter i Tatra og 1560 meter på Piano Ruggio, i Italia.
Dyrking
Arten er subatlantisk og foretrekker et kjølig, tempert klima. De registrerte gjennomsnittene i Storbritannia ligger på 3,5 grader Celsius for januar og 16,2 grader for juli, med en årlig nedbør på cirka 674 millimeter, altså under noe varmere og tørrere forhold enn dem C. monogyna opptar. Den tåler vintrene i Sentral- og Nord-Europa godt og har ikke noe termisk krav som begrenser den i de tempererte sonene.
Med hensyn til jorden vokser den i et bredt spekter av substrater, inkludert silikatholdige og moderat sure, og tåler betydelig fuktvariasjon. Innenfor denne bredden klarer den seg likevel best på leire- og leirjord, spesielt de tunge. Skyggetoleransen er den agronomiske egenskapen som utmerker den: den blomstrer lett selv under lukket kronedekke og dominerer underskogen i gamle stubbeskoger, en situasjon der C. monogyna ikke etablerer seg. Der lyset øker ved forstyrrelse eller hogst, snur forholdet seg, og arten mister terreng.
Formering ved frø
Frøene utviser dobbel hvile, en kombinasjon av hard frøskall og fysiologisk kuldebehov. Uten forbehandling inntreffer spiring muligens ikke før 18 måneder, eller til og med ikke før den tredje vekstsesongen etter produksjonen. Protokollen fastlagt i polske forsøk består av varm stratifikasjon i fuktig medium, med en temperatur vekslende mellom 20 og 30 grader Celsius i 16 til 20 uker, etterfulgt av en kald fase ved 3 grader i 16 til 18 uker, en periode ved hvis avslutning røttene allerede bryter frem. Denne behandlingen hever spiringen fra 2-4 prosent til 87-94 prosent, og spirene fremkommer fire til seks uker etter såing.
Kjemisk skarifisering i konsentrert svovelsyre i to til tre timer, etterfulgt av 24 timers utbløting i vann, gjør det mulig å forkorte den varme fasen fra 16-20 uker til bare fire, med tilsvarende spiringsrater. Frøene er ortodokse og kan tørkes til 9-13 prosent fuktighet uten tap av levedyktighet, og tåler oppbevaring ved minus 3 grader Celsius i 12 måneder med en beskjeden nedgang i spiring. Spiringen er epigeisk, og roten utvikler seg til en pælerot med fine, korte siderøtter.
Vegetativ formering og helse
De prydplanteaktige kultivarene formeres ved podning, en praksis som også bevarer blomsterkarakterer som ikke overføres via frø. Arten reagerer godt på beskjæring og danner store stubbeskudd under stubbeskogdrift, noe som fremmer dens tilstedeværelse i forvaltede skoger. Den er dessuten blitt evaluert som dvergdannende grunnstamme for pæretrær, med rapportert kompatibilitet for kloner av Pyrus communis og andre Maleae.
Det følsomme punktet i dyrkingen er helsen. De europeiske hagtornene, denne arten inkludert, er svært mottakelige for bakteriebrann forårsaket av Erwinia amylovora, og kultivarene ‘Paul’s Scarlet’ og ‘Rosea Flore Pleno’ hører til de mest rammede. Beplantninger kan fungere som inokulumreservoar for naboliggende epletrær og pæretrær, selv om risikoen forbundet med C. laevigata er mindre enn C. monogynas på grunn av dens mer skogaktige forekomst og større avstand til fruktplantasjer. I tillegg kommer meldugg Podosphaera clandestina, rustsoppene av slekten Gymnosporangium, som krever en alternerende vert av Juniperus, og bladflekksyke forårsaket av Entomosporium thuemenii og Diplocarpon mespili.
Fenologi
Blomstringen finner sted fra april til juni, forskjøvet mot slutten av dette intervallet i det ytterste nord av utbredelsesområdet, i Sverige. I det sørøstlige England ga sammenfallet med den liturgiske kalenderen planten det lokale navnet pinseblomst. De nederlandske langtidsdataene dokumenterer en markant fremrykking: den gjennomsnittlige blomstringsstarten gikk fra 17. mai, i serien 1940-1968, til 1. mai i serien 2001-2010. Blomstene åpner før bladene er fullt utviklet, og tidligere hos busker enn hos trær.
Arten springer i blad før C. monogyna og blomstrer cirka 8 til 14 dager før den. Dette forspranget er utilstrekkelig til å utgjøre en reproduktiv barriere, fordi overlappingen mellom de to artenes blomstringsperioder når opp til 40 prosent, noe som understøtter den vedvarende dannelsen av hybriden. Under kontrollerte forhold forble individuelle planter i blomst i 12 dager, med isolerte blomster som varte 8 dager.
Blomstene er protogyne. Støvknappene på de ytterste pollenbærerne frigjør pollen en eller to dager etter blomstens åpning, og støvtrådene kurver innover på varme dager, en ordning som ville gjøre selvbestøvning mekanisk mulig. Arten er likevel i stor grad selvinkompatibel: krysningsforsøk ga fruktsetting hos 30 til 59 prosent av blomstene under krysspollinering, mot bare 2 prosent under selvbestøvning. Pollineringen er entomofil, hovedsakelig ved årevinger og tovinger tiltrukket av nektaren og blomstenes duft, som skyldes utslipp av trimetylamin. Pollenet utviser høy levedyktighet, 96 til 98 prosent.
Fruktene utvikler seg over cirka 106 dager, mot 89 dager hos C. monogyna, og modnes mellom juni og november, med sen modning hos de nordlige populasjonene. En moden frukt sitter på planten i cirka 64 dager, og treet bærer modne frukter i gjennomsnittlig 82 dager, mot 150 dager hos C. monogyna. Spredningen påhviler primært fruktetende fugler, med svarttrost, gråtrost, rødvingetrost og måltrost som fremtredende, og frøene passerer gjennom fordøyelseskanalen eller kastes opp. Det er ingen vedvarende frøbank i jorden, en egenskap som gjør regenerasjonen avhengig av fersk fuglespredning.
Beslektede arter og forvekslinger
Identifikasjon av Crataegus i felt er anerkjent som vanskelig, og det undersøkte materialet bør omfatte modne frukter og blader fra korte sidegrener for å muliggjøre sikker bestemmelse. Et eksemplar bedømt bare ut fra blader fra kraftige skudd fører lett til feil.
Adskillelse fra Crataegus monogyna
Dette er gruppens sentrale forveksling og grunnen til avvisningen av navnet C. oxyacantha. Karakterene som skiller de to artene er følgende:
- Fruktsteiner: C. laevigata har som regel to pyrener, opptil tre; C. monogyna har én enkelt pyren, av og til to.
- Torner: mindre tallrike og kortere hos C. laevigata, 6 til 15 millimeter, og lengre og hyppigere hos C. monogyna.
- Grifler: som regel to hos C. laevigata, med variasjon fra en til fem; én enkelt hos C. monogyna.
- Bladlapper: en til tre par lave og avrundede lapper som sjelden når halvveis til hovednerven hos C. laevigata, mot fem til sju dype og spisse lapper som overstiger to tredjedeler av den avstanden hos C. monogyna.
- Hovednerver: rette eller kurvet forover hos C. laevigata, kurvet bakover hos C. monogyna.
- Blomsterstilker og hårtotter: glatte blomsterstilker og nervevinkler uten hårtotter hos C. laevigata, mot hårete blomsterstilker og tilstedeværende akseltotter hos C. monogyna i Storbritannia.
- Blomsterstørrelse: over 15 millimeter i diameter hos C. laevigata, opptil 15 millimeter hos C. monogyna.
Det kompliserende er at de to artene er innbyrdes fruktbare og frembringer hybriden Crataegus × media Bechst., av mellomliggende morfologi, med en til to grifler og et tilsvarende antall steiner. Den eneste relevante barrieren for hybridisering er den romlige adskillelsen av habitatene, og der skogfragmentering har brakt populasjonene nærmere sammen, har hybriden blitt hyppig, i flere britiske regioner til og med hyppigere enn selve C. laevigata. Et eksemplar med to grifler er derfor ikke automatisk C. laevigata, og diagnosen vinner pålitelighet når flere karakterer peker i samme retning.
Adskillelse fra Crataegus mexicana
Adskillelsen fra tejocote er umiddelbar og avhenger ikke av subtile karakterer. Den meksikanske arten produserer kjernefrukter på 1,5 til 3 centimeter i diameter, gyldengule til oransje ved modenhet, mot den europeiske artens mørkerøde frukter på 8 til 10 millimeter. Bladene til C. mexicana er rombisk-elliptiske til eggformet-lansettformede, med sagtakket rand og uten uttalt lappedeling, mens C. laevigatas er omvendt eggformede og lappede. Den meksikanske blomsterstanden samler 2 til 6 blomster i en skjerm, mot den europeiske artens halvskjermer på 3 til 11 blomster. Dertil kommer den fullstendig atskilte utbredelsen, med C. mexicana begrenset til fjellene i Mexico og Guatemala, og den mer lærete bladpersistensen hos den neotropiske arten.
I tillegg til C. monogyna hybridiserer arten med C. rhipidophylla, noe som gir C. × macrocarpa, og med C. lindmanii, som danner C. × calycina. Det registreres dessuten en intergenerisk hybrid med den europeiske mispelen, Mespilus germanica, kalt × Crataemespilus grandiflora, i tillegg til podningskimærene kjent som Crataegomespilus, oppnådd ved å pode mispel på hagtorn.
En advarsel om folkenavn på norsk er på sin plass. Språket har ikke utviklet folkenavn som skiller de europeiske artene av slekten, og termer som hagtorn brukes ofte om begge. Betegnelsen togriflet hagtorn brukes her spesifikt om C. laevigata, i samsvar med antallet grifler som kjennetegner arten, mens alminnelig hagtorn betegner C. monogyna, den langt mer utbredte arten i Norge. Overfor enhver tekst på norsk som bare bruker folkenavnet, avhenger artens identifikasjon av å kontrollere det siterte binomenet og, der det er mulig, de beskrevne karakterene.
Fytokjemi
Denne seksjonen beskriver artens dokumenterte kjemiske sammensetning. Det dreier seg om analytisk karakterisering, uten noen sammenheng med virkninger hos mennesker.
Det totale fenolinnholdet målt i C. laevigata når 1288 milligram per 100 gram fersk masse, med totale fenolsyrer på 964 milligram per 100 gram, verdier nær C. monogynas og høyere enn syv andre busker analysert i samme studie. I de blomstrende delene av ville europeiske prøver varierte det totale fenolinnholdet fra 3 til 19 gram per kilogram tørrmasse, med et gjennomsnitt på 12 gram per kilogram.
Karakteriseringen ved væskekromatografi koblet med massespektrometri identifiserte 54 forbindelser i bladene og 47 i blomstene hos arten, mot 38 og 41 hos C. monogyna. De representerte klassene omfatter klorogensyrer og andre fenolsyrer, proantocyanidiner, flavonoidglykosider og flavonoid-aglykoner. Blant de beskrevne flavonoidene figurerer apigenin, katekin, epikatekin, hyperosid, isokvercitrin, isovitexin, procyanidin B-2, kvercetin, rutin og vitexin. Proantocyanidinene når 40,6 gram per kilogram i slovensk materiale, og blomstenes totale flavonoidinnhold viste seg å være det høyeste blant ti sammenlignede Crataegus-arter.
Sammensetningen har taksonomisk interesse. Vitexin og dets derivater forekommer i høyere konsentrasjon i bladene hos slektens europeiske arter, mens rutin konsentreres markant hos de nordamerikanske. Fraværet av isoorientin, orientin, 8-metoksykaempferol-3-O-glukosid og 4»-acetylvitexin-2»-O-ramnosid hos C. laevigata ble foreslått som et hjelpekjemisk kriterium for å skille den fra C. monogyna, noe som gir fytokjemien en støttende rolle i avgrensningen av artene.
Blant triterpenene er oleanolsyre og ursolsyre de fremtredende komponentene. Analyser av flyktige organiske forbindelser oppdaget sesquiterpenene karyofyllen og humulen i blomsterutslippene, med farnesen og monoterpenet limonen som opptrer etter blomstringen. Det ble ikke påvist alkaloider eller ekte saponiner hos arten, selv om pseudo-saponosidet tormentosid ble identifisert. Oksalsyrekrystaller forekommer i alle plantens deler og utgjør 0,065 prosent av den tørre bladmassen.
Konsentrasjonen av metabolitter reagerer på miljøforhold. Planter utsatt for ti dagers tørke viste en økning av epikatekin og hyperosid med en reduksjon av vitexin og acetylvitexin, mens kuldestress ved 4 grader Celsius hevet vitexin, epikatekin, hyperosid, kvercetin og acetylvitexin. Arten akkumulerer dessuten tungmetaller i røtter og blader når den dyrkes på forurenset jord.
Historie og etnobotanikk
Den evolusjonære adskillelsen mellom C. laevigata og C. monogyna ble datert ved analyse av kloroplast-DNA til cirka ti millioner år, noe som gjør den morfologiske likheten mellom dem til et tilfelle av formbevaring over et betydelig tidsintervall. Fossilregisteret skiller imidlertid ikke de to: makrofossiler av tre og trekull er umulige å skille, og det samme gjelder som regel frøene. Pollenkornene kan skilles statistisk, siden C. laevigatas overveiende er sfæroide, med 28 til 40 mikrometer og lavrelieffstripning, mot de avlange kornene på 30 til 44 mikrometer og høyrelieff hos C. monogyna, men kriteriet er ikke blitt anvendt i den paleobotaniske praksisen.
Hagtornen er en plante som har vært vanlig i de europeiske skogene siden mesolitikum, og hver kulturelle periode fra neolitikum til normannertiden etterlot registreringer av slekten. Størstedelen av det identifiserte forhistoriske materialet svarer til C. monogyna, en pionerart som er mer effektiv i et landskap under åpning, selv om muligheten for at C. laevigata er blitt undervurdert på grunn av identifikasjonsvansker, forblir åpen.
De historisk registrerte anvendelsene av treet og av planten er varierte. Treet, tett og med ensartet årring, ble brukt til fremstilling av verktøyskaft og spaserstokker. Barken og røttene leverte et gult eller brunt fargestoff, og barken ble brukt ved garving, en praksis dokumentert i Alger. Fruktene ble spist ferske og bearbeidet til saft, syltetøy og brennevin i forskjellige europeiske egne, og ble tørket for vinterforbruk; de ristede steinene tjente som kaffeerstatning. I Italia ble hagtornen ofte plantet for å inngjerde jordbruksparseller, en funksjon som forsvant med mekaniseringen og behovet for maskintrafikk, noe som førte til den nesten fullstendige forsvinningen av disse hekkene.
Innenfor den gamle materia medica går registreringen tilbake til Dioskurides, i det første århundret, som betegnet planten med det greske navnet som skulle gi det avviste linnéske binomenet. Det var denne nomenklaturhistorien, og ikke noen botanisk egenskap, som festet Crataegus oxyacantha i den europeiske farmasøytiske litteraturen så lenge, grunnen til at binomenet fortsatt opptrer i kilder som udifferensiert beskriver den ene eller den andre av de to europeiske artene.
Bevaring
Arten vurderes som livskraftig på IUCNs rødliste, en kategori som stemmer overens med dens brede europeiske utbredelse. Den opptrer også på rødlisten for karplanter i Luxembourg, likeledes i kategorien livskraftig, sammen med C. monogyna og C. rhipidophylla.
Disse tallene skjuler likevel en prosess som fortjener oppmerksomhet. Den registrerte hyppigheten av C. laevigata i Storbritannia har endret seg lite siden 1962, men en del av denne tilsynelatende stabiliteten skyldes beplantninger innenfor og utenfor det naturlige området, og en annen del skyldes lettheten arten forveksles med hybriden C. × media med, noe som betyr at enkelte nye registreringer i virkeligheten svarer til hybriden. Bak denne tilsynelatende stabiliteten skjuler det seg en sterk indikasjon på tilbakegang blant de genetisk rene populasjonene, med særlig vekt på det sørøstlige England.
Mekanismen er godt forstått. Forstyrrelse og fragmentering av skoger åpner plass for at C. monogyna kan trenge inn i miljøer som tidligere bare var okkupert av skyggearten, og siden de to er fullt innbyrdes fruktbare, er konsekvensen hybridisering etterfulgt av introgresjon. Den mest pessimistiske lesningen av litteraturen antydet allerede i 1975 at ren C. laevigata helt kunne forsvinne etter hvert som introgresjonen skred frem, og et lignende problem ble identifisert i Belgia og Polen. Relativt rene populasjoner overlever der skogkompleksene er store og lite fragmenterte, som i utstrakte skoger i det nordøstlige Frankrike.
Situasjonen snur ved utbredelsesområdets randområder. I Bulgaria, i det ytterste sørøst av det naturlige området, er hybriden C. × media så sjelden at den er blitt foreslått for opptak i den nasjonale rødboken med behov for lovmessig beskyttelse. Fraværet av en vedvarende frøbank i jorden legger til en skjørhetsfaktor, fordi gjenopprettingen av en populasjon avhenger fullstendig av fersk fuglespredning.
Kuriositeter
- Artens spredning er blitt dokumentert fra uventede kilder: hagtornsteiner er allerede blitt identifisert i ekskrementer fra traner, bjørner og hovdyr, og det finnes en gammel beretning om en vandrefalk hvis sitteplass samlet steiner fra de fangede duenes kroer.
- De Candolle registrerte i 1825 en hagebruksteknikk som besto i å fôre kalkuner med plantens steiner, hvis passasje gjennom fuglenes fordøyelseskanal fremskyndet spiringen med cirka et år i forhold til ubehandlede frø.
- Blomstenes lukt, ubehagelig for den menneskelige luktesansen, skyldes utslipp av trimetylamin, samme forbindelse som forbindes med lukten av råtnende fisk, og det er nettopp den som tiltrekker de tovingene som er ansvarlige for en del av pollineringen.
- Danske drivhusforsøk målte hvor avhengig arten er av pollinatorer: planter besøkt av murerbien Megachile rotundata produserte 269 frukter, mot bare én enkelt frukt hos planter uten tilgang til insekter.
- Kultivaren ‘Paul’s Scarlet’, med doble røde blomster, oppsto rundt 1880 som en grenmutasjon av kultivaren ‘Rosea Flore Pleno’ og har en tvetydig status: i Storbritannia og Nord-Amerika tilskrives den C. laevigata, mens den på det europeiske fastlandet som regel behandles som en kultivar av hybriden C. × media.
- Et lite møll, Coleophora coracipennella, gjennomborer blomsterknoppene for å nære seg på pollen og fikk en gang 20 prosent av blomstene i en undersøkt populasjon i Oxfordshire til å bli sterile, med direkte innvirkning på det aktuelle årets fruktproduksjon.
- Glastonbury Thorn, den legendariske hagtornen forbundet med den engelske tradisjonen om å blomstre to ganger i året, tilhører ikke denne arten: det dreier seg om kultivaren ‘Biflora’ av C. monogyna, en tilskrivning som ofte forveksles i populariserende tekster.
- Southwoods klassiske opptelling registrerte 149 insektarter forbundet med britiske hagtorner, et tall som gir et mål på disse trærnes rolle som støtte for faunaen, selv om det forblir godt under de 284 artene registrert på eiketrær.
Merk: dette innholdet er informativt og erstatter ikke profesjonell helserådgivning. Rådfør deg med lege eller fytoterapeut før du bruker medisinplanter, spesielt under graviditet, amming eller ved bruk av legemidler.
Referanser og vitenskapelige studier
Se Alle 16 Siterte Kilder
Fagfellevurderte Vitenskapelige Studier (3)
- DOI2021 Thomas, P. A., Leski, T., La Porta, N., Dering, M., Iszkuło, G. Biological Flora of the British Isles: Crataegus laevigata. Journal of Ecology, 109(1), 572-596. 2021. ↗
- DOI2012 Edwards, J. E., Brown, P. N., Talent, N., Dickinson, T. A., Shipley, P. R. A review of the chemistry of the genus Crataegus. Phytochemistry, 79, 5-26. 2012. ↗
- DOI2021 Fichtner, A., Wissemann, V. Biological Flora of the British Isles: Crataegus monogyna. Journal of Ecology, 109, 541-571. 2021. ↗
Supplerende Lesning (13)
- 1992 Christensen, K. I. Revision of Crataegus sect. Crataegus and nothosect. Crataeguineae (Rosaceae-Maloideae) in the Old World. Systematic Botany Monographs, 35, 1-199. 1992.
- 1974 Byatt, J. I. Application of the names Crataegus calycina Peterm. and C. oxyacantha L. Botanical Journal of the Linnean Society, 69, 15-21. 1974.
- 1975 Byatt, J. I. Hybridization between Crataegus monogyna Jacq. and C. laevigata (Poiret) DC. in south-eastern England. Watsonia, 10, 253-264. 1975.
- 2012 Christensen, K. I., Talent, N. Crataegus laevigata or C. levigata (Rosaceae), a paleographic analysis. Phyton (Horn, Austria), 52(2), 195-201. 2012.
- de Candolle, A. P. Prodromus Systematis Naturalis Regni Vegetabilis, pars 2. Paris. 1825.
- Poiret, J. L. M. Mespilus laevigata. In: Encyclopédie Méthodique, Botanique, 4(2), 439. Paris. 1798.
- 2006 Bujarska-Borkowska, B. Seed dormancy breaking in Crataegus laevigata. Dendrobiology, 56, 3-11. 2006.
- 2015 Karar, M. G. E., Kuhnert, N. UPLC-ESI-Q-TOF-MS/MS characterization of phenolics from Crataegus monogyna and Crataegus laevigata leaves, fruits and their derived drops. Journal of Chemical Biology & Therapeutics, 1, e102. 2015.
- 2012 Lo, E. Y. Y., Donoghue, M. J. Expanded phylogenetic and dating analyses of the apples and their relatives (Pyreae, Rosaceae). Molecular Phylogenetics and Evolution, 63, 230-243. 2012.
- 1991 Eriksson, O., Ehrlén, J. Phenological variation in fruit characteristics in vertebrate-dispersed plants. Oecologia, 86, 463-470. 1991.
- 2014 Sell, P., Murrell, G. Flora of Great Britain and Ireland, vol. 2. Cambridge University Press. 2014.
- International Plant Names Index. Crataegus laevigata (Poir.) DC. Royal Botanic Gardens Kew, Harvard University Herbaria and Australian National Herbarium. Registro 723644-1. ↗
- Plants of the World Online. Crataegus laevigata (Poir.) DC. Royal Botanic Gardens Kew. ↗