Cordia sinensis er en vedaktig busk med mange stammer, av og til et lavt tre som når opptil tolv meter, utbredt i de tørre landområdene fra Sahel og Afrikas horn til det indiske subkontinentet. Den tilhører familien Boraginaceae, samme gruppe som legevendelrot og valurt, men inntar innenfor denne underfamilien Cordioideae, den tropiske og vedaktige grenen av gruppen. Den som ferdes langs en uttørket elveseng i Kenya, Somalia eller Rajasthan, kjenner planten igjen på avstand ved det ru, gråaktige løvverket og ved klasene av oransje til røde frukter som henger fra de tynne kvistene.
Det vitenskapelige navnet spiller et puss på den som prøver å utlede plantens opphav fra epitetet. «Sinensis» betyr «fra Kina», et land der arten aldri naturlig har forekommet, og feilen oppsto fra materialet Jean-Baptiste Lamarck undersøkte på slutten av 1700-tallet, merket med denne opprinnelsen. Siden botanisk nomenklatur følger prioritet fremfor bekvemmelighet, har denne geografiske misforståelsen fulgt arten i over to hundre år.
Det finnes ikke noe etablert norsk folkenavn for denne arten. Navnet grå cordia, som brukes her, er en beskrivende oversettelse av det gjengse engelske navnet grey-leaved cordia, akkurat som i den portugisiske versjonen av denne profilen. Denne teksten samler det botanisk litteratur registrerer om planten: formell klassifikasjon og synonymi, feltkjennetegn, økologi i tørre miljøer, fenologi, beskrevet kjemisk sammensetning og bevaringsstatus. En annen profil innenfor samme slekt på dette nettstedet er Cordia lutea (muyuyo).
Taksonomi for Cordia sinensis
Det aksepterte navnet er Cordia sinensis Lam., bekreftet i International Plant Names Index under registreringsnummer 114552-1 og anerkjent som akseptert av Plants of the World Online. Protologen finnes i første bind av Tableau encyclopédique et méthodique, side 423, utgitt i 1792. Klassifikasjonen følger avgrensningen som brukes av Kew:
- Rike: Plantae
- Rekke: Streptophyta (angiospermer; Magnoliophyta i tradisjonell nomenklatur)
- Klasse: Equisetopsida (Magnoliopsida i eldre klassifikasjoner)
- Underklasse: Magnoliidae
- Orden: Boraginales
- Familie: Boraginaceae Juss.
- Underfamilie: Cordioideae
- Slekt: Cordia L.
- Art: Cordia sinensis Lam. (1792)
Synonymer
Arten har samlet en omfattende synonymi, resultatet av uavhengige beskrivelser gjort på fjerne punkter innenfor et utbredelsesområde som strekker seg over to kontinenter. Navnene nedenfor er oppført som synonymer hos Plants of the World Online, med de homotypiske merket:
- Cordia angustifolia Roxb.
- Cordia cuneata B.Heyne ex A.DC.
- Cordia gharaf Ehrenb. ex Asch.
- Cordia oblongifolia Hochst. ex A.DC.
- Cordia reticulata Roth
- Cordia rothii Roem. & Schult.
- Cordia senegalensis var. pelida DC.
- Cordia subopposita A.DC.
- Gerascanthus gharaf (Ehrenb. ex Asch.) Borhidi
- Gerascanthus sinensis (Lam.) Borhidi (homotypisk)
- Lithocardium rothii (Roem. & Schult.) Kuntze
- Quarena sinensis (Lam.) Raf. (homotypisk)
Det er verdt å nevne en rettelse som sirkulerer dårlig i ikke-spesialiserte kilder: Cordia nevillii Alston er ikke et synonym for denne arten, men et eget takson, beskrevet for Ceylon og anerkjent som søsterart i Warfas revisjon fra 1990.
Etymologi
Slektsnavnet hedrer Valerius Cordus, tysk botaniker og farmasøyt som levde fra 1515 til 1544 og døde tjueni år gammel, men etterlot seg et verk betydelig nok til at Linnaeus oppkalte en slekt etter ham. Artsepitetet kommer fra senlatinsk sinensis, «fra Kina», og forblir et vitnesbyrd om en opprinnelsesfeil i materialet Lamarck undersøkte. IPNI selv bevarer «Kina» som en opprinnelsesmerknad i navneregistreringen, og bevarer dermed det dokumentariske sporet av feilen.
Morfologisk beskrivelse
Veksten varierer betydelig avhengig av vanntilgangen. I åpen, steinete bushland oppfører planten seg som en lav, tett busk med filtret krone og forgrening fra bunnen, mens den langs elvesenger, der grunnvannet er innen røttenes rekkevidde, når opp som et tre på tre til tolv meter, med flere stammer og tynne, hengende greiner. Helheten har et gråaktig utseende, resultatet av den korte behåringen og bladenes tørre struktur, og det er nettopp denne tonen som har gitt arten dens gjengse engelske navn.
Blader
Bladene sitter på en nokså uregelmessig måte på samme individ, snart motsatte, snart nesten motsatte, snart spredte, noe som allerede har forårsaket forvirring i eldre bestemmelsesnøkler. Bladplaten er eggformet til omvendt eggformet og måler to til tolv centimeter i lengden ved en til fire og en halv centimeter i bredden, med avsmalnende basis og avrundet spiss. Overflaten er glatt eller lett håret og alltid ru å ta på, med den sandpapirlignende teksturen som kjennetegner mange vedaktige Boraginaceae. Bladstilken måler omkring ti millimeter og bærer lange, bleke hår, en detalj som er nyttig når materialet er tørket.
Blomster
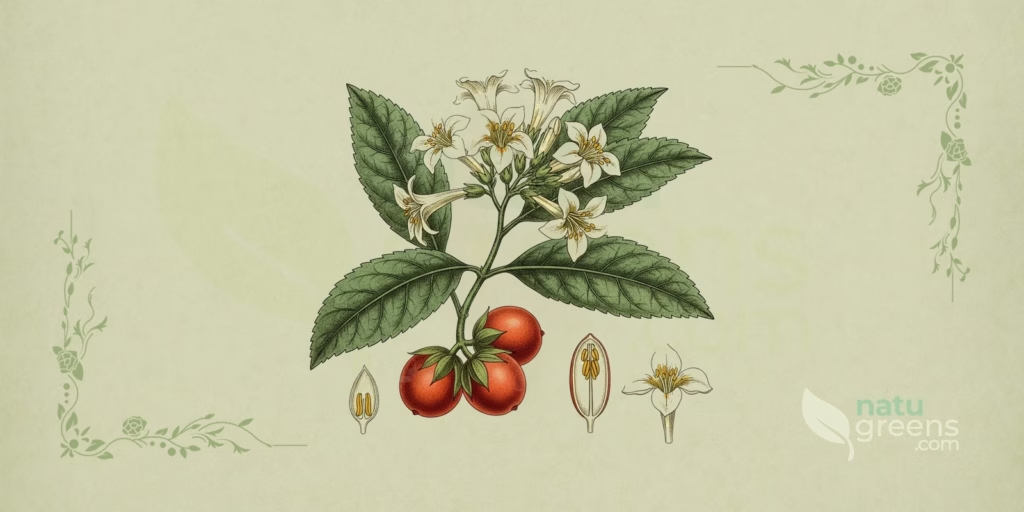
Blomstene sitter samlet i endestilte cymer på seks til sju centimeter, hvite eller kremfargede, med en urneformet krone på åtte til ni millimeter. Begerflikene bærer korte, myke, gulbrune hår, som blir mørkere etter hvert som blomsten visner. Burkill registrerte blomstenes søtlige duft hos populasjoner i Vest-Afrika, en karakter som stemmer overens med insektbestøvningen som observeres i slekten.
Frukter og frø
Frukten er en kjegleformet steinfrukt som modnes fra oransje til levende rødt, måler sju til tjue millimeter og ender i en påfallende forlenget spiss. Fruktene sitter samlet i klaser som er synlige på avstand, noe som gjør planten umiskjennelig i riktig sesong. Fruktkjøttet er søtt og klissete, nesten gummiaktig, og omslutter ett til fire harde, rynkete frø i kremgul farge.
Bark og greiner
Barken på stammen er brun til kremgrunn og sprekker langsgående i en tynn borke, mens den på de unge grenene forblir glatt og mørkegrå. Rotsystemet er dypt og oppsøker vann i sandete senger, en omstendighet som forklarer artens preferanse for bredder av periodiske vannløp. Planten reagerer godt på beskjæring og skyter lett igjen fra stubben.
Utbredelse og habitat
Det naturlige utbredelsesområdet dekker et sammenhengende belte av sesongtørre landområder, som Plants of the World Online oppsummerer som «fra Afrika til det indiske subkontinentet». I Afrika strekker arten seg fra Senegal, Mauritania og Kapp Verde til Egypt, Sudan, Eritrea, Etiopia, Somalia, Kenya og Tanzania, og fortsetter nedover gjennom den østlige tørre korridoren til Mosambik, Zimbabwe, Namibia, Botswana og det nordlige Sør-Afrika. Den forekommer også på Madagaskar og Socotra. I Asia når den Den arabiske halvøy, Levanten, Pakistan, en stor del av India, Sri Lanka og er registrert i Myanmar.
Det typiske habitatet er tørr elvenær vegetasjon, der planten danner samfunn med Salvadora persica, samt åpen bushland i lavtliggende aride og semiaride strøk. Termitthauger og kystnære kratt hører også til de dokumenterte miljøene. World Agroforestry Centres agroforstlige database avgrenser forekomsten mellom havnivå og femten hundre meters høyde, med en gjennomsnittlig årlig nedbør mellom seks hundre og tusen millimeter, selv om arten overlever i betydelig tørrere lommer når den har tilgang til grunnvann. De foretrukne jordtypene er alluviale, sandete, rødlateritt eller steinete, alltid med god drenering.
Det finnes ingen dokumentert invasiv atferd for arten utenfor dens naturlige utbredelsesområde, og den er ikke oppført på listen over planter for Brasils territorium i Flora e Funga do Brasil, verken som hjemmehørende eller som forvillet.
Dyrking
Formering ved frø er den vanlige metoden og byr ikke på store vanskeligheter. Fruktene bør høstes når de oppnår en intens oransje farge, tidspunktet der spireevnen er maksimal, og den agroforstlige litteraturen angir spiringsrater på opptil åtti prosent i godt forvaltede partier. Frøene har ortodoks lagringsatferd, noe som gjør det mulig å oppbevare dem tørre og kalde over lange perioder uten merkbart tap av spireevne, og et kilo rommer omkring seks tusen fem hundre stykker. Vegetativ formering ved vedaktige stiklinger praktiseres i planteskoler i aride soner, selv om den er mindre dokumentert enn frøveien.
Plantekravene er beskjedne og reflekterer artens økologi. Full sol er obligatorisk, jorden må drenere raskt, og overskytende vedvarende fuktighet i rotsonen er feilen som oftest skader planter i planteskolen. Planten tåler ekstrem varme og lange perioder uten regn, men tåler ikke frost, noe som begrenser eksperimentell dyrking til regioner med mild vinter. Veksten er relativt rask for en art fra tørre landområder.
Under drift tåler arten uttynning, kroneskjæring og full felling, og skyter kraftig igjen fra stubben, en egenskap som gjør den nyttig i agroforstlige systemer i tørre landområder. Den konsulterte agroforstlige databasen oppgir ikke skadedyr eller sykdommer av økonomisk betydning knyttet til planten. Det reelle presset som observeres i felt, er beite: geiter, sauer, storfe og kameler oppsøker aktivt løvet, og unge plantinger uten fysisk beskyttelse unnslipper sjelden. Frukthøsten følger klasenes uregelmessige modning og krever som regel mer enn én gjennomgang av samme plante.
Fenologi
Artens reproduktive sykluser følger regnmønsteret og viser to topper i løpet av året i Øst-Afrika. Blomstringen konsentreres mellom desember og februar, med en andre episode i august, og fruktsettingen løper fra april til juni, gjentatt i desember. Denne bimodaliteten forklarer hvorfor det er vanlig å finne blomstrende individer side om side med andre som allerede er tynget av modne frukter, innenfor samme populasjon.
De hvite, små og duftende blomstene tiltrekker insekter, det dominerende bestøvningsmønsteret i Cordia. Spredningen er utpreget zookor: aper, bavianer og fugler spiser det sukkerholdige, klissete fruktkjøttet og fungerer som de viktigste spredningsagentene for frøene, noe som er med på å forklare plantens utbredelse langs elvenære korridorer, nettopp de rutene denne faunaen følger.
Beslektede arter og forvekslinger
Å identifisere Cordia sinensis i felt krever oppmerksomhet mot en håndfull planter som deler habitat eller generelt utseende:
- Cordia africana Lam.: et betydelig større tre, med bred krone og store, hjerteformede blader, med iøynefallende blomsterstander. Opptar fuktigere høysletter, ikke de tørre lavtliggende elvesengene.
- Cordia myxa L.: den vanligste forvekslingen, særlig i India og Pakistan, der fruktene fra flere Cordia-arter får samme folkelige navn. Den skiller seg ut ved sin større størrelse, bredere blader og større frukter med rikelig slimete fruktkjøtt.
- Cordia nevillii Alston: søsterarten. Warfa påviste i 1990 at materialet som tidligere ble behandlet som én enhet i Afrika, tilsvarer to taksa, der C. nevillii hovedsakelig er begrenset til det somalisk-masaiske domenet og også finnes i Sør-Arabia, India og på Ceylon. Skillet hviler på fine blomster- og bladkarakterer, og materiale uten blomst er som regel utilstrekkelig til å avgjøre saken.
- Salvadora persica L.: en konstant økologisk følgesvenn i de samme tørre elvesengene, og derfor den mest sannsynlige dobbeltgjengeren på avstand. Løvet er også blekt, men bladene er kjøttfulle, motsatte og glatte, fruktene er minuttiøse kuleformede bær, og familien er en annen, Salvadoraceae.
- Ziziphus mauritiana Lam.: en busk av lignende størrelse i de samme aride landskapene, umiddelbart adskillelig ved de parvise tornene ved nodene og bladene med tre nerver som går ut fra basis. Tilhører Rhamnaceae.
Fytokjemi
Den publiserte kjemiske karakteriseringen av arten konsentrerer seg om fenoliske forbindelser. En studie utført på overjordiske deler av materiale samlet i omegnen av Riyadh isolerte ni stoffer fra etylacetatfraksjonen av metanolekstraktet, listet nedenfor i alfabetisk rekkefølge:
- trans-kaffeinsyre
- protokatekusyre
- rosmarinsyre
- kaempferid-3-O-β-D-glukopyranosid
- kaempferid-3-O-α-L-ramnopyranosyl-(1→6)-β-D-glukopyranosid
- kaempferol-3-O-β-D-glukopyranosid
- kaempferol-3-O-α-L-ramnopyranosyl-(1→6)-β-D-glukopyranosid
- kvercetin-3-O-β-D-glukopyranosid
- metylrosmarinat
Rosmarinsyre og metylesteren dens fortjener oppmerksomhet fra et kjemotaksonomisk synspunkt, siden akkumuleringen av denne fenolsyren er et utbredt trekk innenfor Boraginaceae og går igjen i flere slekter av familien. Innenfor hele slekten Cordia er den mest omdiskuterte kjemiske markøren en annen: de meroterpenoide kinonene, en gruppe som omfatter kordiakromene og kordiakromen, og som litteraturen om naturprodukter behandler som en signatur for slekten. Disse kinonene konsentreres først og fremst i ved og røtter hos artene der de er undersøkt.
To observasjoner avslutter bildet. Fruktkjøttet skylder sin klissete konsistens til slimete polysakkarider, og stammen skiller ut en klar gummi, begge beskrivende trekk ved planten og ikke tegn på noen aktivitet. Når det gjelder pyrrolizidinalkaloider, hyppige i andre underfamilier av Boraginaceae, bringer den konsulterte bibliografien ingen publisert karakterisering av disse forbindelsene for Cordia sinensis, slik at tilskrivninger i den retningen som finnes i ikke-spesialiserte kilder, mangler et etterprøvbart analytisk grunnlag.
Historie og etnobotanikk
Lamarck beskrev formelt arten i 1792 ut fra materiale hvis registrerte opprinnelse pekte mot Kina, noe som ga epitetet som siden har fulgt den. Gjennom det nittende århundret beskrev samlere som arbeidet i India, Sudan, Etiopia og Senegal gjentatte ganger den samme planten under nye navn, noe som ga den omfattende synonymien som er registrert ovenfor. Først i 1990, med Ahmed Mumin Warfas revisjon publisert i Nordic Journal of Botany, ble komplekset omorganisert, og det nærstående artsparet ble tydelig avgrenset.
Folkenavnene tegner plantens kulturelle kart. På somali er den marer eller mareer, på swahili mkamasi og mnya mate, i Sudan og i arabiske dialekter gharaf, et navn som ga synonymet Cordia gharaf, og i Rajasthan gondi. På engelsk sirkulerer den som grey-leaved cordia eller grey-leaved saucer berry. Det finnes ikke noe etablert folkenavn på norsk, og grå cordia fungerer her som en beskrivende oversettelse av det gjengse engelske navnet.
Den mest konsistente etnografiske registreringen er ernæringsmessig. Nomadiske og agropastorale samfunn i Øst-Afrika og det nordvestlige India spiste de ferske fruktene, brukte det søte fruktkjøttet som søtningsmiddel i kornvelling, tilberedte drikker med det og lot det gjennomgå gjæring, av og til kombinert med tamarind. Gummien som ble skilt ut fra stammen, inngikk også i kosten. Som fôr inntok arten en sentral plass i tørre lands pastorale systemer, som en grønn reserve for geiter, sauer, storfe og kameler nettopp i de månedene der den urteaktige beitemarken forsvinner. Treet, hardt og med tett fiber, ble bearbeidet til verktøyskaft, spaserstokker, klubber, skjeer, rørepinner, krakker og deler til landlig byggverk.
En sikkerhetsadvarsel følger den historiske registreringen og fortjener å nevnes i dag: agroforstlige databaser som katalogiserer arten, signaliserer en abortfremkallende risiko forbundet med hjemmelagde rotpreparater. Denne opplysningen står her som advarsel, uten noen detaljering av tilberedning, og ingenting i denne profilen beskriver eller antyder bruk av planten hos mennesker eller dyr.
Bevaring
Den globale vurderingen utarbeidet av IUCNs rødliste klassifiserer Cordia sinensis som livskraftig, kategori LC. Begrunnelsen er direkte: utbredelsesområdet er enormt, arten er vanlig i store deler av det, og ingen dokumentert bruk når en skala som kan true populasjonene globalt. Det er ingen CITES-begrensning.
Dette betyr ikke fravær av lokalt press. Nedbrytningen av elvenære skoger i aride strøk, den vedvarende overbeitingen, uttak av ved og omdannelsen av flomsletter til jordbruksareal reduserer populasjoner på bestemte steder i Sahel, Afrikas horn og det nordvestlige India. Dette fortjener oppmerksomhet fordi planten er en funksjonell del av disse økosystemene: den stabiliserer sandete bredder, gir skygge, ernærer spredningsfauna og opprettholder buskap i den kritiske sesongen.
Programmer for gjenoppretting av tørre landområder og genbanksamlinger i India og Øst-Afrika inkluderer i økende grad arten, som i indiske agronomiske publikasjoner behandles som en underutnyttet fruktart fra varme, aride strøk.
Kuriositeter
- Epitetet sinensis peker mot et land der planten aldri har forekommet. Opprinnelsesfeilen kom med i den opprinnelige beskrivelsen fra 1792, overlevde på grunn av nomenklatorisk prioritet og står fortsatt registrert i IPNIs opprinnelsesmerknader.
- Slekten Cordia hedrer Valerius Cordus, som døde tjueni år gammel, i 1544, og likevel etterlot seg et farmakobotanisk verk innflytelsesrikt nok til å bestå to århundrer, inntil det ble navnet på en slekt.
- I Øst-Afrikas tørre elvesenger tilsvarer det å finne Cordia sinensis nesten det å finne Salvadora persica. De to danner et så konstant økologisk par at den ene tjener som indikator for den andre i raske vegetasjonsopptellinger.
- Et kilo frø rommer omkring seks tusen fem hundre stykker, og den ortodokse lagringsatferden gjør det mulig å oppbevare dem gjennom hele sesonger, en verdifull egenskap i gjenopprettingsprogrammer som er avhengige av uregelmessige avlinger.
- Fram til 1990 arbeidet botanikere med én enkelt art der man i dag anerkjenner to. Warfas revisjon skilte C. sinensis fra C. nevillii og tegnet på nytt utbredelseskartene for begge i Afrika og Asia.
Merk: dette innholdet er informativt og erstatter ikke profesjonell helserådgivning. Rådfør deg med lege eller fytoterapeut før du bruker medisinplanter, spesielt under graviditet, amming eller ved bruk av legemidler.
Referanser og vitenskapelige studier
Se Alle 9 Siterte Kilder
Fagfellevurderte Vitenskapelige Studier (2)
- DOI2011 Al-Musayeib, N.; Perveen, S.; Fatima, I.; Nasir, M.; Hussain, A. Antioxidant, Anti-Glycation and Anti-Inflammatory Activities of Phenolic Constituents from Cordia sinensis. Molecules, 16(12), 10214-10226. 2011. ↗
- DOI1990 Warfa, A. M. Taxonomy and Distribution of Cordia sinensis and C. nevillii (Boraginaceae), a Widespread Species Pair in Africa and Asia. Nordic Journal of Botany, 9(6), 649-656. 1990. ↗
Supplerende Lesning (7)
- 1994 Beentje, H. J. Kenya Trees, Shrubs and Lianas. National Museums of Kenya, Nairobi. 1994.
- 1985 Burkill, H. M. The Useful Plants of West Tropical Africa, 2. ed. Royal Botanic Gardens, Kew. 1985.
- IPNI. International Plant Names Index: Cordia sinensis Lam., registro 114552-1. Royal Botanic Gardens Kew, Harvard University Herbaria e Australian National Botanic Gardens. ↗
- 2020 IUCN. The IUCN Red List of Threatened Species: Cordia sinensis, categoria Pouco Preocupante (LC). 2020. ↗
- Lamarck, J.-B. Tableau encyclopédique et méthodique des trois règnes de la nature. Botanique, tomo 1, p. 423. Panckoucke, Paris. 1792.
- 2009 Orwa, C.; Mutua, A.; Kindt, R.; Jamnadass, R.; Anthony, S. Agroforestree Database: a Tree Reference and Selection Guide, versão 4.0. World Agroforestry Centre. 2009.
- POWO. Plants of the World Online: Cordia sinensis Lam. Royal Botanic Gardens, Kew. ↗