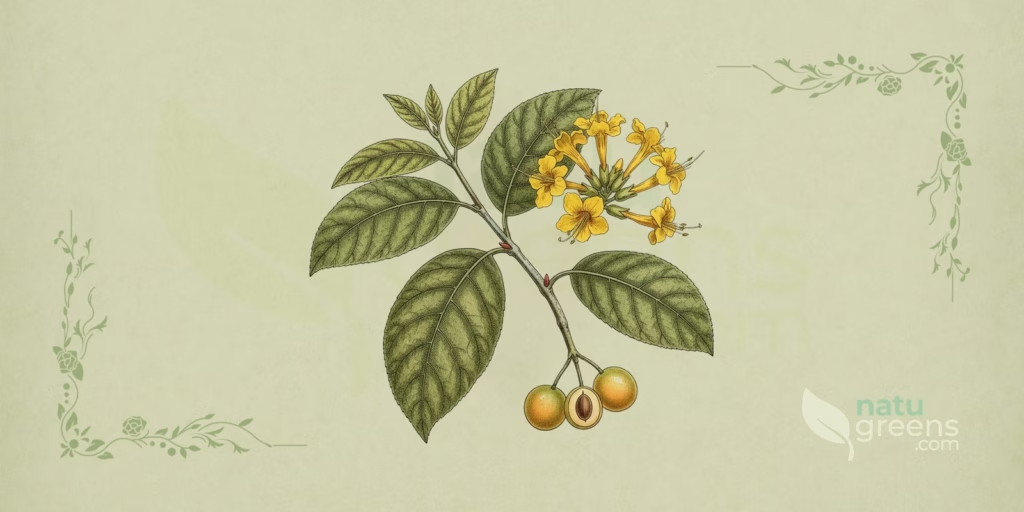
Cordia lutea er en sterkt forgrenet busk eller et lite tre i familien Boraginaceae, gjenkjennelig på lang avstand på de gule, trompetformede blomstene som dekker kronen store deler av året. Arten opptar de tørre lavlandsområdene i det vestlige Sør-Amerika, fra Colombia til Peru, og når også Galápagos-øygruppen, hvor den hører til blant de vanligste hjemmehørende plantene i den tørre kystsonen. I de tørre skogene i det nordvestlige Peru er den et strukturelt element i landskapet, og deler buskskiktet med algarrobo- og sapotetrær.
Det folkelige navnet varierer etter region. Muyuyo er den vanlige formen i Ecuador og på Galápagos, mens overo og flor de overo brukes i det nordlige Peru. På engelsk fikk planten hagebruksnavnet yellow geiger, i motsetning til orange geiger, som brukes om Cordia sebestena. Det finnes ikke noe etablert norsk navn for denne arten, noe som gjør det vitenskapelige navnet til den sikreste referansen for den som søker arten i planteskoler eller herbarier.
Det som gjør Cordia lutea bemerkelsesverdig, rekker utover den prydmessige appellen. Den er en av få neotropiske Boraginaceae med et velbeskrevet heterostylt reproduksjonssystem, understøtter et nettverk av dag- og nattbestøvere på oseaniske øyer fattige på insekter, og gir frukter med et fruktkjøtt så slimete at andes- og kystsamfunn brukte den som lim. Denne profilen samler den formelle taksonomien, den diagnostiske morfologien, økologien i tørre soner, den beskrivende fytokjemien og den historiske bruksregistreringen, uten noen anbefaling om nåtidig bruk. For enda en grundig botanisk profil på dette nettstedet, se Camellia sinensis (grønn te).
Taksonomi for Cordia lutea
Cordia lutea tilhører Boraginaceae i den brede avgrensningen som APG IV bruker, innenfor underfamilien Cordioideae. En del av litteraturen behandler Cordiaceae som en selvstendig familie, en ordning som ikke endrer artens relative plassering. Slekten Cordia omfatter noen hundre pantropiske arter, med størst mangfold i Neotropen.
- Rike: Plantae
- Divisjon: Tracheophyta (angiospermer)
- Klasse: Magnoliopsida
- Orden: Boraginales
- Familie: Boraginaceae Juss.
- Underfamilie: Cordioideae
- Slekt: Cordia L.
- Art: Cordia lutea Lam., 1791
Protologet ble utgitt i første bind av Tableau encyclopédique et méthodique des trois règnes de la nature, Botanique, av Jean-Baptiste de Lamarck, på side 421, i 1791. Registreringen finnes i International Plant Names Index under identifikasjonsnummer 274993-2, og Plants of the World Online opprettholder binomiet som akseptert navn, uten gjeldende forslag om omkombinasjon.
Synonymien er lang, en gjenspeiling av de gjentatte slektsomorganiseringene som Boraginales gjennomgikk i løpet av 1800- og 1900-tallet. Plants of the World Online anerkjenner omtrent et dusin underordnede navn, deriblant:
- Calyptracordia rotundifolia (Ruiz & Pav.) Friesen
- Coilanthera rotundifolia (Ruiz & Pav.) Raf.
- Cordia flava (Andersson) Gürke
- Cordia marchionica Drake
- Cordia rotundifolia Ruiz & Pav.
- Ectemis lutea (Lam.) Raf.
- Firensia lutea (Lam.) Raf.
- Gerascanthus luteus (Lam.) Borhidi
- Gerascanthus rotundifolius (Ruiz & Pav.) Friesen
- Lithocardium flavum (Andersson) Kuntze
- Lithocardium rotundifolium (Ruiz & Pav.) Kuntze
- Varronia flava Andersson
- Varronia rotundifolia (Ruiz & Pav.) A. DC.
En nomenklatorisk advarsel er på sin plass: i ikke-spesialiserte kilder sirkulerer kombinasjonen Varronia lutea, tilskrevet Borhidi, som ikke tilsvarer noe gyldig publisert navn for denne planten. Rekombinasjonen av Borhidi som faktisk finnes, er Gerascanthus luteus.
Når det gjelder etymologien, hedrer slektsnavnet Valerius Cordus (1515-1544), en tysk botaniker og farmasøyt hvis verk om materia medica sirkulerte i hele renessansens Europa. Epitetet kommer fra det latinske luteus, gul, en direkte henvisning til kronens farge, artens mest iøynefallende kjennetegn i felt.
Morfologisk beskrivelse
Det er en tett forgrenet busk eller et lite tre, mellom 2 og 8 meter høyt, med åpen krone og spredt vekstform. Stammen overstiger sjelden 20 centimeter i diameter og er som regel kroket, dekket av grå, fint sprukket bark. I de tørreste sesongene mister planten deler av eller alle bladene, en løvfellende atferd som varierer etter nedbørsregimet i hver populasjon.
Blader
Bladene er spredte, enkle og uten stipler, fire til ti centimeter lange. Omrisset går fra eggformet til nesten rundt, med avrundet til butt spiss og finttannet til kjervet kant. Oversiden er ru å ta på og nesten glatt, mens undersiden bærer hår fordelt langs hovednerven og bladplaten. Bladstilken er kort, noe som gir den bebladede grenen et kompakt uttrykk sett ovenfra.
Blomster
Blomstene oppstår i endestilte kvaster og konsentrerer artens fulle diagnostiske verdi. Begeret er sylindrisk, omtrent 10 millimeter langt og 5 til 7 millimeter bredt, langsgående stripet og blivende. Kronen er sammenvokst, levende gul, trompetformet, og måler 2 til 4 centimeter i diameter ved svelget, med fem til åtte utfoldede flikker. Støvbærerne varierer også fra fem til åtte og sitter i røret. Duften er søtlig og merkbar på kort avstand.
Arten er heterostyl, med to blomsterformer fordelt på ulike individer. Den ene har lang griffel og lavtsittende støvbærere, den andre kombinerer kort griffel med høytsittende støvbærere. Denne gjensidige arkitekturen fremmer overføring av pollen mellom komplementære former, og bestøvningsforsøk viser markant høyere fruktsetting ved krysninger mellom legitime former.
Frukter og frø
Frukten er en kuleformet steinfrukt på 8 til 12 millimeter i diameter, hvit og gjennomsiktig ved modenhet, sittende ved basen på det blivende begeret, som forblir grønt og stripet. Fruktkjøttet er rikelig slimete og fester seg lett til overflater, en egenskap med direkte økologiske konsekvenser. Smaken begynner behagelig søt og går over til bitter i løpet av få sekunder. Hver frukt rommer ett til fire frø beskyttet av en hard endokarp.
Stengel og rot
Stenglene er lange, slanke og oppreiste, med unge, hårete grener som mister behåringen ved forvedning. Den grå barken løsner i tynne flak hos eldre eksemplarer. Planten skyter lett igjen fra basen og slår rot fra forvedede stiklinger, en egenskap som lenge har vært utnyttet til å anlegge levegjerder i de tørre sonene i Ecuador og Peru.
Utbredelse og habitat
Det hjemlige arealet dekker det vestlige Sør-Amerika og omfatter Colombia, det kontinentale Ecuador, det insulære Ecuador på Galápagos-øygruppen og Peru. På peruansk territorium følger arten Stillehavskystlinjen og de tørre interandinske dalene, og inngår i de tørre skogene i Tumbes, Piura og Lambayeque. På Galápagos regnes den som hjemmehørende og opptar den tørre sonen i lavlandet, med sterk tilstedeværelse nær kystlinjen.
Utenfor det naturlige arealet er Cordia lutea introdusert på Hawaii og Marquesasøyene. På øya Hawaii er den registrert som forvillet, og risikovurderingen for invasivitet anvendt på øygruppen ga arten en lav score, uten dokumentert negativ innvirkning utenfor det opprinnelige utbredelsesområdet inntil videre. Dette resultatet står i kontrast til atferden hos andre arter av slekten på øyer i Stillehavet, noe som understreker behovet for fortsatt overvåking.
Det karakteristiske biomet er det sesongtørre tropiske biomet. Bestandene fordeler seg fra havnivå til rundt 1500 meter, med punktvise registreringer i høyere høyder i de interandinske dalene. Planten trives ved lav nedbørsmengde og tåler lange perioder uten regn, og oppfører seg som en fakultativ xerofytt som reagerer raskt på nedbørsimpulser. Når det gjelder substrat, forekommer den på sandete jorder, på svellende leire fra tidligere fuktige elveleier og på arealer med forhøyet salinitet, en toleranse som er uvanlig blant prydtrær med iøynefallende blomstring.
Dyrking
Formering skjer ved frø og ved stiklinger, og begge veier brukes i restaureringsplanteskoler i Ecuador og Peru. Frøene viser hvile knyttet til den harde endokarpen og slimet som omgir frukten, så grundig rensing av fruktkjøttet er første trinn for ethvert parti. Mekanisk skarifisering og behandling med gibberellinsyre nevnes i litteraturen som midler til å ensarte spiringen, og peruanske forsøk viser at passasje gjennom fordøyelseskanalen hos naturlige spredere også endrer frøenes spiringsrespons.
Stikling er den mest direkte veien for produksjon i stor skala. Forsøk utført i provinsen Santa Elena, på den ecuadorianske kysten, viser tilfredsstillende rotfesting av stiklinger selv uten bruk av rotingsmiddel, med resultater som støtter bruken av arten i fôrplantinger og levegjerder. Det forvedede materialet reagerer godt, og gjenskuddstettheten er som regel høy.
I felt krever planten full sol og godt drenert jord. Den tåler langvarig tørke, salinitet og fattige jorder, men tåler ikke frost, noe som begrenser dyrkingen til tropiske og subtropiske regioner uten risiko for negative temperaturer. Sparsom vanning er tilstrekkelig etter etablering, og overflødig fuktighet i substratet er den vanligste feilen i planteskolen.
Registreringene av spesifikke skadedyr er få. På Hawaii er arten identifisert som alternativ vertsplante for lobata-skjoldlusen, noe som har medført plantehelsemessig oppmerksomhet i øygruppens prydplantinger. Skjoldlus opptrer generelt på grenene når ventilasjonen er utilstrekkelig. Innhøstingen av frukter finner sted når steinfrukten oppnår den hvite, gjennomsiktige fargen og fruktkjøttet mykner, tidspunktet hvor frøene allerede er modne og uttrekkingen er lettere.
Fenologi
Den årlige syklusen ble fulgt i detalj i Reserva Ecológica Privada Chaparrí, i Chongoyape, Lambayeque, mellom juli 2004 og juni 2005. Den vegetative utviklingen foregår hele året og topper mellom februar og april, med verdier nær 60 prosent. Skuddfremstillingen konsentreres mellom januar og juni, med et maksimum på rundt 20 prosent i januar og februar. Blomstringen dominerer fra desember til juni, likeledes rundt 20 prosent i gjennomsnitt, mens fruktsettingen fordeler seg over hele året og når sitt maksimum på 14 prosent i august, med grønne og modne frukter på samme plante. Temperaturen viste seg korrelert med alle tre fasene.
Bestøvningen kombinerer dag- og nattaktive agenter. Tømrerbier er de mest effektive dagbesøkende, og på Galápagos ivaretas denne rollen av Xylocopa darwini, øygruppens eneste hjemmehørende bie og en ekstrem generalist i de lokale bestøvningsnettverkene. Om natten kommer sommerfuglene til, som viste seg mer effektive i pollenoverføring mellom ulike planter. Krysningssystemet er blandet, med relativt lav fruktproduksjon som følge av kombinasjonen av selvbestøvning og krysspollinering i et miljø med få tilgjengelige insekter.
Spredningen er overveiende zookor. Fugler og lavaøgler spiser fruktene på Galápagos, og det klebrige fruktkjøttet fester seg til kroppen til store dyr, deriblant kjempeskilpadder og sjøfugler, noe som åpner en ekstra epizookor transportvei. I det nordlige Peru spiser sechurareven, Lycalopex sechurae, fruktene og hører til de dokumenterte sprederne av arten i tørrskogen.
Beslektede arter og forvekslinger
Innenfor slekten løser kronens farge og fruktens utseende de fleste tvilstilfeller. Tre slektninger konsentrerer de vanligste forvekslingene i samlinger og hagebruk:
- Cordia sebestena L.: oransjerød krone, ikke gul, og større, mer lærlignende blader. Dette er arten som bærer hagebruksnavnet orange geiger, og som forekommer naturlig i Karibia.
- Cordia sinensis Lam.: små, kremgule blomster, med frukter som modner i toner fra oransje til rødt, i motsetning til den gjennomsiktige hvite fargen hos Cordia lutea. Afroasiatisk utbredelse, med en tilsvarende økologisk rolle i tørre soner.
- Cordia subcordata Lam.: oransje krone, hjerteformede blader av større størrelse og forvedet frukt med flytende endokarp tilpasset havspredning. Forekommer på øyene i Stillehavet og Det indiske hav, hvor den kan sameksistere med introduserte bestander av Cordia lutea.
Utenfor Boraginaceae gjelder den vanligste forvekslingen Tecoma stans (L.) Juss. ex Kunth, fra familien Bignoniaceae, som viser gule, rørformede blomster med liknende utseende på avstand. Skillet er umiddelbart ut fra bladene, sammensatte og uparfinnede hos Tecoma stans og enkle hos Cordia lutea, og ut fra frukten, en avlang, lineær kapsel som ikke har noe med den hvite steinfrukten hos Boraginaceae å gjøre.
En identifikasjonsadvarsel fortjener omtale. Boraginaceae samler slekter som opphoper levertoksiske pyrrolizidinalkaloider, deriblant Echium, Heliotropium og Symphytum. Sterilt vegetativt materiale av Boraginaceae er vanskelig å bestemme med sikkerhet, og innsamlinger uten blomst eller frukt tillater ikke at man med sikkerhet skiller Cordia lutea fra disse naboene.
Fytokjemi
Den best karakteriserte kjemiske profilen er blomstenes. En innledende fytokjemisk vurdering utført med materiale fra Otuzco, i Peru, identifiserte fenolforbindelser, leukoantocyanidiner og flavonoider som de dominerende klassene i de metanoliske og etanoliske ekstraktene oppnådd ved refluks. Kvantifiseringen ved høytrykksvæskekromatografi registrerte 60,63 milligram rutin og 0,558 milligram kvercetin per gram tørt prøvemateriale, noe som gjør rutin til den dominerende flavonoiden med bred margin.
En tidligere undersøkelse av den kjemiske sammensetningen, sitert i samme arbeid, fant fraksjoner av rutin og kvercetin i samme prosentvise størrelsesorden og registrerte fettsyrer blant bestanddelene, med linolsyre, palmitinsyre og glyserylheksadekanoat i innhold nær 0,1 prosent. Analyse ved gasskromatografi koblet til massespektrometri av det etanoliske blomsterekstraktet registrerte dessuten butylestere av langkjedede fettsyrer og gibberellinsyre.
Samme undersøkelse fant ingen pyrrolizidinalkaloider i de analyserte blomstene. Funnet er bemerkelsesverdig fordi denne gruppen av metabolitter er hyppig i Boraginaceae, og fraværet i én prøve strekker seg ikke automatisk til andre populasjoner, andre plantedeler eller andre fenologiske faser.
I fruktene er den dominerende komponenten slimet, et polysakkaridkompleks ansvarlig for fruktkjøttets viskøse og klebrige konsistens. Det er denne fraksjonen som gir den modne frukten evnen til å feste seg til overflater, og som understøttet den historiske bruken som beskrives nedenfor. Barken og bladene konsentrerer fenolforbindelser, uten at det finnes en like detaljert kvantitativ karakterisering for dem som for blomstene.
Historie og etnobotanikk
Lamarck beskrev formelt arten i 1791 på grunnlag av søramerikansk materiale, i en tid hvor de peruanske samlingene fra Ruiz og Pavón forsynte de europeiske herbariene. Ikke tilfeldig endte navnet Cordia rotundifolia, publisert av disse to spanske botanikerne, i synonymien til Lamarcks binomium.
De mest karakteristiske bruksregistreringene for planten har intet medisinsk ved seg. Fruktens slim ble brukt som papirklister og som hårfestemiddel av ecuadorianske samfunn, en anvendelse som er blitt gjenundersøkt de siste årene som kosmetisk råvare ved Universidad Politécnica Salesiana. Treet ble brukt til bygging av båter, kanoer og enkle strukturer i kystbosetningene. Ved Ecuadors kyst ble arten innlemmet i fôrsystemer, og utnyttet den løvtettheten den oppnår, og over hele utbredelsesområdet plantet bøndene den som levegjerde og felte den til brensel. Den modne frukten ble spist rå som villfrukt, selv om den etterfølgende bitterheten begrenset appetitten på den.
Etnobotaniske undersøkelser utført i Peru mellom 1990- og 2000-tallet, deriblant studien gjennomført i provinsen Canta, i Lima, registrerte Cordia lutea blant plantene som inngikk i det huslige repertoaret til andes- og kystsamfunnene. Disse oversiktene dokumenterer den kulturelle hukommelsen knyttet til arten og utgjør ingen form for anbefaling. På Galápagos opptrer planten i de historiske listene over nyttige planter fra øygruppens tidligste bosetninger, hovedsakelig på grunn av frukten og treet.
Bevaring
Cordia lutea ble vurdert på IUCNs rødliste og klassifisert som Livskraftig, i vurderingen fra 2019 utført innenfor rammene av Global Tree Specialist Group. Begrunnelsen bygger på den brede utbredelsen, den tallrike bestanden og fraværet av relevante trusler identifisert for arten i hele dens utbredelsesområde. Den opptrer ikke i noen av CITES’ vedlegg.
Den beroligende lesningen av den individuelle statusen bør ikke skjule sårbarheten i miljøet der planten lever. De tørre skogene i det nordvestlige Peru og de tørre kystkrattene i Ecuador hører til blant de mest fragmenterte økosystemene i Sør-Amerika, presset av jordbruksekspansjon, uttak av brensel og geitebeiting. Arten brukes ofte i programmer for gjenoppretting av forringede arealer i de tørre sonene i begge land, nettopp på grunn av den lette formeringen og toleransen for vanskelige jordsmonn.
Det finnes dessuten en indirekte bevaringsdimensjon. I Chaparrí inngår Cordia lutea i gruppen av arter som gir mat til hvitvingeguanen, Penelope albipennis, en endemisk fugl fra det nordlige Peru og en av de mest truede på kontinentet. Fenologiske studier av dette kostholdet ble nettopp utformet for å forstå den sesongmessige tilgjengeligheten av ressurser for fuglen, noe som gir planten en funksjonell rolle som overgår dens egen risikokategori.
Kuriositeter
- Arten er distyl: det finnes individer med lang griffel og lavtsittende støvbærere og individer med motsatt oppstilling, og fruktsettingen er kun robust når pollen reiser mellom de to komplementære typene.
- Nattsommerfugler overgår bier i pollenoverføring mellom ulike planter, et kontraintuitivt resultat for en gul, iøynefallende og om dagen duftende blomst.
- Fruktkjøttet er så klebrig at det har tjent som papirklister og som hårfestemiddel, og det utforskes fortsatt som kosmetisk råvare.
- På Galápagos mineres bladene av sommerfuglen Bucculatrix cordiaella, hvis artsnavn direkte viser til vertsplanten.
- I den engelskspråklige handelen med prydplanter er arten yellow geiger, som danner par med orange geiger, navnet som gis til Cordia sebestena.
Merk: dette innholdet er informativt og erstatter ikke profesjonell helserådgivning. Rådfør deg med lege eller fytoterapeut før du bruker medisinplanter, spesielt under graviditet, amming eller ved bruk av legemidler.
Referanser og vitenskapelige studier
Se Alle 10 Siterte Kilder
- Charles Darwin Foundation. Galapagos Species Checklist: Cordia lutea Lam. Fundación Charles Darwin, Puerto Ayora, Ecuador.
- 2007 De la Cruz, H.; Vilcapoma, G.; Zevallos, P. A. Ethnobotanical study of medicinal plants used by the Andean people of Canta, Lima, Peru. Journal of Ethnopharmacology, 111(2), 2007.
- International Plant Names Index. Cordia lutea Lam., Tabl. Encycl. 1: 421 (1791), ID 274993-2. Royal Botanic Gardens Kew, Harvard University Herbaria e Australian National Botanic Gardens.
- 2019 IUCN. The IUCN Red List of Threatened Species: Cordia lutea. Vurdering fra 2019, Global Tree Specialist Group.
- Lamarck, J.-B. Tableau encyclopédique et méthodique des trois règnes de la nature. Botanique, vol. 1, p. 421. Paris, 1791.
- 2008 Martos, J. R.; Scarpati, M.; Rojas, C.; Delgado, G. E. Fenología de algunas especies que son alimento para la pava aliblanca Penelope albipennis. Revista Peruana de Biología, 15(2), 2008.
- 1999 McMullen, C. K. Flowering Plants of the Galápagos. Cornell University Press, Ithaca, 1999.
- 2011 McMullen, C. K. Pollination of the heterostylous Galápagos native Cordia lutea (Boraginaceae). Plant Systematics and Evolution, 2011.
- Plants of the World Online. Cordia lutea Lam. Royal Botanic Gardens Kew, London.
- 2019 Venegas Casanova, E. A.; Gómez Alva, A. M.; Chávez León, A. N.; Valdiviezo Campos, J. E.; Ormeño Llanos, M.; Vásquez Corales, E. Evaluación fitoquímica preliminar del extracto metanólico y etanólico de las flores de Cordia lutea Lam. (Boraginaceae) y su capacidad antioxidante. Arnaldoa, 26(1): 359-368, 2019.