Zea mays inntar en enestående posisjon blant kulturplanter, fordi intet annet gress er blitt så dyptgripende omformet av menneskelig seleksjon at det mistet evnen til å formere seg på egen hånd. Det er en oppreist, ettårig urteaktig plante av stor størrelse, énbo, tilhørende familien Poaceae og opprinnelig fra Mesoamerika, hvis kolbe, omsluttet av dekkblader, er fullstendig avhengig av noen som tresker og sår den på nytt for at arten skal fortsette å eksistere.
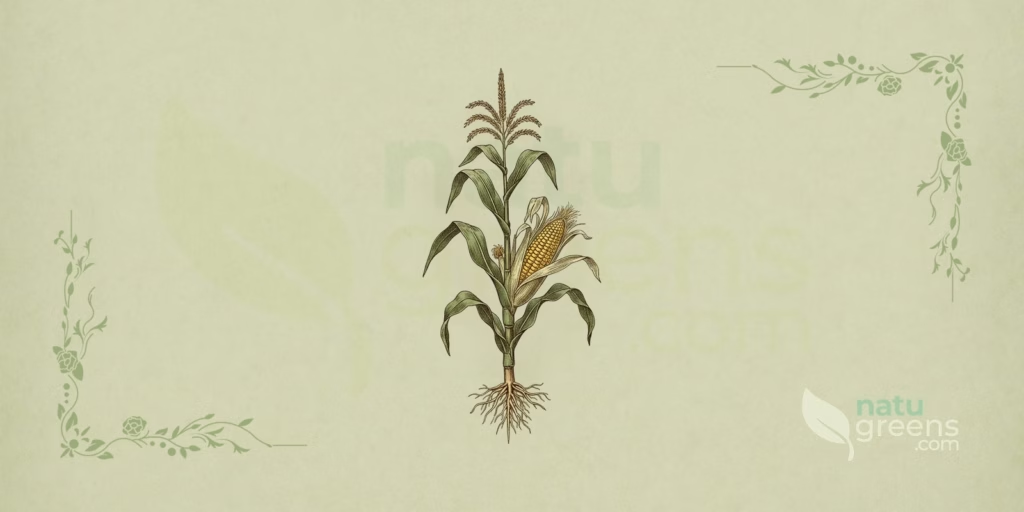
Familien Poaceae omfatter rundt 780 slekter og over elleve tusen arter, deriblant ris, sukkerrør og hvete. Innenfor dette enorme mangfoldet skiller mais seg ut med en reproduktiv arkitektur uten sidestykke: hannblomstene sitter på toppen av stengelen, samlet i en åpen topp som bøndene kaller maistoppen, mens hunnblomstene konsentreres i sideliggende kolber beskyttet av lag med agnblader. De lange, silkeaktige arrene som stikker frem fra kolbens spiss, fullender et sett kjennetegn som gjør identifiseringen umiddelbar, selv for den som aldri har åpnet en botanisk bestemmelsesnøkkel.
Denne profilen omhandler selve planten. Den samler den taksonomiske plasseringen slik den er bekreftet i internasjonale databaser, morfologien som skiller den fra lignende gress, den fenologiske atferden på jordet, den kjemiske sammensetningen beskrevet i litteraturen og den lange domestiseringshistorien som forvandlet et meksikansk gress med små aks til verdens landbruksvekst med størst volum.
Taksonomi
Det aksepterte navnet er Zea mays L., publisert av Carl von Linné i Species Plantarum (bind 2, side 971), i 1753. Oppslag i International Plant Names Index bekrefter binomenet, forfatterskapet og referansen til den opprinnelige publikasjonen, og Plants of the World Online beholder samme navn som akseptert, uten noe pågående forslag om omplassering. Den fullstendige hierarkiske klassifiseringen er oppsummert nedenfor.
- Rike: Plantae
- Rekke: Magnoliophyta (dekkfrøplanter)
- Klasse: Liliopsida (enfrøbladede)
- Orden: Poales
- Familie: Poaceae Barnhart
- Underfamilie: Panicoideae
- Tribus: Andropogoneae
- Slekt: Zea L., 1753
- Art: Zea mays L., 1753
Aksepterte synonymer
Artens synonymi er kort, noe som var forventet for en plante som ble beskrevet tidlig og alltid gjenkjent under samme navn. Plants of the World Online registrerer fem heterotypiske og homotypiske synonymer.
- Mays americana Baumg.
- Mays zea Gaertn.
- Mayzea cerealis Raf.
- Thalysia mays (L.) Kuntze
- Zea segetalis Salisb.
Aksepterte underarter
Tre underarter anerkjennes for tiden, og bare én av dem tilsvarer dyrket mais. De to andre er teosinter, ville meksikanske gress med herdede småaks, som lenge ble behandlet som planter av en annen slekt.
- Zea mays subsp. huehuetenangensis (Iltis & Doebley) Doebley, fra nordvestlige Guatemala
- Zea mays subsp. mays, den dyrkede maisen
- Zea mays subsp. parviglumis Iltis & Doebley, fra Balsas-elvens dal i Mexico
Det er verdt å nevne en aktiv avgrensningsuenighet: teosinten fra det sentrale meksikanske høylandet opptrer i store deler av den agronomiske litteraturen som Zea mays subsp. mexicana, men Plants of the World Online opphøyer den til egen art, Zea mexicana (Schrad.) Kuntze. Den som konsulterer kilder fra ulike perioder, vil finne begge skrivemåtene, og ingen av dem er feil innenfor systemet som bruker den.
Etymologi
Slektsnavnet Zea kommer fra det greske zeiá, en betegnelse for et kornslag dyrket i middelhavsoldtiden, trolig en art nakenhvete. Linné gjenbrukte ordet for den amerikanske planten, en gest vanlig i 1700-tallets botanikk, som grep til klassisk vokabular for å navngi arter som de greske forfatterne aldri hadde sett. Artsepitetet mays har en helt annen opprinnelse: det stammer fra mahiz, navnet som taino-folkene i Karibia ga planten, overført til kastiljansk som maíz og derfra til de øvrige europeiske språkene.
Endospermgrupper
Innenfor den dyrkede underarten støtter variasjonen i endospermet en hagebruksnomenklatur parallelt med den formelle taksonomien. Gruppene er praktiske kategorier, ikke aksepterte taksa, og forblir i bruk innen foredling og frøhandel.
- Melmais: melaktig og mykt endosperm, tradisjonell i andinske sorter
- Voksmais: stivelse sammensatt nesten utelukkende av amylopektin, grunnlag for industriell stivelse
- Tannmais: karakteristisk fordypning på kornets topp, dominerende i den kommersielle produksjonen
- Sukkermais: mutasjoner som blokkerer omdanningen av sukker til stivelse, spises fortsatt grønn
- Hard mais (flint): glassaktig og hardt endosperm, fremherskende i Brasil og Argentina
- Popkorn: lite, glassaktig korn med en indre fuktighet som forårsaker ekspansjon ved varme
- Kledd mais (belgmais): hvert korn omsluttet av egne agner, primitiv form uten kommersiell dyrking
Morfologisk beskrivelse
Mais er en oppreist, ettårig urteaktig plante som når 1,5 til 4 meter i høyden, med tropiske sorter med lang syklus som overstiger 5 meter. Den robuste veksten hviler på en sylindrisk, massiv stengel, fylt med margparenkym, noe som motsier det vanlige bildet av en hul stengel som forbindes med gress generelt. Planten er énbo og viser enkjønnede blomster atskilt i separate blomsterstander, en tilstand som skiller den fra de aller fleste gress.
Blader
Bladene sitter i vekselstilling og tostilt, det vil si fordelt i to motstående plan langs stengelen, noe som gir den unge planten en flat silhuett sett ovenfra. Hvert blad måler 50 til 120 centimeter i lengden og 5 til 12 centimeter i bredden, med en lansettformet bladplate, en langt tilspisset spiss og en hel til lett bølget kant. Nervaturen er parallell, med en hvitaktig, fremtredende midtnerve som fungerer som feltkjennetegn. Bladslira omslutter stengelen helt, med overlappende kanter, og sliren er tynn og kort, 2 til 5 millimeter. En voksen plante bærer 12 til 22 blader, et antall som varierer etter sort og syklusens varighet.
Blomster
Den romlige atskillelsen av kjønnene er artens mest fremtredende trekk. Toppen er en endestilt topp med 10 til 25 sidegrener, dannet av småaks som bærer to hannblomster med tre støvbærere hver, og en enkelt plante frigjør titalls millioner pollenkorn i løpet av blomstringsperioden. Kolben er derimot en aksilstilt blomsterstand plassert i stengelens midtre tredjedel, omsluttet av bladaktige dekkblader og bærende mellom 200 og 1000 hunnblomster ordnet i konsekvent like rader, som regel 8 til 24. Arrene danner de 10 til 30 centimeter lange trådene, folkelig kjent som maissilke, og hver av dem tilhører en individuell blomst, slik at manglende oppfanging av pollen fra en enkelt tråd resulterer i et korn som ikke dannes.
Frukter og frø
Frukten er en karyopse, en type karakteristisk for Poaceae der fruktveggen vokser sammen med frøskallet, og det hele oppfører seg som en ikke-oppsprekkende enhet. Kornene måler 5 til 15 millimeter og ordner seg i like rader på kolbestokken, den forvedede sentrale aksen som bærer kolben. Fargen strekker seg over et bemerkelsesverdig spekter, fra hvitt og gult til oransje, rødt, lilla, blått og nesten svart, avhengig av pigmenteringen i fruktveggen og aleuronlaget. Vekten av tusen korn ligger vanligvis mellom 250 og 400 gram i tann- og flinttypene, og en gjennomsnittlig kommersiell kolbe gir 400 til 600 korn.
Rot og stengel
Rotsystemet er trevlet og organiserer seg i tre påfølgende funksjonelle grupper. Kimrøttene er de første, av embryonal opprinnelse, og opprettholder kimplanten til omtrent det sjette bladstadiet, da de mister betydning. Knuterøttene spirer fra de underjordiske knutene fra det tredje bladstadiet, sprer seg sideveis opptil 1 meter og går ned omtrent 1,5 meter, og står for nesten hele det voksne rotsystemet. Til slutt oppstår støtterøttene, kalt stylterøtter, fra de blottlagte nedre knutene og forankrer planten i jorden, en funksjon som langt fra er triviell for en vekst som må holde flere meter biomasse oppreist under vind og regn. Stengelen har tydelig markerte knuter og internodier som forlenges ujevnt, kortere ved basis og gradvis lengre mot toppen.
Utbredelse og habitat
Artens opprinnelse er begrenset til Balsas-elvens bekken, i den nåværende meksikanske delstaten Guerrero, en region med sesongvis tørt klima der den ancestrale teosinten fortsatt forekommer i naturlige populasjoner. Den dyrkede underarten har imidlertid ikke noe naturlig utbredelsesområde i ordets vanlige betydning, fordi den er et kultigen: den finnes bare der den er plantet. Fra Mesoamerika spredte planten seg over hele det amerikanske kontinentet før europeernes ankomst og nådde etter 1493 Europa, Afrika og Asia i løpet av få tiår.
I dag dyrkes mais fra havnivå til omtrent 3800 meters høyde i Andesfjellene, med sorter tilpasset hvert høydebelte. Arten krever full sol, reagerer godt på temperaturer mellom 25 og 30 grader Celsius under den vegetative veksten og trenger minst 10 grader i jorden for å spire. Den tåler ikke frost på noe stadium av syklusen. De foretrukne jordsmonnene er dype, fruktbare og godt drenerte, med god vannlagringsevne og pH mellom 5,5 og 7,0, og nitrogenbehovet er blant de høyeste av alle ettårige vekster. Nedbøren som trengs gjennom syklusen, som varer 90 til 150 dager, ligger på rundt 500 til 800 millimeter, konsentrert særlig i den kritiske perioden fra to uker før til to uker etter blomstringen.
Et punkt som ofte overses i utbredelsesbeskrivelser: mais forvillede seg praktisk talt ikke. Frivillige planter dukker opp ved åkerkanten og på ubebygde tomter, men populasjonene opprettholder seg ikke gjennom generasjoner, fordi kolben lukket i agnblader hindrer kornene i å løsne og spre seg. Der det finnes mais utenfor dyrking, er det nesten alltid et tilsådd jorde i nærheten, og tilstedeværelsen er forbigående.
Dyrking av Zea mays
Formeringen skjer utelukkende ved frø, uten noen praktisk anvendelig vegetativ vei. Såing foregår i 3 til 5 centimeters dybde, med tettheter fra 55 000 til 80 000 planter per hektar i kornproduksjon og fra 60 000 til 70 000 i den bestemt til silo, og radavstanden ligger vanligvis mellom 0,45 og 0,90 meter. Spiring tar 5 til 10 dager i jord ved 25 grader Celsius.
Veksten er nesten aggressivt krevende med hensyn til næringsstoffer. Nitrogen er den mest avgjørende faktoren, og feltanbefalingene varierer fra 150 til 250 kilo per hektar, fordelt mellom grunngjødsling ved såing og to overgjødslinger, én mellom det fjerde og sjette bladstadiet og en annen mellom det åttende og tiende. Fosfor og kalium fullender programmet i betydelig mindre mengder. I områder med vannunderskudd blir kunstig vanning uunnværlig, og i Sentral-Brasil er sentral pivotvanning det dominerende systemet. Rotasjonen med soya har strukturert hele Cerradoens landbrukskalender, der andreavlingens mais inntar arealet like etter belgvekstens innhøsting.
Blant skadedyrene har høstflymott-larven (Spodoptera frugiperda) størst økonomisk betydning i Amerika, og angriper først vekstpunktet og deretter kolben. Maiscikaden (Dalbulus maidis) har nylig fått en fremtredende rolle i Brasil ved å overføre mollicutene som forårsaker gulsottsykdommer, og kolbeormen (Helicoverpa zea) skader kornene i spissen. Blant soppsykdommene fremheves den grå bladflekksykdommen (Cercospora zeae-maydis), polysora-rust (Puccinia polysora) og turcicum-bladflekk (Exserohilum turcicum), alle bladsykdommer og alle i stand til å skade kornfyllingen når de utvikler seg før modningen.
Kornhøsten skjer når fuktigheten synker til intervallet 18 til 23 prosent, et tidspunkt som faller sammen med dannelsen av det svarte laget ved kornets base, et synlig tegn på at den fysiologiske modningen er fullført, og at planten har avsluttet translokasjonen av fotosynteseprodukter til frøet.
Fenologi
Blomstringen skjer mellom 50 og 100 dager etter såing, med stor variasjon avhengig av sortens syklus og regionens varmesum. Arten viser uttalt protandri, det vil si at toppen frigjør pollen før samme plantes arr er mottakelige, og denne forskyvningen på noen dager skyver forplantningssystemet mot krysspollinering. Pollineringen er vindbåren, og pollenet er, selv om det er rikelig, tungt og tilbakelegger korte avstander, noe som gjør hvert jorde til en rimelig lukket reproduktiv populasjon.
Etter befruktningen tar kornfyllingen 45 til 65 dager og går gjennom de påfølgende stadiene melkemoden, deigmoden og melmoden frem til fysiologisk modenhet. Den naturlige spredningen finnes derimot rett og slett ikke. Agnbladene som beskytter kolben mot fugler og insekter, fanger også kornene på kolbestokken, og uten menneskelig inngripen råtner hele kolben på stedet der den falt. Denne gjensidige avhengigheten mellom plante og bonde er resultatet av årtusener med seleksjon og artens mest radikale biologiske trekk.
Beslektede arter og forvekslinger
Slekten Zea rommer, i tillegg til mais, en gruppe ville mesoamerikanske gress samlet kjent som teosinter. De viktigste er Zea diploperennis Iltis, Doebley & R.Guzmán, diploid flerårig teosinte fra Jalisco, først beskrevet i 1979, Zea luxurians (Durieu & Asch.) R.M.Bird, ettårig fra Guatemala og Honduras, Zea nicaraguensis Iltis & B.F.Benz, begrenset til Nicaraguas kystslette og oversvømmelsestolerant, og Zea perennis (Hitchc.) Reeves & Mangelsd., tetraploid flerårig teosinte likeledes fra Jalisco. Alle skilles lett fra mais på den hunnlige blomsterstanden, som hos teosintene er et skjørt aks med få herdede småaks, uten omsluttende agner og uten kjøttfull kolbestokk.
På jordet oppstår den reelle forvekslingen i ungdomsstadiet, når maisen ennå ikke har dannet topp eller kolbe, og andre store gress ligner den. Tre tilfeller fortjener oppmerksomhet.
- Sukkerrør (Saccharum officinarum): flerårig, med stengler fylt med sakkaroserikt vev, smalere blader og uten maisens brede, hvite midtnerve. Danner aldri en sideliggende kolbe.
- Johnsongress (Sorghum halepense): flerårig jordstengelgress med blader som ligner ung mais. Denne artens blader og gjenvekst inneholder cyanogene glykosider, og inntak hos storfe og hester, særlig gjenvekst etter tørke eller frost, forårsaker cyanidforgiftning. Den sikre skjelningen skjer på de tykke jordstenglene, som mangler hos mais.
- Sorghum (Sorghum bicolor): lignende størrelse, men ender i en kompakt endestilt topp og ikke en åpen topp, danner ingen aksilstilt kolbe og viser ofte et hvitaktig vokslag på blader og stengel.
Det absolutte diagnostiske kjennetegnet forblir kombinasjonen av endestilt hannlig topp med aksilstilt hunnlig kolbe med lange arr. Ingen andre gress forener begge strukturene.
Fytokjemi
Sammensetningen varierer betydelig avhengig av det analyserte organet. Det modne kornet domineres av stivelse, som utgjør 60 til 72 prosent av tørrvekten og fordeler seg mellom amylose og amylopektin i et forhold på omtrent én til tre i de konvensjonelle typene, et forhold som forskyves nesten helt mot amylopektin i voksmais. Proteinfraksjonen ligger mellom 6 og 12 prosent, med zein som det dominerende reserveproteinet, notorisk fattig på aminosyrene lysin og tryptofan. Oljen, konsentrert i kimen, utgjør 3 til 5 prosent og er rik på linolsyre.
Pigmentene følger kornets farge. Karotenoider som lutein og zeaxantin hoper seg opp i endospermet hos gul og oransje mais, mens antocyaniner av typen cyanidin-3-glukosid og pelargonidin avleires i fruktveggen og aleuronlaget hos lilla, røde og blå sorter. I fruktveggens celleveggene finnes ferulasyre bundet til arabinoksylaner i en konsentrasjon som er høy for et kornslag.
Arrene hoper opp en egen profil, med flavonoider som apigenin, luteolin og maysin, i tillegg til polysakkaridslim, høy kaliumkonsentrasjon, lavt innhold av saponiner og tanniner i intervallet 1 til 3 prosent av det tørre materialet. Kimplantene syntetiserer derimot benzoksazinoider, deriblant DIMBOA, forbindelser som i den kjemiske økologiens litteratur forbindes med plantens forsvar mot planteetende insekter, og hvis konsentrasjon synker etter hvert som vevet eldes.
To sammensetningsfakta har direkte praktisk betydning og fortjener å nevnes eksplisitt. Det første er at niacin i kornet hovedsakelig forekommer i bundet form, som niacytin, som koking i vann ikke frigjør. Det andre er at korn lagret med høy fuktighet eller under mangelfull ventilasjon koloniseres av sopp av slektene Aspergillus og Fusarium, som produserer mykotoksiner som aflatoksiner og fumonisiner. Disse toksinene motstår varmen fra vanlig bearbeiding, og forurensningen kan ikke merkes på smak eller lukt, hvorfor fuktighetskontroll under lagring er gjenstand for helselovgivning i praktisk talt alle produserende land.
Historie og etnobotanikk
De eldste bevisene for domestisert mais kommer fra arkeologiske lokaliteter i Balsas-elvens dal og er datert til omtrent 8700 år før nåtiden, ut fra stivelseskorn og fytolitter gjenfunnet på maleredskaper. Den ville forfaren er teosinten Zea mays subsp. parviglumis, en plante hvis aks bærer fem til tolv korn kledd med harde agner. Den morfologiske avstanden mellom dette gresset og den moderne kolben er enorm, men populasjonsgenetiske undersøkelser har vist at forvandlingen innebar mutasjoner i en liten håndfull regulatoriske gener, med teosinte branched1 som det mest fremtredende, som undertrykte den sideveis forgreningen og konsentrerte plantens energi i få store kolber, og teosinte glume architecture1, som reduserte den herdede agnen og blottla kornet.
Blant de mesoamerikanske folkene var mais ikke bare mat. Popol Vuh, quiché-mayaenes hellige bok nedtegnet på 1500-tallet, forteller at den endelige menneskeheten ble formet av maisdeig, etter at tidligere forsøk med leire og tre mislyktes, og fremstillinger av maisguddommen opptrer i den klassiske maya-ikonografien gjennom århundrer. Aztekerne organiserte kalenderritual og landbrukssyklus rundt den samme planten.
Sett fra et teknisk synspunkt var det mest vidtrekkende mesoamerikanske bidraget nixtamaliseringen, en prosess der kornene ble kokt og lagt i bløt i en alkalisk løsning laget av kalk eller bålaske, før de ble malt. Den alkaliske behandlingen løsnet fruktveggen, endret deigens tekstur og frigjorde den tidligere utilgjengelige niacinen. Folkeslagene som tok i bruk teknikken, opprettholdt maisbaserte kosthold i årtusener uten at det ble registrert blant dem de epidemiene som skulle ramme Europa århundrer senere.
Denne historien fikk en dyster motpol i Europa. Maisen nådde kontinentet etter Columbus’ reise i 1493 og spredte seg raskt over Middelhavsområdet, Afrika og Asia på 1500- og 1600-tallet, men den alkaliske bearbeidingen reiste ikke med sammen med frøet. Befolkninger i Nord-Italia, Sør-Frankrike, Balkan og senere det sørlige USA begynte å være avhengige av mais tilberedt bare ved maling og koking i vann, og mellom 1700- og 1900-tallet møtte de ødeleggende pellagra-epidemier, en mangelsykdom hvis ernæringsmessige årsak først ble fastslått på 1930-tallet gjennom Joseph Goldbergers og hans etterfølgeres arbeid. Episoden er i dag et klassisk eksempel på hvordan en matkultur kan overføres ufullstendig.
Carl von Linné beskrev formelt arten i 1753, med materiale dyrket i europeiske hager, nesten tre århundrer etter at planten hadde krysset Atlanteren og mer enn åtte årtusener etter dens domestisering i Guerrero.
Vern
Dyrket mais har ingen individuell vurdering på IUCNs rødliste, en normal situasjon for kultigener som bare finnes under jordbruksdrift, og hvis fortsatte eksistens ikke avhenger av naturlige populasjoner. Arten står heller ikke oppført på noe CITES-vedlegg. Verneinteressen faller derfor på to helt forskjellige fronter.
Den første er de ville slektningenes situasjon. Zea diploperennis er oppført som truet på rødlisten og overlever på få kvadratkilometer i Sierra de Manantlán i Mexico, der området nettopp på grunn av denne forekomsten ble omgjort til biosfærereservat. Zea nicaraguensis befinner seg i en enda mer prekær situasjon, med en populasjon anslått til få tusen individer konsentrert i et minimalt belte av Nicaraguas kystslette, utsatt for drenering av lavvannsområder og byutvidelse. De øvrige teosint-populasjonene lider under habitatfragmentering, beiting og fremrykking av jordbruksgrensen.
Den andre fronten er den genetiske erosjonen innenfor selve den dyrkede arten. Utskiftningen av lokale sorter med ensartede kommersielle hybrider har innsnevret det genetiske grunnlaget tilgjengelig for foredling i global skala. Svaret kom via ex situ-vern, med CIMMYTs genbank i Mexico, som forvalter verdens største samling av mais- og teosint-aksesjoner, og via vern på gårdsbruk, understøttet i Brasil av Embrapa-programmer og av nettverk av bønder som vokter opprinnelige frø i sør og nordøst.
Kuriositeter
- Antallet kornrader på en kolbe er alltid partall, et resultat av et utviklingsmønster der hvert hunnlige småaks danner to naboblomster. Kolber med et oddetall rader forekommer praktisk talt aldri.
- Hver maissilketråd tilsvarer én enkelt blomst og må fange opp minst ett pollenkorn for at et korn skal dannes. De uregelmessige hullene som opptrer på dårlig pollinerte kolber, er det nøyaktige bildet av hvilke arr som stod uten pollen.
- Mais utfører fotosyntese via C4-veien, en mekanisme som konsentrerer karbondioksid og reduserer fotorespirasjon. Det forklarer vekstens produktivitet ved høy temperatur og intens lysstyrke, forhold der C3-kornsorter som hvete taper effektivitet.
- Barbara McClintock oppdaget de bevegelige genetiske elementene, de såkalte transposonene, ved å studere den uregelmessige nedarvingen av kornfarge hos mais, et arbeid som ga henne Nobelprisen i fysiologi eller medisin i 1983, mer enn tre tiår etter de opprinnelige publikasjonene.
- Teosinten ble ansett som en egen slekt så lenge at sammenslåingen med Zea fortsatt skaper uenighet blant forfattere, og hypotesen om at mais nedstammet fra den, ble avvist av store deler av det vitenskapelige miljøet inntil de molekylære analysene på 1990-tallet bekreftet den.
Merk: dette innholdet er informativt og erstatter ikke profesjonell helserådgivning. Rådfør deg med lege eller fytoterapeut før du bruker medisinplanter, spesielt under graviditet, amming eller ved bruk av legemidler.
Referanser og vitenskapelige studier
Fagfellevurderte Vitenskapelige Studier (2)
- DOI2004 Doebley, J. F. The genetics of maize evolution. Annual Review of Genetics, 38, 37-59. 2004. ↗
- DOI2009 Piperno, D. R., Ranere, A. J., Holst, I., Iriarte, J., Dickau, R. Starch grain and phytolith evidence for early ninth millennium B.P. maize from the Central Balsas River Valley, Mexico. Proceedings of the National Academy of Sciences, 106(13), 5019-5024. 2009. ↗
Supplerende Lesning (5)
- CIMMYT. Maize Germplasm Bank. Centro Internacional de Mejoramiento de Maíz y Trigo, El Batán, Mexico. ↗
- International Plant Names Index (IPNI). Zea mays L. Royal Botanic Gardens, Kew; Harvard University Herbaria; Australian National Botanic Gardens. ↗
- IUCN. The IUCN Red List of Threatened Species. International Union for Conservation of Nature. ↗
- Linnaeus, C. Species Plantarum, vol. 2, p. 971. Stockholm. 1753. ↗
- POWO. Plants of the World Online. Zea mays L. Royal Botanic Gardens, Kew. ↗