Rheum officinale er en flerårig staude av imponerende størrelse som vokser på fuktige fjellskråninger og i dalbunner i det sentrale og sørlige Kina. Den tilhører familien Polygonaceae, samme familie som syre, slangeurt og bokhvete, og danner en basal rosett hvis runde blader blir over en halv meter brede før blomsterstengelen reiser seg to meter over bakken. Blant artene i slekten Rheum er dette en av de få hvis artsepitet direkte gjenspeiler den menneskelige interessen planten har vært gjenstand for i århundrer.
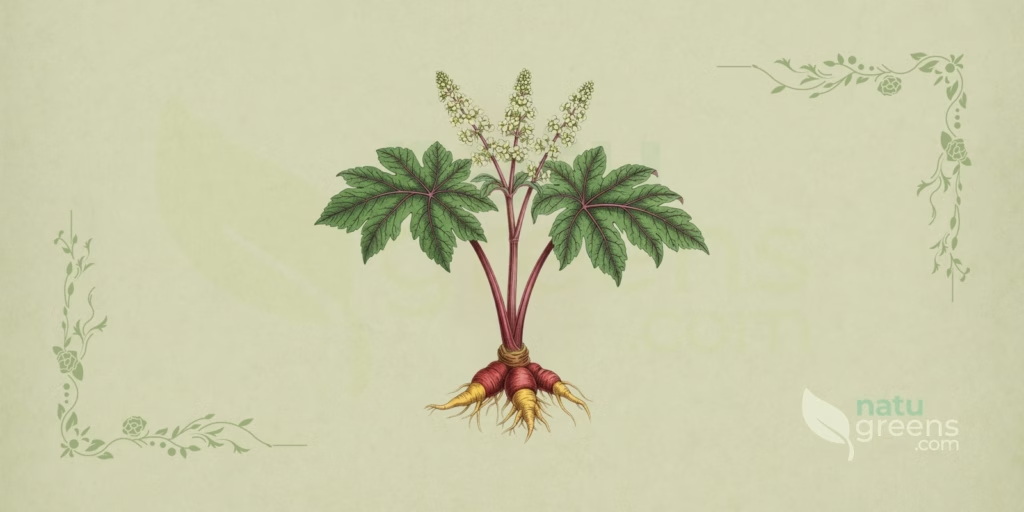
Arten er endemisk til en relativt begrenset bue av kinesisk territorium, fordelt over Guizhou, Henan, Hubei, Shaanxi, Sichuan og Yunnan, i høyder fra litt over tusen meter til den alpine sonen. Under bakken danner planten en tykk, forgrenet jordstengel hvis indre vev har en intens gul farge, en egenskap kinesiske bønder forbinder med navnet da huang (大黃), bokstavelig «stor gul». Det var denne tørkede roten, ikke den levende planten, som krysset Sentral-Asia og nådde de europeiske markedene lenge før noen vestlig botaniker hadde sett et eksemplar i felt.
Denne siden samler artens fullstendige botaniske profil: formell taksonomi bekreftet i de gjeldende nomenklaturindeksene, detaljert morfologi med feltmål, utbredelse og habitat, dyrkingsteknikker, fenologi, kjennetegn for å skille den fra nærstående arter i palmatum-komplekset, beskrivende kjemisk sammensetning, historisk registrering og bevaringsstatus.
Taksonomi for Rheum
Navnet Rheum officinale Baill. ble publisert av Henri Ernest Baillon i tidsskriftet Adansonia, bind 10, side 246, i 1872, basert på materiale fra det fjellrike indre Kina. International Plant Names Index bekrefter forfatterskapet, datoen og protologet, og navnet forblir uomtvistet akseptert i dagens nomenklaturindekser. Familien Polygonaceae omfatter omtrent femti slekter med overveiende temperert utbredelse på den nordlige halvkule, og slekten Rheum teller omtrent seksti arter i Asias fjellkjeder og høysletter.
- Rike: Plantae
- Rekke: Magnoliophyta (dekkfrøplanter)
- Klasse: Magnoliopsida (tofrøbladete)
- Orden: Caryophyllales
- Familie: Polygonaceae Juss.
- Underfamilie: Polygonoideae
- Tribus: Rheeae
- Slekt: Rheum L.
- Art: Rheum officinale Baill., 1872
Aksepterte synonymer
Arten viser en uvanlig nomenklaturstabilitet for et takson med lang kommersiell utnyttelseshistorie. Bare to navn regnes i dag som heterotypiske synonymer:
- Rheum baillonii F. Heim
- Rheum pichonii Pierre ex A. Chev.
Det er verdt å rette en tilbakevendende feil i populærlitteraturen: Rheum potaninii Losinsk. er ikke synonym med R. officinale, men et navn behandlet innenfor Rheum palmatum-komplekset. På samme måte forblir R. officinale og R. tanguticum, som enkelte forfattere tidligere nedgraderte til varieteter av R. palmatum, akseptert som selvstendige arter, selv om grensene mellom dem fortsatt diskuteres blant taksonomer.
Slektsnavnet stammer fra det greske rheon, en form knyttet til det gamle handelsnavnet for den tørkede roten, rha. Enkelte forfattere kobler begrepet til Rha, den klassiske betegnelsen for Volga-elven, en av rutene varen nådde de vestlige havnene gjennom. Artsepitetet officinale kommer fra det latinske officina, verkstedet eller apoteket der preparater ble laget, og betegnet i nittenhundretallets nomenklatur arter som sto på farmakopeenes offisielle lister på den tiden. Det er en historisk betegnelse, ikke en beskrivelse av dagens bruk.
Morfologisk beskrivelse
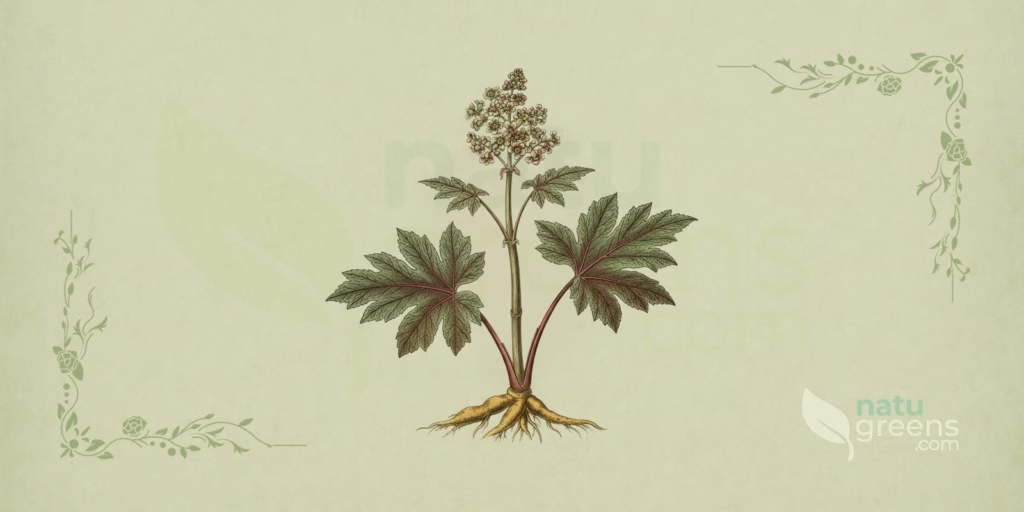
Dette er en robust flerårig staude med en bred basal tue og en oppreist blomsterstengel som når 1,5 til 2 meter i høyden, av og til mer i dyp, næringsrik jord. Stengelen er hul, fint furet på langs og dekket av hvite hår som fortettes mot toppen og ved nodene. Hele den overjordiske delen visner helt ved vekstsesongens slutt og skyter igjen fra den underjordiske strukturen neste vår, en syklus planten gjentar i ti til tjue år.
Blader
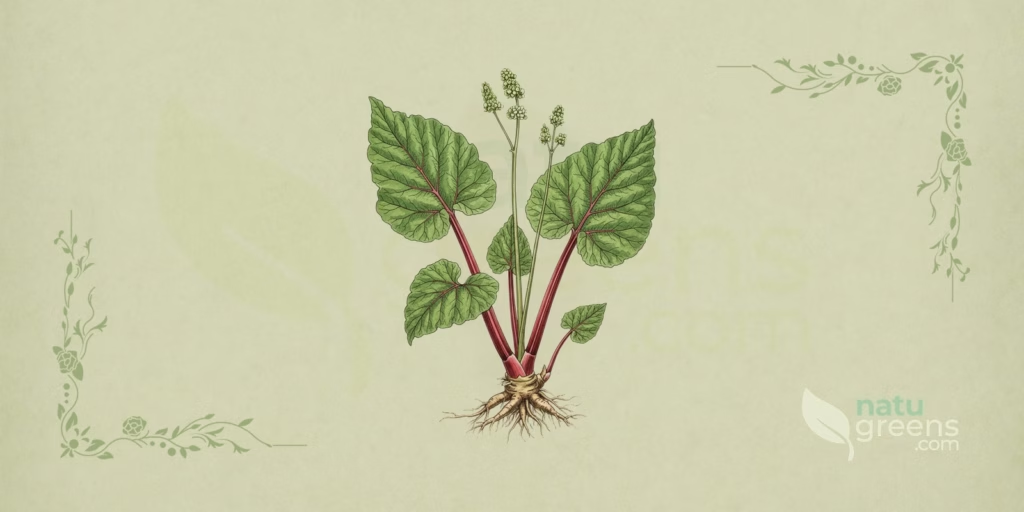
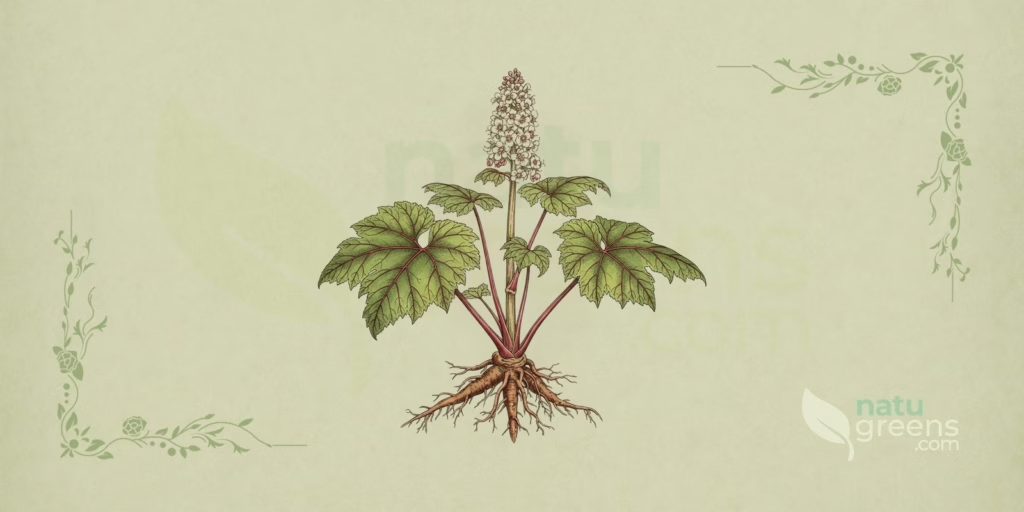
De basale bladene definerer artens utseende og er blant de største hos enhver staude i tempererte klima. Bladplaten er rundaktig, sjeldnere bredt eggformet, og måler 30 til 50 centimeter i diameter hos etablerte planter, og kan nærme seg 75 centimeter hos de kraftigste eksemplarene. Basisen er lett hjerteformet, fem til sju hovednerver går ut fra dette punktet, og delingen er håndlappet, med trekantede lapper med grunn innskjæring og lett spiss tupp. Oversiden er glatt, undersiden er håret, og teksturen er samlet sett lærlignende og lett ru å ta på. Bladstilken er sylindrisk, kjøttfull, måler 20 til 60 centimeter og skifter fra grønn til fiolett ved basis. Stengelbladene gjentar mønsteret i stadig mindre skala jo høyere opp på stengelen de sitter. Ochreaen, den hinneaktige slira som omgir noden rett over bladstilkens feste, når 15 centimeter, har en tett håret ytre overflate og utgjør det mest pålitelige familiekjennetegnet for å gjenkjenne en Polygonaceae i felt.
Blomster
Blomsterstanden er en bred, endestilt, åpent forgrenet topp båret av blomsterstengelen. Blomstene er små og tallrike, ordnet i klynger langs grenene, hver med seks blomsterdekkblader i en farge fra grønnaktig til hvitgul, elliptiske til smalt elliptiske, 2 til 2,5 millimeter lange og 1,2 til 1,5 millimeter brede. De tre ytterste blomsterdekkbladene er smalere enn de indre. Pollenbærerne teller ni støvbærere, og fruktknuten er overstilt, kronet av tre korte griffelgrener med hodeformede arr. Blomsterstilken er leddet nær basis, et trekk som letter avløsningen av den modne frukten.
Frukter og frø
Frukten er en trekantet nøttefrukt med langstrakt-elliptisk omriss, 8 til 10 millimeter lang og 7 til 9 millimeter bred, med de tre kantene forlenget til hinneaktige vinger på omtrent 2 til 2,5 millimeter i bredden. Fargen går fra grønnaktig til rødbrun og deretter til mørkebrun etter hvert som modningen skrider frem. Hver frukt inneholder ett enkelt frø. Vingene er strukturer for vindspredning og forklarer effektiviteten arten koloniserer skråninger og lysninger på fjellsidene der den forekommer med.
Jordstengel og stengel
Det underjordiske systemet er plantens mest omfangsrike struktur og består av en tykk, forgrenet jordstengel på 5 til 20 centimeter i diameter hos voksne eksemplarer, med tykke, fibrede siderøtter. Overflaten er brun og gjennomfuret på langs. Ved gjennomskjæring viser det indre vevet en intens gul til oransje farge, resultatet av oppsamling av antrakinonderivater i parenkymet, med et strålemønster av mørkere bunter som den klassiske farmakognosien beskrev som en stjerneformet tegning. Smaken er utpreget bitter og sammentrekkende, og lukten er jordaktig.
Utbredelse og habitat
Arten er endemisk til Kina, og dens naturlige utbredelsesområde dekker det sentral-nordlige, sentral-sørlige og sørøstlige Kina, med bekreftede funn i Guizhou, sørvestlige Henan, vestlige Hubei, Shaanxi, Sichuan og Yunnan, samt sannsynlige forekomster i Fujian. Kjernen i utbredelsen faller sammen med fjellkjedene som utgjør overgangen mellom Sichuan-bassenget og den østlige kanten av det tibetanske platået, en region med kupert terreng og høy sommernedbør.
Det typiske habitatet er underskogen i fjellskoger, skogkanter, skyggefulle kløfter og dalbunner med dyp, organisk rik jord. Det registrerte høydeintervallet er stort, fra rundt 1200 til 4000 meter, med de tetteste bestandene i det midtre høydebeltet. Det foretrukne klimaregimet kombinerer kjølige, fuktige somre med kalde, langvarige vintre, en tilstand som tvinger den overjordiske delen inn i full hvile. Leirholdige til leir-siltete, godt drenerte jordsmonn med lett sur til nøytral reaksjon gir den beste utviklingen.
Utenfor det naturlige utbredelsesområdet er arten introdusert i dyrking og forekommer lokalt forvillet i Storbritannia og regionen rundt det tidligere Tsjekkoslovakia, i tillegg til forekomstregistreringer i Laos og Vietnam. Ingen av disse introduserte bestandene viser dokumentert invasiv atferd, og kravet om kalde vintre begrenser sterkt artens ekspansjon mot lavere breddegrader.
Dyrking
Den kommersielle formeringen skjer hovedsakelig via frø, sådd i beskyttet bed mellom slutten av vinteren og begynnelsen av våren. Spiring skjer i løpet av to til fire uker, og plantene overføres til feltet etter seks til tolv måneders oppformering. Deling av tuen er alternativet når man vil bevare den genetiske identiteten til utvalgt materiale: den voksne jordstengelen deles i biter som bevarer en eller to levedyktige knopper, og plantes på nytt samme sesong. Vevskultur utvikles for klonet formering i stor skala, men har ennå ikke erstattet de konvensjonelle metodene i den løpende produksjonen.
Når det gjelder krav, foretrekker planten full sol i kaldt klima og setter pris på delvis skygge der somrene er varmere, siden det brede bladet svis under intens innstråling. Jorden bør være dyp, fruktbar og godt drenert, med pH mellom 5,5 og 7,0 og rikelig tilførsel av organisk materiale ved planting. Det behagelige temperaturintervallet ligger mellom 5 og 20 grader Celsius, med god frostbestandighet under hviletiden og et markert fall i ytelse over 28 grader. Den passende nedbøren ligger rundt 700 til 1500 millimeter årlig, godt fordelt, og dryppvanning dekker manglene i tørre år. Det vanlige plantavstanden er 1,2 til 1,5 meter i begge retninger, og et tykt mulchlag er standardpraksis for å stabilisere jordtemperaturen og bevare fuktighet over det overflatiske rotsystemet. Steder skjermet mot sterk vind forhindrer at de største bladene rives i stykker.
Blant de vanligste plantehelseproblemene er snegler og sneglehus, som angriper unge blader i fuktige perioder, og bladlus, som etablerer seg under vannstress og kan overføre bladvirus. På sykdomssiden dekker meldugg bladverket med et hvitaktig lag i tørre perioder, forårsaker bladflekksyke fra sopp av slekten Ramularia rødbrune lesjoner, og rotråte forbundet med Phytophthora er det alvorligste tilfellet, nesten alltid knyttet til vannmettet eller dårlig drenert jord.
Høsting av det underjordiske systemet skjer om høsten, når planten har oppnådd fire til åtte års feltvekst og den overjordiske delen går inn i hvile. Fremgangsmåten er manuell: hele tuen graves opp, jordstengel og tykke røtter skilles fra bladstilker og blader, materialet vaskes, skjæres i skiver eller terninger og tørkes i solen eller i ovn ved moderat temperatur til det stabiliserer seg under 12 prosent fuktighet. Blomsterstengler fjernes ofte så snart de dukker opp i kulturer rettet mot jordstengelproduksjon, en praksis som omdirigerer assimilater til den underjordiske delen.
Fenologi
Gjenoppspiring av den basale rosetten følger de stigende vårtemperaturene, og bladutfoldingen fullføres på noen uker, noe som gir planten en av de raskeste ratene for bladareal-tilvekst blant fjell-stauder. Dannelsen av blomsterstengelen skjer fra tredje eller fjerde leveår og gjentas ikke nødvendigvis hvert år, avhengig av jordstengelens akkumulerte kraft.
Blomstringen konsentreres i juni og juli på den nordlige halvkule, og fruktsettingen følger fra juli til september, med trinnvis modning langs toppen. Blomstene er små, lyse og samlet, en ordning som tiltrekker små tovinger og årevinger, men blomsterstandens åpne arkitektur og pollenets letthet favoriserer også vindbestøvning, og litteraturen beskriver slekten som funksjonelt ambofil. Spredningen er anemokor: nøttefruktens tre hinneaktige vinger forlenger fallet og lar vinden på skråningene bære fruktene en viss avstand fra morplanten. Sekundær spredning ved overflateavrenning på skrånende terreng fullender bildet.
Beslektede arter og forveksling
De relevante forvekslingene involverer de øvrige storvokste artene i seksjonen Palmata samt hagerabarbra, og bladkarakteren løser de fleste tilfeller i felt.
- Rheum australe D. Don: art fra den vestlige Himalaya, med eggformet til rundaktig blad med svært svak eller fraværende lappdeling og generelt mindre størrelse. Den geografiske adskillelsen fra R. officinale er nesten fullstendig.
- Rheum palmatum L.: den hyppigste forvekslingen. Bladplaten til R. palmatum er dypt hånddelt, med lapper som når et fjærsnittmønster og sterkt innskåret rand, mens R. officinale har grunne, trekantede lapper og nesten hel rand. R. palmatum okkuperer i gjennomsnitt høyere høyder og strekker seg mot nord og nordvest i landet, et område der R. officinale ikke forekommer.
- Rheum rhabarbarum L.: hagerabarbraen dyrket i europeiske kjøkkenhager. Har rundomriss blad uten tydelig lappdeling, en levende rød, kjøttfull og saftig bladstilk, en mindre og mindre iøynefallende topp, samt en jordstengel hvis indre vev ikke viser den intense gulfargen som er karakteristisk for artene i seksjonen Palmata.
- Rheum tanguticum (Maxim. ex Regel) Maxim. ex Balf.: plante strengt knyttet til Tibets høyland, med enda dypere og smalere bladlapper enn hos R. palmatum, nesten helt delt blad. Forekommer over det typiske høydeintervallet for R. officinale.
Det finnes enda et oppmerksomhetspunkt utenfor slekten. Store, rundaktige blader med hjerteformet basis, båret av lange bladstilker, finnes også hos planter uten noen slektskap med Rheum, blant annet arter av Petasites og borre, Arctium lappa. Tilstedeværelsen av den hinneaktige ochreaen rundt noden, eksklusiv for Polygonaceae, avgjør tvilen umiddelbart.
Fytokjemi
Den kjemiske profilen til Rheum officinale domineres av antrakinonderivater konsentrert i jordstengel og tykke røtter, der de er ansvarlige for parenkymets gulorange farge. De hyppigst identifiserte forbindelsene i denne gruppen er aloe-emodin, krysofanol, emodin, physcion og rein, til stede både i fri form og bundet til sukkerarter som antrakinonglykosider. Ved siden av dem forekommer dimere antranoider av sennosid-typen, betegnet med bokstavene A til F, hvis andel varierer med eksemplarets alder, opprinnelseshøyde og den anvendte tørkeprosessen.
Den andre klassen i mengde er tanniner, som i den tørkede jordstengelen når betydelige nivåer og omfatter både hydrolyserbare former, som gallotanniner og gallussyrederivater, og kondenserte former av proantocyanidin-typen, sammen med fri katekin og epikatekin. Stilbenoider, deriblant resveratrol og dets glykosider, forekommer i beskjedne mengder. Bildet fullendes av flavonoider som rutin, samt stivelse, pektiner og det vanlige mineralinnholdet i et reserveorgan, med vekt på kalium, kalsium og fosfor.
Fordelingen av disse forbindelsene i planten er ikke ensartet. Antrakinonene konsentreres i det underjordiske vevet, tanninene forekommer mer spredt, og oksalatene dominerer i bladplaten. Dette siste punktet er et sikkerhetsspørsmål som ikke tillater mellomvei: bladene til Rheum officinale inneholder, som hos alle arter i slekten, oksalsyre og oksalatsalter i høy konsentrasjon, og inntak forårsaker forgiftning, med risiko for alvorlig nyreskade. Den best dokumenterte episoden fant sted under den første verdenskrig, da rabarbrablader ble spredt i Storbritannia som erstatningsgrønnsak midt i matmangel, en anbefaling som resulterte i forgiftningstilfeller og registrerte dødsfall. Bladene er ikke spiselige i noen tilberedning. Toksisiteten fra oksalater gjelder også hunder, katter og hester, derfor fører veterinære referansekilder slekten opp blant de giftige plantene for kjæledyr.
Historie og etnobotanikk
Den eldste skriftlige registreringen knyttet til slektens tørkede rot finnes i Shennong Bencao Jing, en kinesisk farmakobotanisk samling hvis eldste lag går tilbake til de første århundrene av vår tidsregning, der materialet opptrer under navnet da huang. I de påfølgende århundrene skilte kinesiske forfattere mellom opprinnelser og handelskvaliteter av varen, og materialet som sirkulerte under dette navnet omfattet røtter av R. officinale, R. palmatum og R. tanguticum, høstet i forskjellige regioner og handlet uten streng artsadskillelse.
Den tørkede roten var en av de mest verdifulle langdistansevarene i det førindustrielle Eurasia. Handelsmenn fraktet produktet langs ruter som forbandt det kinesiske innlandet med Sentral-Asia og derfra til Middelhavsområdet, og europeiske krønikeskrivere fra middelalderen og renessansen registrerte priser som på visse tidspunkter plasserte varen over den tilsvarende vekten i edelmetaller. Mellom det syttende og attende århundret organiserte den russiske staten handelen under monopol: fra 1736 fungerte det i Kjakhta, ved den sibirske grensen til Qing-riket, en inspeksjonspost som all last som kom inn på russisk territorium måtte passere gjennom, og forkastede partier ble destruert på stedet. Denne kontrollen underbygde i tiår ryktet til den såkalte russiske rabarbraen på de vesteuropeiske markedene, inntil åpningen av de kinesiske havnene og tapet av monopolet, rundt 1860, fullstendig tegnet om handelsrutene.
På europeisk side ankom den levende planten mye senere enn varen. Botaniske hager på 1700-tallet dyrket eksemplarer oppnådd med besvær fra frø brakt av diplomater og reisende, og den botaniske identifikasjonen av artene som leverte roten forble uklar i generasjoner, en situasjon som først begynte å løses da Baillon formelt beskrev R. officinale i 1872, basert på kinesisk materiale. Det valgte epitetet registrerer statusen arten hadde på datidens offisielle apoteklister. I fjellene i det vestlige Hubei og det sørlige Shaanxi opprettholdt landlige samfunn i generasjoner forvaltningen av de ville bestandene ved å la unge eksemplarer stå igjen under høstingen, en praksis dokumentert av observatører fra det nittende og tjuende århundret som en måte å sikre gjenoppfylling av de høstede beholdningene.
Bevaring
Arten har ingen publisert vurdering på Den internasjonale naturvernunionens rødliste og oppføres derfor som ikke vurdert. Fraværet av en formell vurdering bør ikke leses som fravær av press, og den kinesiske litteraturen om emnet er konsekvent i å peke på det motsatte.
Den viktigste trusselen er den ekstraktive høstingen av ville bestander. Fordi det kommersielt interessante organet er underjordisk, innebærer høstingen fjerning av hele eksemplaret uten mulighet for gjenoppspiring, og intervallet på fire til åtte år som kreves for at en plante skal nå høstbar størrelse, gjør naturlig gjenoppfylling langsom sett i forhold til etterspørselens intensitet. Studier av genetisk mangfold utført med molekylære markører i gjenværende bestander av R. officinale registrerte fragmentering og anbefalte in situ-bevaring av bestandene med størst variabilitet, samt ex situ-innsamling fordelt over hele forekomstområdet. Omdanningen av skogkledde skråninger til jordbruksareal legger seg til bildet som faktor for habitattap.
Ingen art i slekten Rheum står for øyeblikket på CITES-listene. På siden av gjeldende tiltak har Kina de siste tiårene utvidet dyrkingen under protokoller for god landbrukspraksis, hvorved størstedelen av den industrielle forsyningen er flyttet fra ville bestander til etablerte åkre, og Det kinesiske vitenskapsakademiet opprettholder kimplasmasamlinger av slekten rettet mot bevaring av det genetiske grunnlaget.
Kuriositeter
- Det kinesiske navnet da huang, «stor gul», beskriver bokstavelig det man ser når jordstengelen skjæres over, og fargen kommer fra antrakinonderivatene som samles opp i reserveparenkymet.
- Ordet «rabarbra» bærer en gammel geografi med seg: det stammer fra middelalderlatin reubarbarum, en sammensetning av gresk rha, navnet som betegnet både planten og Volga-elven, med barbaron, fremmed. Varen nådde Europa via nord, og språket registrerte ruten før noen botaniker registrerte arten.
- I nesten halvannet århundre avgjorde en grensepost i Sibir prisen på produktet i Europa: mellom 1736 og midten av det nittende århundret passerte all last som kom inn i Russland inspeksjonen i Kjakhta, og forkastede partier ble brent på stedet.
- Samme plantefamilie huser to ytterpunkter som eksisterer side om side i samme hage: bladstilken til hagerabarbraen er en vanlig ingrediens i paier og kompotter i Europa, mens bladet til enhver art i slekten inneholder oksalater i giftig konsentrasjon.
- De basale bladene til Rheum officinale når 75 centimeter i diameter og er blant de største bladplatene produsert av en staude i tempererte klima på den nordlige halvkule.
Les også vår fullstendige botaniske profil av Pinus sylvestris for å lære mer om andre hardføre arter fra kalde fjellstrøk.
Merk: dette innholdet er informativt og erstatter ikke profesjonell helserådgivning. Rådfør deg med lege eller fytoterapeut før du bruker medisinplanter, spesielt under graviditet, amming eller ved bruk av legemidler.
Referanser og vitenskapelige studier
Se Alle 10 Siterte Kilder
Fagfellevurderte Vitenskapelige Studier (2)
- DOI2010 Hu, Y. m.fl. Genetic diversity of the endemic and medicinally important plant Rheum officinale as revealed by inter-simple sequence repeat (ISSR) markers. International Journal of Molecular Sciences, 11(12), 5060-5074. 2010. ↗
- DOI2006 Komatsu, K. m.fl. Comparative study of chemical constituents of rhubarb from different origins. Chemical and Pharmaceutical Bulletin, 54(11), 1491-1499. 2006. ↗
Supplerende Lesning (8)
- American Society for the Prevention of Cruelty to Animals. Rhubarb (Rheum spp.). Toxic and Non-Toxic Plants Database. ↗
- Baillon, H. E. Sur le Rheum officinale. Adansonia, bind 10, s. 246. Paris. 1872.
- 2003 Flora of China Editorial Committee. Rheum officinale Baillon. Flora of China, bind 5. Science Press og Missouri Botanical Garden Press. 2003. ↗
- 1992 Foust, C. M. Rhubarb: The Wondrous Drug. Princeton University Press. 1992.
- International Plant Names Index. Rheum officinale Baill., Adansonia 10: 246. 1872. Royal Botanic Gardens Kew, Harvard University Herbaria og Australian National Botanic Gardens. ↗
- Plants of the World Online. Rheum officinale Baill. Royal Botanic Gardens, Kew. ↗
- 2016 Wanner, M. The Russian-Chinese trade in Kyakhta, its organisation and commodity structure. Prague Papers on the History of International Relations, s. 35-49. Karlsuniversitetet i Praha. 2016.
- World Flora Online. Rheum officinale Baill. WFO Plant List. ↗