Gatunek Crataegus laevigata to głóg starych lasów zachodniej i środkowej Europy, niewielkie drzewo zajmujące zacienione wnętrze dojrzałych lasów, podczas gdy jego bardziej znany krewniak dominuje w żywopłotach i na otwartych skrajach lasu. Należy do Rosaceae, rodziny obejmującej jabłoń, grusze, różę i truskawkę, zajmując w jej obrębie plemię Maleae, grupę owoców jabłkowatych. W Wielkiej Brytanii, gdzie poddano go jednemu z najbardziej szczegółowych badań ekologicznych, jakie kiedykolwiek poświęcono europejskiemu gatunkowi drzewiastemu, funkcjonuje jako roślina wskaźnikowa lasu pierwotnego, co pozwala odczytać historię lasu na podstawie jego składu.
Niewiele europejskich roślin niesie ze sobą tak zagmatwaną historię nomenklaturową. Przez ponad dwa stulecia ten gatunek i Crataegus monogyna traktowano jako jedną całość, pod nazwą Crataegus oxyacantha, dwuczłonową nazwą, która ostatecznie została formalnie odrzucona z powodu niejednoznaczności, właśnie dlatego że nie można było ustalić, do której z dwóch roślin odnosił się Linneusz. Ślad tego zamieszania przetrwał w dawnej literaturze, w katalogach szkółkarskich i na etykietach handlowych, i zobowiązuje każdego, kto czyta źródła sprzed XX wieku, do zbadania opisanego materiału, zanim zaakceptuje drukowaną nazwę.
Ta strona zbiera profil botaniczny gatunku: formalną klasyfikację, cechy rozpoznawcze w terenie, rozmieszczenie i środowisko, wymagania uprawowe, kalendarz reprodukcyjny, bliskich krewnych, z którymi bywa mylony, opisową skład chemiczny, zapis historyczny i etnograficzny oraz status ochrony. Inny profil botaniczny na tej stronie to Cordia sinensis (szara cordia).
Taksonomia
Pozycja gatunku we współczesnej klasyfikacji botanicznej jest następująca:
- Królestwo: Plantae
- Gromada: Tracheophyta (Magnoliophyta, okrytonasienne)
- Klasa: Magnoliopsida (eudykotyle)
- Rząd: Rosales
- Rodzina: Rosaceae
- Podrodzina: Amygdaloideae
- Plemię: Maleae
- Rodzaj: Crataegus L., 1753
- Gatunek: Crataegus laevigata (Poir.) DC., 1825
Bazonim to Mespilus laevigata Poir., opublikowany w 1798 roku w Encyclopédie Méthodique, a przeniesienie do rodzaju Crataegus dokonał Augustin Pyramus de Candolle w drugim tomie Prodromus Systematis Naturalis Regni Vegetabilis, z 1825 roku. Rejestr IPNI potwierdza autorstwo i stronę pierwotnej publikacji.
Rodzaj ten jest jednym z najtrudniejszych w rodzinie. W zależności od przyjętego ujęcia liczba akceptowanych gatunków waha się od około 140 do ponad tysiąca, co nie odzwierciedla niewiedzy specjalistów, lecz biologię grupy: rozległa hybrydyzacja, apomiksja i poliploidalność produkują formy pośrednie, które opierają się wyraźnym granicom.
Akceptowane synonimy
- Crataegus coriacea Gand.
- Crataegus helvetica Walo Koch
- Crataegus oxyacantha f. laevigata (Poir.) Beck
- Crataegus oxyacanthoides Thuill.
- Crataegus palmstruchii Lindm.
- Crataegus subinermis Gand.
- Mespilus digyna Gray
- Mespilus intermedia Poir.
- Mespilus laevigata Poir.
- Mespilus oxyacanthoides (Thuill.) DC.
- Oxyacantha obtusata (DC.) Roem.
- Oxyacantha vulgaris (DC.) Roem.
Odrzucenie nazwy Crataegus oxyacantha
Linneusz połączył pod nazwą Crataegus oxyacantha to, co dziś uznaje się za dwa odrębne gatunki, a autorzy regionalni niemal w całej Europie nadal używali tego dwuczłonu jako terminu zbiorczego. Pierwszą brytyjską florą, która oddzieliła C. laevigata od C. monogyna, była flora Babingtona z 1843 roku, traktująca je jako odmiany, choć już sugerująca, że mogą stanowić odrębne gatunki. Niejednoznaczność rozwiązano formalnie dopiero, gdy Byatt w 1974 roku wykazał, że nazwa linneuszowska nie mogła zostać z pewnością zastosowana do żadnej z dwóch roślin, co doprowadziło do jej odrzucenia.
Istnieje jeszcze pomniejsza dyskusja dotycząca pisowni epitetu. Gutermann utrzymywał w 2011 roku, że poprawną formą byłoby levigata, opierając się na odczycie publikacji De Candolle’a, ale dokładna analiza oryginału przeprowadzona przez Christensena i Talenta w 2012 roku potwierdziła laevigata jako pisownię ważną.
Podgatunki
Ujęcie Sella i Murrella uznaje dwa byty infragatunkowe, traktowane przez innych autorów jako odmiany. Subsp. laevigata dominuje na zachodzie zasięgu i na nizinach, będąc formą dominującą w Wielkiej Brytanii, o liściach 15 do 35 milimetrów, niemal nagich i bez kępek włosków w kątach nerwów na spodniej stronie. Subsp. palmstruchii jest częstsza w górach i na wschodzie, o liściach 30 do 50 milimetrów, gęściej owłosionych nerwach na spodniej stronie, obecnych kępkach włosków w kątach, owłosionej hipancjum i większych elipsoidalnych owocach, 10 do 14 milimetrów na 13 do 15 milimetrów.
Etymologia
Nazwa rodzajowa Crataegus pochodzi od greckiego krataigos, wywodzącego się od kratys, siła lub twardość. Druga część złożenia dopuszcza więcej niż jedno odczytanie: niektórzy autorzy wiążą ją z akis, ostry czubek, w odniesieniu do kolców, podczas gdy inni łączą ją z aix, koza, sugerując żywopłot zdolny utrzymać stado. Wszystkie trzy interpretacje zbiegają się w tych samych cechach rośliny, twardości drewna i uzbrojeniu gałęzi. Epitet laevigata pochodzi od łacińskiego laevigare, wygładzać lub polerować, i opisuje gładką i lśniącą powierzchnię listowia, cecha, która dała gatunkowi także angielską nazwę głogu gładkiego.
Opis morfologiczny
Niewielkie drzewo liściaste, dość często osiągające 8 metrów wysokości i wyjątkowo 12 metrów, choć równie często występuje jako wielopniowy krzew o nieuporządkowanym pokroju. Korona jest gęsta, szeroka i zaokrąglona, a pień nie sięga w nią daleko, rozgałęziając się wcześnie. Gałęzie są rozłożyste lub wznoszące się, na ogół mniej sztywne niż u C. monogyna, i mają tendencję do zwisania na końcach. Pąki są jajowate do niemal kulistych, o zaokrąglonym wierzchołku, mierząc od 1,1 do 2,1 milimetra długości przy 1,2 do 1,9 milimetra szerokości, o ciemnobrunatnych łuskach.
Liście
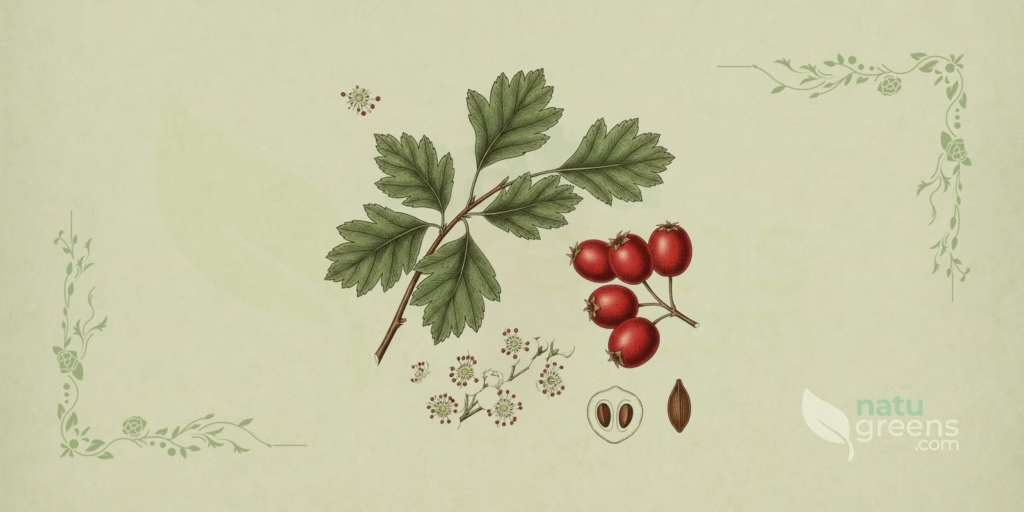
Liście są skrętoległe, często skórzaste, ciemnozielone i lśniące na stronie górnej, a jasnozielone na dolnej. Są nagie z wyjątkiem rozproszonych włosków wzdłuż nerwów głównych po obu stronach, gdy są młode, i charakterystycznie nie mają kępek włosków w kątach nerwów, powszechnych u C. monogyna w Wielkiej Brytanii. Zarys liścia jest odwrotnie jajowaty do niemal okrągłego, z jedną do trzech par tępych i płytkich klap, które rzadko sięgają połowy odległości do nerwu głównego. Klapy są zaokrąglone w zarysie i szersze niż długie, z brzegiem karbowano-piłkowanym poza zatokami, a klapa podstawowa nosi 6 do 15 ząbków.
Wielkość zmienia się w zależności od pozycji na pędzie, a ta zmienność ma praktyczną wartość dla zbierających materiał zielnikowy. Liście długich pędów są największe i najgłębiej klapowane, mierząc od 1,9 do 7,2 centymetra przy 1,8 do 5,1 centymetra. Te z krótkich pędów mieszczą się między 2,0 a 6,0 centymetra przy 1,5 do 3,2 centymetra, a te z pędów kwiatostanowych są jeszcze mniejsze, z jedną lub dwiema parami klap albo bez żadnej. Nerwy główne są proste lub zakrzywiają się do przodu w kierunku wierzchołka liścia, w przeciwieństwie do C. monogyna, gdzie zakrzywiają się do tyłu. Podstawa jest klinowata lub zaokrąglona, wierzchołek zaostrzony, ogonek liściowy mierzy 6 do 20 milimetrów, a przylistki są wyraźne i liściaste na długich pędach.
Kwiaty
Kwiaty powstają przede wszystkim na krótkich pędach, zebrane w luźne baldachogrona po 3 do 11 sztuk, o szerokości 2,5 do 5,0 centymetra. Szypułki mierzą 6 do 30 milimetrów i są nagie lub rzadko kutnerowate, cecha pomagająca odróżnić gatunek od C. monogyna, którego szypułki są owłosione. Każdy kwiat jest obupłciowy i mierzy 15 do 18 milimetrów średnicy. Działki kielicha, w liczbie pięciu, są szeroko trójkątne, tak szerokie jak długie, o brzegu całym i wierzchołku ostrym. Pięć płatków korony jest białych lub bladoróżowych, z prążkowanymi brodawkami, mierząc 5 do 10 milimetrów przy 5 do 9 milimetrów. Hipancjum ma 3 do 4 milimetrów i jest nagie.
Pręcików jest 17 do 22, o bladych nitkach i różowych, rzadko fioletowawych pylnikach. Słupków jest zazwyczaj dwa, choć może wahać się od jednego do pięciu w pojedynczych kwiatach, a znamiona są żółte. Liczba słupków stanowi najbardziej wiarygodną cechę diagnostyczną grupy, ponieważ przekłada się bezpośrednio na liczbę pestek w owocu i pozostaje czytelna nawet w materiale suszonym.
Owoce i nasiona
Owocem jest kulisty do elipsoidalnego owoc jabłkowaty, ciemnoczerwony w dojrzałości, o średnicy 8 do 10 milimetrów u większości okazów i notowanej rozpiętości 6 do 14 milimetrów, przy długości 6 do 12 milimetrów. Średnia objętość, około 1,60 centymetra sześciennego, jest ponad dwukrotnie większa niż mierzona u C. monogyna, około 0,73 centymetra sześciennego. Powierzchnia jest zwykle naga i pozbawiona guzków u podstawy, a wierzchołek nosi koronę trwałych, odgiętych lub rozpostartych działek kielicha. Miąższ jest żółtawy, o zawartości wilgoci między 68 a 77 procent.
Pestki, czyli pyreny, są zwykle dwie i odpowiadają liczbie słupków kwiatu, z którego powstały. Mierzą około 5 do 6 milimetrów, z wgłębieniem grzbietowym i brzuszno-bocznymi, i różnią się subtelnie od pestek C. monogyna bardziej tępym końcem, wobec ostrego wierzchołka gatunku siostrzanego. Każdy owoc zawiera średnio 2,1 do 2,8 nasion, o masie jednostkowej 60 do 68 miligramów, a więc mniejszych niż u C. monogyna, które mieszczą się między 97 a 130 miligramów. Badania ekologii rozsiewania klasyfikują owoce jako nietoksyczne, bez ryzyka dla zwierząt, które je spożywają, w tym ludzi.
Kora i gałęzie
Kora jest szarobrunatna do brunatno-pomarańczowej i z wiekiem staje się popękana i pofałdowana. Gałązki są matowo szarobrunatne, gęsto rozmieszczone, i błyszczące oraz nagie, gdy młode. Kolce są mniej liczne i krótsze niż u C. monogyna, mierząc 6 do 15 milimetrów, różnica zgodna z leśnym pokrojem gatunku, mniej narażonego na spasanie niż populacje żywopłotowe.
Rozmieszczenie i siedlisko
Gatunek jest rodzimy dla zachodniej i środkowej Europy. Naturalny zasięg rozciąga się od Wysp Brytyjskich na wschód po Czechy i Węgry, z niemal pewną rodzimą obecnością w Rumunii i na Ukrainie. Na północy sięga południowej Szwecji, Łotwy i Estonii, a na południu dociera do hiszpańskich Pirenejów i Włoch, najprawdopodobniej z Sycylią włącznie. Bazy taksonomiczne notują ponadto występowanie w Austrii, Belgii, na Białorusi, Korsyce, w Danii, Słowacji, Szwajcarii, Niemczech, Francji, Holandii, Norwegii, Polsce i europejskiej Rosji. Jest najbardziej rozpowszechniony w centralno-północnej części tego obszaru i staje się rzadki na jego obrzeżach, jak w Belgii, będąc nieobecnym w Grecji.
Na Wyspach Brytyjskich rozmieszczenie jest znacznie bardziej ograniczone niż u C. monogyna. Gatunek koncentruje się na południu i wschodzie Anglii, docierając naturalnie do Midlands, co dało mu angielską nazwę ludową. Jest w dużej mierze nieobecny jako roślina spontaniczna w Szkocji i Walii, a szkockie notowania odpowiadają niemal zawsze okazom sadzonym. Czy jest rodzimy w Irlandii, pozostaje przedmiotem dyskusji: istnieją dojrzałe okazy w kilku hrabstwach i zapis zielnikowy mieszańca z 1895 roku, ale najbardziej akceptowana hipoteza przypisuje jego obecność angielskiemu materiałowi szkółkarskiemu wprowadzonemu podczas parlamentarnych grodzeń.
Poza naturalnym zasięgiem gatunek został przeniesiony do różnych regionów o klimacie umiarkowanym. Zadomowił się na Wyspach Zatokowych stanu Waszyngton, w Kanadzie i we wschodniej części Stanów Zjednoczonych, a w XIX wieku wprowadzono go na Tasmanię i w inne części Australii do formowania żywopłotów, gdzie obecnie w kilku stanach uznawany jest za uciążliwy chwast. Istnieją również notowania z Japonii, Nowej Zelandii, Tanzanii i Afryki Zachodniej, a także z umiarkowanych Himalajów w Indiach, na wysokości 1800 do 3000 metrów.
Typowe siedlisko definiuje gatunek w równym stopniu co jego morfologia. To roślina lasów pierwotnych, tolerująca cień, spotykana we wnętrzu dojrzałych lasów, na skrajach lasu, w starych żywopłotach i na miedzach na glebach gliniastych. Preferuje podłoża o ciężkiej teksturze, od gliny do iłu, i konsekwentnie unika kredy, wapienia, gleb oolitowych i iłów krzemionkowych, co tłumaczy jej koncentrację w angielskich Midlands i w Weald na południowym wschodzie. Wskaźnik Ellenberga dla pH w Wielkiej Brytanii wynosi 7, zgodny z warunkami od słabo kwaśnych do słabo zasadowych. Wysokościowo sięga od poziomu morza na zachodzie do 810 metrów w polskich Sudetach, 956 metrów w Słowenii, 1281 metrów w Tatrach i 1560 metrów na Piano Ruggio, we Włoszech.
Uprawa
Gatunek jest subatlantycki i preferuje chłodny klimat umiarkowany. Średnie notowane w Wielkiej Brytanii wynoszą 3,5 stopnia Celsjusza dla stycznia i 16,2 stopnia dla lipca, przy rocznych opadach około 674 milimetrów, a więc w warunkach nieco cieplejszych i suchszych niż zajmowane przez C. monogyna. Dobrze znosi zimy środkowej i północnej Europy i nie ma wymagań termicznych ograniczających go w strefach umiarkowanych.
Co do gleby, rośnie w szerokim zakresie podłoży, w tym krzemionkowych i umiarkowanie kwaśnych, i toleruje znaczną zmienność wilgotności. W tym zakresie jednak najlepiej radzi sobie na glebach gliniastych i ilastych, zwłaszcza ciężkich. Tolerancja cienia jest cechą agronomiczną, która go wyróżnia: kwitnie łatwo nawet pod zwartym baldachimem i dominuje w podszycie starych zagajników odroślowych, sytuacji, w której C. monogyna się nie zadomawia. Tam gdzie światło zwiększa się wskutek zaburzenia lub wycinki, relacja się odwraca i gatunek traci przestrzeń.
Rozmnażanie z nasion
Nasiona wykazują podwójny spoczynek, połączenie twardej okrywy nasiennej z fizjologiczną potrzebą zimna. Bez wstępnej obróbki kiełkowanie może nie nastąpić przed upływem 18 miesięcy, a nawet przed trzecim sezonem wegetacyjnym po wyprodukowaniu. Protokół ustalony w polskich badaniach polega na ciepłej stratyfikacji w wilgotnym podłożu, z temperaturą naprzemiennie między 20 a 30 stopni Celsjusza przez 16 do 20 tygodni, po czym następuje faza zimna w 3 stopniach przez 16 do 18 tygodni, okres, po którym korzonki już się pojawiają. Ten zabieg podnosi kiełkowanie z 2-4 procent do 87-94 procent, a siewki wschodzą cztery do sześciu tygodni po siewie.
Skaryfikacja chemiczna w stężonym kwasie siarkowym przez dwie do trzech godzin, po której następuje 24-godzinne moczenie w wodzie, pozwala skrócić fazę ciepłą z 16-20 tygodni do zaledwie czterech, z równoważnymi wskaźnikami kiełkowania. Nasiona są ortodoksyjne i mogą być suszone do 9-13 procent wilgotności bez utraty żywotności, znosząc przechowywanie w temperaturze minus 3 stopni Celsjusza przez 12 miesięcy z umiarkowanym spadkiem kiełkowania. Kiełkowanie jest epigeiczne, a korzonek rozwija się w korzeń palowy z cienkimi, krótkimi korzeniami bocznymi.
Rozmnażanie wegetatywne i zdrowotność
Odmiany ozdobne są rozmnażane przez szczepienie, praktykę, która zachowuje również cechy kwiatowe nieprzekazywane przez nasiona. Gatunek dobrze znosi cięcie i tworzy duże kępy w reżimie odroślowym, co sprzyja jego obecności w lasach zagospodarowanych. Był ponadto oceniany jako podkładka karłowacząca dla grusz, z odnotowaną kompatybilnością dla klonów Pyrus communis i innych Maleae.
Czułym punktem uprawy jest zdrowotność. Europejskie głogi, w tym ten gatunek, są wysoce podatne na zarazę ogniową wywoływaną przez Erwinia amylovora, a odmiany 'Paul’s Scarlet’ i 'Rosea Flore Pleno’ należą do najbardziej dotkniętych. Nasadzenia mogą funkcjonować jako rezerwuar inokulum dla sąsiednich jabłoni i grusz, choć ryzyko związane z C. laevigata jest mniejsze niż z C. monogyna ze względu na jej bardziej leśne występowanie i większy dystans od sadów. Dochodzą do tego mączniak prawdziwy Podosphaera clandestina, rdze z rodzaju Gymnosporangium, wymagające naprzemiennego żywiciela z rodzaju Juniperus, oraz plamistość liści wywoływana przez Entomosporium thuemenii i Diplocarpon mespili.
Fenologia
Kwitnienie przypada na kwiecień do czerwca, przesuwając się ku końcowi tego przedziału na skrajnej północy zasięgu, w Szwecji. W południowo-wschodniej Anglii zbieżność z kalendarzem liturgicznym dała roślinie lokalną nazwę różyczki Zielonoświątkowej. Holenderskie dane długoterminowe dokumentują wyraźne przyspieszenie: średni początek kwitnienia przesunął się z 17 maja, w serii 1940-1968, na 1 maja w serii 2001-2010. Kwiaty otwierają się, zanim liście są w pełni rozwinięte, i wcześniej u krzewów niż u drzew.
Gatunek wchodzi w liście wcześniej niż C. monogyna i kwitnie około 8 do 14 dni przed nim. To wyprzedzenie jest niewystarczające, by stanowić barierę reprodukcyjną, ponieważ nakładanie się okresów kwitnienia obu gatunków sięga 40 procent, co podtrzymuje ciągłe tworzenie się mieszańca. W warunkach kontrolowanych pojedyncze rośliny pozostawały w kwiatach przez 12 dni, przy izolowanych kwiatach trwających 8 dni.
Kwiaty są protogyniczne. Pylniki najbardziej zewnętrznych pręcików uwalniają pyłek jeden lub dwa dni po otwarciu kwiatu, a nitki zaginają się do wewnątrz w ciepłe dni, co czyniłoby samozapylenie mechanicznie możliwym. Gatunek jest jednak w dużej mierze samoniezgodny: próby krzyżowania dały owocowanie u 30 do 59 procent kwiatów przy zapylaniu krzyżowym, wobec zaledwie 2 procent przy samozapyleniu. Zapylanie jest entomofilne, głównie przez błonkoskrzydłe i muchówki przyciągane nektarem i zapachem kwiatów, wynikającym z emisji trimetyloaminy. Pyłek wykazuje wysoką żywotność, 96 do 98 procent.
Owoce rozwijają się przez około 106 dni, wobec 89 dni u C. monogyna, i dojrzewają między czerwcem a listopadem, z późniejszym dojrzewaniem w populacjach północnych. Dojrzały owoc utrzymuje się na roślinie przez około 64 dni, a drzewo utrzymuje dojrzałe owoce przez średnio 82 dni, wobec 150 dni u C. monogyna. Rozsiewanie należy głównie do ptaków owocożernych, zwłaszcza kosa, kwiczoła, droździka i śpiewaka, a nasiona przechodzą przez przewód pokarmowy lub są zwracane. Nie ma trwałego banku nasion w glebie, cecha czyniąca regenerację zależną od świeżego deszczu nasion.
Gatunki pokrewne i pomyłki
Identyfikacja Crataegus w terenie jest uznawana za trudną, a badany materiał powinien obejmować dojrzałe owoce i liście z krótkich pędów bocznych, by umożliwić pewne oznaczenie. Okaz oceniany wyłącznie na podstawie liści z silnych pędów łatwo prowadzi do błędu.
Odróżnienie od Crataegus monogyna
To centralna pomyłka tej grupy i powód odrzucenia nazwy C. oxyacantha. Cechy odróżniające oba gatunki są następujące:
- Pestki owocu: C. laevigata ma zwykle dwie pyreny, dochodząc do trzech; C. monogyna ma jedną pyrenę, sporadycznie dwie.
- Kolce: mniej liczne i krótsze u C. laevigata, 6 do 15 milimetrów, a dłuższe i częstsze u C. monogyna.
- Słupki: zwykle dwa u C. laevigata, z wahaniem od jednego do pięciu; jeden u C. monogyna.
- Klapy liściowe: jedna do trzech par płytkich i zaokrąglonych klap, rzadko sięgających połowy odległości do nerwu głównego u C. laevigata, wobec pięciu do siedmiu głębokich i ostrych klap przekraczających dwie trzecie tej odległości u C. monogyna.
- Nerwy główne: proste lub zakrzywione do przodu u C. laevigata, zakrzywione do tyłu u C. monogyna.
- Szypułki i kępki włosków: nagie szypułki i kąty nerwów bez kępek włosków u C. laevigata, wobec owłosionych szypułek i obecnych kępek w kątach u C. monogyna w Wielkiej Brytanii.
- Wielkość kwiatu: powyżej 15 milimetrów średnicy u C. laevigata, do 15 milimetrów u C. monogyna.
Komplikacją jest to, że oba gatunki są wzajemnie płodne i wydają mieszańca Crataegus × media Bechst., o morfologii pośredniej, z jednym do dwóch słupków i taką samą liczbą pestek. Jedyną istotną barierą dla hybrydyzacji jest przestrzenne oddzielenie siedlisk, a tam, gdzie fragmentacja lasów zbliżyła populacje, mieszaniec stał się częsty, w kilku regionach brytyjskich nawet częstszy niż sama C. laevigata. Okaz o dwóch słupkach nie jest więc automatycznie C. laevigata, a diagnoza zyskuje wiarygodność, gdy kilka cech wskazuje w tym samym kierunku.
Odróżnienie od Crataegus mexicana
Rozróżnienie względem tejocote jest natychmiastowe i nie zależy od subtelnych cech. Gatunek meksykański wydaje owoce jabłkowate 1,5 do 3 centymetrów średnicy, złotożółte do pomarańczowych w dojrzałości, wobec ciemnoczerwonych owoców 8 do 10 milimetrów gatunku europejskiego. Liście C. mexicana są rombowato-eliptyczne do jajowato-lancetowatych, o brzegu piłkowanym i bez wyraźnego klapowania, podczas gdy liście C. laevigata są odwrotnie jajowate i klapowane. Kwiatostan meksykański zbiera 2 do 6 kwiatów w baldachu, wobec baldachogron 3 do 11 kwiatów gatunku europejskiego. Dochodzą do tego całkowicie rozłączne rozmieszczenie, z C. mexicana ograniczoną do gór Meksyku i Gwatemali, oraz utrzymywanie się bardziej skórzastych liści u gatunku neotropikalnego.
Inne gatunki i niejednoznaczność nazw ludowych
Poza C. monogyna gatunek krzyżuje się z C. rhipidophylla, dając C. × macrocarpa, oraz z C. lindmanii, tworząc C. × calycina. Odnotowuje się ponadto mieszaniec międzyrodzajowy z nieszpułką zwyczajną, Mespilus germanica, nazywany × Crataemespilus grandiflora, obok chimer szczepowych znanych jako Crataegomespilus, uzyskiwanych przez szczepienie nieszpułki na głogu.
Warto zaznaczyć ostrzeżenie dotyczące nazewnictwa ludowego w języku polskim. Język ten nie wykształcił nazw ludowych oddzielających europejskie gatunki tego rodzaju, a terminy takie jak głóg dwuszyjkowy i głóg pospolity bywają używane zamiennie. Nazwa głóg dwuszyjkowy odnosi się tu specyficznie do C. laevigata, zgodnie z liczbą słupków charakteryzującą gatunek, podczas gdy głóg jednoszyjkowy oznacza C. monogyna, gatunek znacznie powszechniejszy w Polsce. Wobec każdego tekstu w języku polskim, który posługuje się wyłącznie nazwą ludową, identyfikacja gatunku zależy od sprawdzenia cytowanego dwuczłonu i, gdy to możliwe, opisanych cech.
Fitochemia
Ta sekcja opisuje udokumentowany skład chemiczny gatunku. Chodzi o charakterystykę analityczną, bez jakiegokolwiek związku z działaniem u ludzi.
Całkowita zawartość fenoli zmierzona w C. laevigata sięga 1288 miligramów na 100 gramów masy świeżej, przy całkowitych kwasach fenolowych na poziomie 964 miligramów na 100 gramów, wartości bliskie tym u C. monogyna i wyższe niż u siedmiu innych krzewów analizowanych w tym samym badaniu. W częściach kwiatostanowych dzikich próbek europejskich całkowita zawartość fenoli wahała się od 3 do 19 gramów na kilogram masy suchej, ze średnią 12 gramów na kilogram.
Charakterystyka metodą chromatografii cieczowej sprzężonej ze spektrometrią mas zidentyfikowała 54 związki w liściach i 47 w kwiatach gatunku, wobec 38 i 41 u C. monogyna. Reprezentowane klasy obejmują kwasy chlorogenowe i inne kwasy fenolowe, proantocyjanidyny, glikozydy flawonoidowe i aglikony flawonoidowe. Wśród opisanych flawonoidów figurują apigenina, katechina, epikatechina, hiperozyd, izokwercytryna, izowiteksyna, procyjanidyna B-2, kwercetyna, rutyna i witeksyna. Proantocyjanidyny sięgają 40,6 grama na kilogram w materiale słoweńskim, a całkowita zawartość flawonoidów w kwiatach okazała się najwyższa spośród dziesięciu porównywanych gatunków Crataegus.
Skład ma znaczenie taksonomiczne. Witeksyna i jej pochodne występują w wyższym stężeniu w liściach europejskich gatunków rodzaju, podczas gdy rutyna koncentruje się wyraźnie u gatunków północnoamerykańskich. Nieobecność izoorientyny, orientyny, 8-metoksykemferolu-3-O-glukozydu i 4”-acetylowiteksyny-2”-O-ramnozydu u C. laevigata zaproponowano jako pomocnicze kryterium chemiczne do odróżnienia jej od C. monogyna, co nadaje fitochemii rolę wspomagającą w rozgraniczaniu gatunków.
Wśród triterpenów najbardziej wyróżniającymi się składnikami są kwas oleanolowy i ursolowy. Analizy lotnych związków organicznych wykryły seskwiterpeny kariofilen i humulen w emisjach kwiatowych, przy czym farnezen i monoterpen limonen pojawiają się po kwitnieniu. Nie wykryto alkaloidów ani prawdziwych saponin u tego gatunku, choć zidentyfikowano pseudosaponozyd tormentozyd. Kryształy kwasu szczawiowego występują we wszystkich częściach rośliny i stanowią 0,065 procent suchej masy liścia.
Stężenie metabolitów reaguje na warunki środowiskowe. Siewki poddane dziesięciu dniom suszy wykazały wzrost epikatechiny i hiperozydu przy obniżeniu witeksyny i acetylowiteksyny, podczas gdy stres chłodowy w 4 stopniach Celsjusza podniósł witeksynę, epikatechinę, hiperozyd, kwercetynę i acetylowiteksynę. Gatunek akumuluje ponadto metale ciężkie w korzeniach i liściach, gdy uprawiany jest na glebie skażonej.
Historia i etnobotanika
Ewolucyjne rozdzielenie C. laevigata i C. monogyna datowano metodą analizy DNA chloroplastowego na około dziesięć milionów lat, co czyni morfologiczne podobieństwo między nimi przypadkiem zachowania formy przez znaczny przedział czasu. Zapis kopalny jednak nie odróżnia obu: makroskamieniałości drewna i węgla drzewnego są nierozróżnialne, a to samo dotyczy zwykle nasion. Ziarna pyłku można rozdzielić statystycznie, ponieważ te u C. laevigata są przeważnie sferoidalne, o wielkości 28 do 40 mikrometrów i słabo zaznaczonym prążkowaniu, wobec wydłużonych ziaren 30 do 44 mikrometrów i wysokim reliefie u C. monogyna, ale kryterium to nie było stosowane w praktyce paleobotanicznej.
Głóg jest rośliną powszechną w lasach europejskich od mezolitu, a każdy okres kulturowy od neolitu po czasy normańskie pozostawił zapisy tego rodzaju. Większość zidentyfikowanego materiału prehistorycznego odpowiada C. monogyna, gatunkowi pionierskiemu bardziej efektywnemu w otwierającym się krajobrazie, choć możliwość, że C. laevigata została niedoszacowana z powodu trudności identyfikacyjnych, pozostaje otwarta.
Historycznie udokumentowane zastosowania drewna i rośliny są zróżnicowane. Drewno, gęste i o jednolitym słoju, wykorzystywano do wyrobu trzonków narzędzi i lasek. Kora i korzenie dostarczały żółtego lub brązowego barwnika, a kora była używana w garbarstwie, praktyce udokumentowanej w Algierze. Owoce spożywano na świeżo i przetwarzano na soki, dżemy i wódkę w różnych regionach Europy, i suszono na zimowe spożycie; prażone pestki służyły jako namiastka kawy. We Włoszech głóg powszechnie sadzono w celu ogradzania działek rolnych, funkcja, która zanikła wraz z mechanizacją i potrzebą ruchu maszyn, prowadząc do niemal całkowitego zniknięcia tych żywopłotów.
W dziedzinie dawnej materii medycznej zapis sięga Dioskuridesa, w pierwszym wieku, który określił roślinę grecką nazwą, z której wywodzi się odrzucony dwuczłon linneuszowski. To właśnie ta droga nomenklaturowa, a nie żadna cecha botaniczna, utrwaliła Crataegus oxyacantha w europejskiej literaturze farmaceutycznej na tak długo, dlatego dwuczłon ten nadal pojawia się w źródłach opisujących bez rozróżnienia jeden lub drugi z dwóch europejskich gatunków.
Ochrona
Gatunek jest oceniany jako najmniejszej troski na Czerwonej Liście IUCN, kategoria zgodna z jego szerokim europejskim rozmieszczeniem. Figuruje również na Czerwonej Liście roślin naczyniowych Luksemburga, również w kategorii najmniejszej troski, obok C. monogyna i C. rhipidophylla.
Te liczby ukrywają jednak proces zasługujący na uwagę. Notowana częstość C. laevigata w Wielkiej Brytanii zmieniła się niewiele od 1962 roku, ale część tej pozornej stabilności wynika z nasadzeń w obrębie i poza naturalnym zasięgiem, a inna część z łatwości, z jaką gatunek jest mylony z mieszańcem C. × media, przez co część nowych notowań w rzeczywistości odpowiada mieszańcowi. Za tą pozorną stabilnością kryje się silna przesłanka spadku populacji genetycznie czystych, zwłaszcza w południowo-wschodniej Anglii.
Mechanizm jest dobrze zrozumiany. Zaburzenie i fragmentacja lasów otwierają przestrzeń dla C. monogyna do wnikania w środowiska wcześniej zajmowane wyłącznie przez gatunek cieniolubny, a ponieważ oba są w pełni wzajemnie płodne, konsekwencją jest hybrydyzacja, po której następuje introgresja. Najbardziej pesymistyczna lektura literatury sugerowała już w 1975 roku, że czysta C. laevigata mogłaby całkowicie zniknąć w miarę postępu introgresji, a podobny problem zidentyfikowano w Belgii i Polsce. Stosunkowo czyste populacje przetrwały tam, gdzie kompleksy leśne są duże i mało pofragmentowane, jak w rozległych lasach północno-wschodniej Francji.
Sytuacja odwraca się na obrzeżach zasięgu. W Bułgarii, na skrajnym południowym wschodzie naturalnego obszaru, mieszaniec C. × media jest na tyle rzadki, że zaproponowano wpisanie go do krajowej czerwonej księgi z potrzebą ochrony prawnej. Brak trwałego banku nasion w glebie dodaje czynnik kruchości, ponieważ odbudowa populacji zależy całkowicie od świeżego rozsiewania przez ptaki.
Ciekawostki
- Rozprzestrzenianie się gatunku udokumentowano z nieoczekiwanych źródeł: pestki głogu identyfikowano już w odchodach żurawi, niedźwiedzi i kopytnych, a istnieje dawna relacja o sokole wędrownym, którego siedzisko gromadziło pestki pochodzące z wole schwytanych gołębi.
- De Candolle odnotował w 1825 roku technikę ogrodniczą polegającą na karmieniu indyków pestkami rośliny, których przejście przez przewód pokarmowy ptaków przyspieszało kiełkowanie o około rok w porównaniu z nasionami nieobrabianymi.
- Zapach kwiatów, nieprzyjemny dla ludzkiego węchu, wynika z emisji trimetyloaminy, tego samego związku kojarzonego z zapachem gnijącej ryby, i to właśnie ona przyciąga muchówki odpowiedzialne za część zapylania.
- Duńskie badania szklarniowe zmierzyły, jak bardzo gatunek zależy od zapylaczy: rośliny odwiedzane przez pszczołę murarkę Megachile rotundata wydały 269 owoców, wobec zaledwie jednego owocu u roślin bez dostępu do owadów.
- Odmiana 'Paul’s Scarlet’, o podwójnych czerwonych kwiatach, powstała około 1880 roku jako mutacja pędowa odmiany 'Rosea Flore Pleno’ i ma niejednoznaczny status: w Wielkiej Brytanii i Ameryce Północnej przypisywana jest C. laevigata, podczas gdy na kontynencie europejskim zwykle traktowana jest jako odmiana mieszańca C. × media.
- Maleńki motylek, Coleophora coracipennella, przebija pąki kwiatowe, by żywić się pyłkiem, i doprowadził do wyjałowienia 20 procent kwiatów badanej populacji w Oxfordshire, z bezpośrednim wpływem na produkcję owoców tego roku.
- Głóg z Glastonbury, legendarny głóg związany z angielską tradycją kwitnienia dwa razy w roku, nie należy do tego gatunku: to odmiana 'Biflora’ C. monogyna, przypisanie często mylone w tekstach popularyzatorskich.
- Klasyczna inwentaryzacja Southwooda naliczyła 149 gatunków owadów związanych z brytyjskimi głogami, liczba dająca miarę roli tych drzew jako podpory fauny, choć pozostaje wyraźnie poniżej 284 gatunków notowanych na dębach.
Uwaga: ta treść ma charakter informacyjny i nie zastępuje porady specjalisty. Przed zastosowaniem roślin leczniczych skonsultuj się z lekarzem lub fitoterapeutą, zwłaszcza w ciąży, w okresie karmienia piersią lub podczas przyjmowania leków.
Referencje i badania naukowe
Zobacz Wszystkie 16 Cytowanych Źródeł
Recenzowane Badania Naukowe (3)
- DOI2021 Thomas, P. A., Leski, T., La Porta, N., Dering, M., Iszkuło, G. Biological Flora of the British Isles: Crataegus laevigata. Journal of Ecology, 109(1), 572-596. 2021. ↗
- DOI2012 Edwards, J. E., Brown, P. N., Talent, N., Dickinson, T. A., Shipley, P. R. A review of the chemistry of the genus Crataegus. Phytochemistry, 79, 5-26. 2012. ↗
- DOI2021 Fichtner, A., Wissemann, V. Biological Flora of the British Isles: Crataegus monogyna. Journal of Ecology, 109, 541-571. 2021. ↗
Lektury Uzupełniające (13)
- 1992 Christensen, K. I. Revision of Crataegus sect. Crataegus and nothosect. Crataeguineae (Rosaceae-Maloideae) in the Old World. Systematic Botany Monographs, 35, 1-199. 1992.
- 1974 Byatt, J. I. Application of the names Crataegus calycina Peterm. and C. oxyacantha L. Botanical Journal of the Linnean Society, 69, 15-21. 1974.
- 1975 Byatt, J. I. Hybridization between Crataegus monogyna Jacq. and C. laevigata (Poiret) DC. in south-eastern England. Watsonia, 10, 253-264. 1975.
- 2012 Christensen, K. I., Talent, N. Crataegus laevigata or C. levigata (Rosaceae), a paleographic analysis. Phyton (Horn, Austria), 52(2), 195-201. 2012.
- de Candolle, A. P. Prodromus Systematis Naturalis Regni Vegetabilis, pars 2. Paris. 1825.
- Poiret, J. L. M. Mespilus laevigata. In: Encyclopédie Méthodique, Botanique, 4(2), 439. Paris. 1798.
- 2006 Bujarska-Borkowska, B. Seed dormancy breaking in Crataegus laevigata. Dendrobiology, 56, 3-11. 2006.
- 2015 Karar, M. G. E., Kuhnert, N. UPLC-ESI-Q-TOF-MS/MS characterization of phenolics from Crataegus monogyna and Crataegus laevigata leaves, fruits and their derived drops. Journal of Chemical Biology & Therapeutics, 1, e102. 2015.
- 2012 Lo, E. Y. Y., Donoghue, M. J. Expanded phylogenetic and dating analyses of the apples and their relatives (Pyreae, Rosaceae). Molecular Phylogenetics and Evolution, 63, 230-243. 2012.
- 1991 Eriksson, O., Ehrlén, J. Phenological variation in fruit characteristics in vertebrate-dispersed plants. Oecologia, 86, 463-470. 1991.
- 2014 Sell, P., Murrell, G. Flora of Great Britain and Ireland, vol. 2. Cambridge University Press. 2014.
- International Plant Names Index. Crataegus laevigata (Poir.) DC. Royal Botanic Gardens Kew, Harvard University Herbaria and Australian National Herbarium. Registro 723644-1. ↗
- Plants of the World Online. Crataegus laevigata (Poir.) DC. Royal Botanic Gardens Kew. ↗