A Crataegus laevigata é o espinheiro dos bosques antigos da Europa ocidental e central, uma árvore pequena que ocupa o interior sombreado das matas maduras enquanto sua congênere mais conhecida domina as sebes e as bordas abertas. Pertence à Rosaceae, família que reúne a macieira, a pereira, a roseira e o morangueiro, e situa-se dentro dela na tribo Maleae, o grupo dos frutos pomáceos. Na Grã-Bretanha, onde recebeu um dos estudos ecológicos mais detalhados já dedicados a uma espécie lenhosa europeia, ela funciona como planta indicadora de bosque antigo, condição que permite ler a história de uma floresta a partir da sua composição.
Poucas plantas europeias carregam um histórico nomenclatural tão embaraçado. Durante mais de dois séculos esta espécie e a Crataegus monogyna foram tratadas como uma coisa só, sob o nome Crataegus oxyacantha, binômio que acabou formalmente rejeitado por ambiguidade justamente porque não se conseguiu determinar a qual das duas plantas Linnaeus se referia. O rastro dessa confusão sobrevive em literatura antiga, em catálogos de viveiro e em rótulos comerciais, e obriga quem lê fontes anteriores ao século XX a examinar o material descrito antes de aceitar o nome impresso.
Esta página reúne o perfil botânico da espécie: classificação formal, caracteres de identificação em campo, distribuição e ambiente, exigências de cultivo, calendário reprodutivo, parentes próximos que se confundem com ela, composição química descritiva, registro histórico e etnográfico, e situação de conservação.
Taxonomia
A posição da espécie na classificação botânica atual é a seguinte:
- Reino: Plantae
- Divisão: Tracheophyta (Magnoliophyta, angiospermas)
- Classe: Magnoliopsida (eudicotiledôneas)
- Ordem: Rosales
- Família: Rosaceae
- Subfamília: Amygdaloideae
- Tribo: Maleae
- Gênero: Crataegus L., 1753
- Espécie: Crataegus laevigata (Poir.) DC., 1825
O basiônimo é Mespilus laevigata Poir., publicado em 1798 na Encyclopédie Méthodique, e a transferência para Crataegus coube a Augustin Pyramus de Candolle no segundo volume do Prodromus Systematis Naturalis Regni Vegetabilis, de 1825. O registro do IPNI confirma a autoria e a página de publicação original.
O gênero é um dos mais difíceis da família. Dependendo do tratamento adotado, o número de espécies aceitas oscila entre cerca de 140 e mais de mil, amplitude que não reflete ignorância dos especialistas e sim a biologia do grupo: hibridação extensa, apomixia e poliploidia produzem populações intermediárias que resistem a limites nítidos.
Sinônimos Aceitos
- Crataegus coriacea Gand.
- Crataegus helvetica Walo Koch
- Crataegus oxyacantha f. laevigata (Poir.) Beck
- Crataegus oxyacanthoides Thuill.
- Crataegus palmstruchii Lindm.
- Crataegus subinermis Gand.
- Mespilus digyna Gray
- Mespilus intermedia Poir.
- Mespilus laevigata Poir.
- Mespilus oxyacanthoides (Thuill.) DC.
- Oxyacantha obtusata (DC.) Roem.
- Oxyacantha vulgaris (DC.) Roem.
A Rejeição do Nome Crataegus oxyacantha
Linnaeus reuniu sob Crataegus oxyacantha o que hoje se reconhece como duas espécies distintas, e autores regionais de quase toda a Europa seguiram empregando o binômio como termo agregado. A primeira flora britânica a separar C. laevigata de C. monogyna foi a de Babington, em 1843, que as tratou como variedades embora já sugerisse que poderiam constituir espécies próprias. A ambiguidade só se resolveu por via formal quando Byatt, em 1974, demonstrou que o nome linneano não podia ser aplicado com segurança a nenhuma das duas plantas, o que levou à sua rejeição.
Há ainda uma discussão menor sobre a grafia do epíteto. Gutermann sustentou em 2011 que a forma correta seria levigata, com base na leitura da publicação de De Candolle, mas o exame detido do original conduzido por Christensen e Talent em 2012 confirmou laevigata como grafia válida.
Subespécies
O tratamento de Sell e Murrell reconhece duas entidades infraespecíficas, tratadas por outros autores como variedades. A subsp. laevigata predomina no oeste da área de distribuição e nas terras baixas, sendo a forma dominante na Grã-Bretanha, com folhas de 15 a 35 milímetros, quase glabras e sem tufos de pelos nas axilas das nervuras da face inferior. A subsp. palmstruchii é mais frequente em montanhas e no leste, com folhas de 30 a 50 milímetros, nervuras mais densamente pubescentes na face inferior, tufos de pelos axilares presentes, hipanto piloso e frutos elipsoides maiores, de 10 a 14 milímetros por 13 a 15 milímetros.
Etimologia
O nome genérico Crataegus vem do grego krataigos, derivado de kratys, força ou robustez. A segunda parte do composto admite mais de uma leitura: alguns autores a associam a akis, ponta aguda, em referência aos espinhos, enquanto outros a ligam a aix, cabra, sugerindo a cerca viva capaz de conter o rebanho. As três interpretações convergem para os mesmos atributos da planta, a dureza da madeira e o armamento dos ramos. O epíteto laevigata deriva do latim laevigare, alisar ou polir, e descreve a superfície glabra e lustrosa da folhagem, caráter que também rendeu à espécie o nome inglês de espinheiro liso.
Descrição Morfológica
Árvore pequena caducifólia que alcança 8 metros de altura com alguma frequência e excepcionalmente 12 metros, embora se apresente com igual frequência como arbusto multicaule de porte desordenado. A copa é densa, larga e arredondada, e o tronco não se prolonga muito para dentro dela, ramificando cedo. Os ramos são espalhados ou ascendentes, em geral menos rígidos que os de C. monogyna, e tendem a pender nas extremidades. As gemas são ovoides a subglobosas, de ápice arredondado, medindo entre 1,1 e 2,1 milímetros de comprimento por 1,2 a 1,9 milímetro de largura, com escamas castanho-escuras.
Folhas
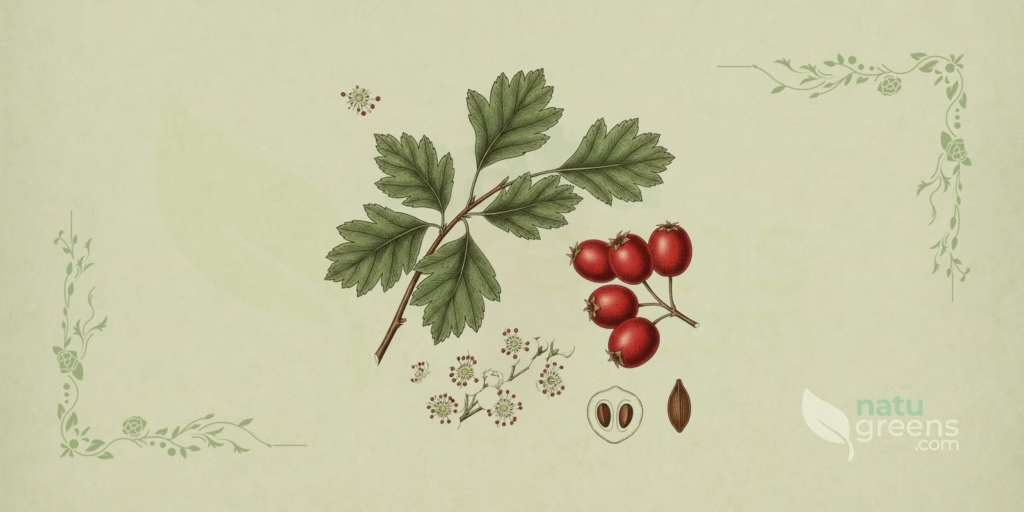
As folhas são alternas, com frequência coriáceas, verde-escuras e brilhantes na face superior e verde-pálidas na inferior. São glabras salvo por pelos esparsos ao longo das nervuras principais em ambas as faces quando jovens, e caracteristicamente não apresentam os tufos de pelos nas axilas das nervuras que são comuns em C. monogyna na Grã-Bretanha. O contorno vai de obovado a subarredondado, com um a três pares de lobos obtusos e rasos que raramente atingem metade da distância até a nervura central. Os lobos são arredondados no contorno e mais largos que longos, com margem crenado-serrada exceto nos sinus, e o lobo basal traz de 6 a 15 dentes.
O tamanho varia conforme a posição no ramo, e essa variação tem valor prático para quem coleta material de herbário. As folhas dos ramos longos são as maiores e as mais profundamente lobadas, medindo de 1,9 a 7,2 centímetros por 1,8 a 5,1 centímetros. As dos ramos curtos ficam entre 2,0 e 6,0 centímetros por 1,5 a 3,2 centímetros, e as dos ramos floríferos são menores ainda, com um ou dois pares de lobos ou nenhum. As nervuras principais são retas ou curvam-se para diante em direção ao ápice da folha, ao contrário do que ocorre em C. monogyna, onde se curvam para trás. A base é cuneada ou arredondada, o ápice acuminado, o pecíolo mede de 6 a 20 milímetros e as estípulas são conspícuas e foliáceas nos ramos longos.
Flores
As flores nascem sobretudo em ramos curtos, reunidas em corimbos laxos de 3 a 11 unidades, com 2,5 a 5,0 centímetros de largura. Os pedicelos medem de 6 a 30 milímetros e são glabros ou raramente vilosos, caráter que ajuda a separar a espécie de C. monogyna, cujos pedicelos são pubescentes. Cada flor é hermafrodita e mede de 15 a 18 milímetros de diâmetro. As sépalas, em número de cinco, são largamente triangulares, tão largas quanto longas, de margem inteira e ápice agudo. As cinco pétalas são brancas ou rosa-pálidas, com papilas estriadas, medindo de 5 a 10 milímetros por 5 a 9 milímetros. O hipanto tem de 3 a 4 milímetros e é glabro.
Os estames somam de 17 a 22, com filamentos pálidos e anteras rosadas, raramente arroxeadas. Os estiletes são geralmente dois, podendo variar de um a cinco em flores isoladas, e os estigmas são amarelos. O número de estiletes constitui o caráter diagnóstico mais confiável do grupo, porque se traduz diretamente no número de caroços do fruto e permanece legível mesmo em material seco.
Frutos e Sementes
O fruto é um pomo subgloboso a elipsoide, vermelho-escuro na maturação, com 8 a 10 milímetros de diâmetro na maioria dos exemplares e amplitude registrada de 6 a 14 milímetros, por 6 a 12 milímetros de comprimento. O volume médio, de cerca de 1,60 centímetro cúbico, é mais que o dobro do medido em C. monogyna, cerca de 0,73 centímetro cúbico. A superfície é geralmente glabra e desprovida de protuberâncias basais, e o ápice ostenta a coroa de sépalas persistentes, recurvadas ou espalhadas. A polpa é amarelada, com teor de umidade entre 68 e 77 por cento.
Os caroços, ou pirenos, são em geral dois e acompanham o número de estiletes da flor que os originou. Medem cerca de 5 a 6 milímetros, com escavações dorsal e ventro-laterais, e diferem sutilmente dos de C. monogyna pela extremidade mais obtusa, contra o ápice pontiagudo da espécie irmã. Cada fruto guarda em média de 2,1 a 2,8 sementes, com massa individual de 60 a 68 miligramas, portanto menores que as de C. monogyna, que ficam entre 97 e 130 miligramas. Estudos de ecologia da dispersão classificam os frutos como não tóxicos, sem risco para os animais que os consomem, humanos incluídos.
Casca e Ramos
A casca é cinza-acastanhada a castanho-alaranjada e torna-se rachada e fissurada com a idade. Os raminhos são de um cinza-acastanhado opaco, densamente dispostos, e apresentam-se brilhantes e glabros quando jovens. Os espinhos são menos numerosos e mais curtos que em C. monogyna, medindo de 6 a 15 milímetros, diferença coerente com o hábito florestal da espécie, menos exposta ao ramoneio que as populações de sebe.
Distribuição e Habitat
A espécie é nativa da Europa ocidental e central. A área de ocorrência natural estende-se das Ilhas Britânicas ao leste até a Chéquia e a Hungria, com presença quase certamente nativa na Romênia e na Ucrânia. Ao norte alcança o sul da Suécia, a Letônia e a Estônia, e ao sul chega aos Pirineus espanhóis e à Itália, muito provavelmente incluindo a Sicília. As bases taxonômicas registram ainda ocorrência na Áustria, Bélgica, Bielorrússia, Córsega, Dinamarca, Eslováquia, Suíça, Alemanha, França, Países Baixos, Noruega, Polônia e Rússia europeia. É mais difundida na porção centro-setentrional dessa área e torna-se rara nas bordas, como na Bélgica, estando ausente da Grécia.
Nas Ilhas Britânicas a distribuição é bem mais restrita que a de C. monogyna. A espécie concentra-se no sul e no leste da Inglaterra, avançando naturalmente até as Midlands, o que originou seu nome vernáculo inglês. Está em larga medida ausente como planta espontânea da Escócia e do País de Gales, e os registros escoceses correspondem quase sempre a exemplares plantados. Se é ou não nativa da Irlanda permanece em discussão: há espécimes maduros em vários condados e um registro de herbário do híbrido datado de 1895, mas a hipótese mais aceita atribui sua presença a estoque de viveiro inglês introduzido durante os cercamentos parlamentares.
Fora da área natural a espécie foi levada para diversas regiões temperadas. Naturalizou-se nas Gulf Islands do estado de Washington, no Canadá e no leste dos Estados Unidos, e foi introduzida na Tasmânia e em outras partes da Austrália no século XIX para formação de sebes, onde hoje é considerada planta daninha nociva em vários estados. Existem ainda registros do Japão, da Nova Zelândia, da Tanzânia e da África Ocidental, além dos Himalaias temperados da Índia, entre 1.800 e 3.000 metros de altitude.
O habitat típico define a espécie tanto quanto sua morfologia. Trata-se de planta de bosque antigo, tolerante à sombra, encontrada no interior de matas maduras, em bordas de bosque, sebes velhas e taludes de divisa sobre solos argilosos. Prefere solos de textura pesada, de loam a argila, e evita de forma consistente o giz, o calcário, os solos oolíticos e as argilas com sílex, restrição que explica sua concentração nas Midlands inglesas e no Weald do sudeste. O valor indicador de Ellenberg para pH na Grã-Bretanha é 7, compatível com condições de fracamente ácidas a fracamente básicas. Em altitude vai do nível do mar no oeste até 810 metros nos Sudetos poloneses, 956 metros na Eslovênia, 1.281 metros nos montes Tatra e 1.560 metros no Piano Ruggio, na Itália.
Cultivo
A espécie é subatlântica e prefere clima temperado fresco. As médias registradas na Grã-Bretanha situam-se em 3,5 graus Celsius para janeiro e 16,2 graus para julho, com precipitação anual de cerca de 674 milímetros, portanto em ambientes ligeiramente mais quentes e secos que os ocupados por C. monogyna. Suporta bem os invernos do centro e do norte da Europa e não tem exigência térmica que a restrinja nas zonas temperadas.
Quanto ao solo, cresce numa faixa ampla de substratos, incluindo silicosos e moderadamente ácidos, e tolera variação considerável de umidade. Dentro dessa amplitude, porém, desempenha melhor em solos de loam e argila, sobretudo os pesados. A tolerância à sombra é o traço agronômico que a distingue: floresce prontamente mesmo sob dossel fechado e domina o sub-bosque de talhadias crescidas, situação em que C. monogyna não se estabelece. Onde a luz aumenta por perturbação ou corte, a relação se inverte e a espécie perde espaço.
Propagação por Semente
As sementes apresentam dormência dupla, combinação de tegumento duro com exigência fisiológica de frio. Sem tratamento prévio a germinação pode não ocorrer antes de 18 meses, ou mesmo antes da terceira estação de crescimento após a produção. O protocolo estabelecido em ensaios poloneses consiste em estratificação quente em meio úmido, com temperatura alternando entre 20 e 30 graus Celsius por 16 a 20 semanas, seguida de fase fria a 3 graus por 16 a 18 semanas, período ao fim do qual as radículas já despontam. Esse tratamento eleva a germinação de 2 a 4 por cento para 87 a 94 por cento, e as plântulas emergem em quatro a seis semanas após a semeadura.
A escarificação química em ácido sulfúrico concentrado por duas a três horas, seguida de embebição em água por 24 horas, permite encurtar a fase quente de 16 a 20 semanas para apenas quatro, com taxas de germinação equivalentes. As sementes são ortodoxas e podem ser secas a 9 a 13 por cento de umidade sem perda de viabilidade, tolerando armazenamento a menos 3 graus Celsius por 12 meses com queda modesta na germinação. A germinação é epígea e a radícula desenvolve-se em raiz pivotante com laterais finas e curtas.
Propagação Vegetativa e Sanidade
As cultivares ornamentais são multiplicadas por enxertia, prática que também preserva caracteres florais que não se transmitem por semente. A espécie responde bem ao corte e forma touceiras grandes sob regime de talhadia, o que favorece sua permanência em bosques manejados. Foi ainda avaliada como porta-enxerto ananicante para pereiras, com compatibilidade relatada para clones de Pyrus communis e outras Maleae.
O ponto sensível do cultivo é a sanidade. Os espinheiros europeus, incluindo esta espécie, são altamente suscetíveis ao fogo bacteriano causado por Erwinia amylovora, e as cultivares ‘Paul’s Scarlet’ e ‘Rosea Flore Pleno’ figuram entre as mais afetadas. Plantios podem funcionar como reservatório de inóculo para macieiras e pereiras vizinhas, embora o risco associado a C. laevigata seja menor que o de C. monogyna pela sua ocorrência mais florestal e mais distante dos pomares. Somam-se o oídio Podosphaera clandestina, as ferrugens do gênero Gymnosporangium, que exigem hospedeiro alternante de Juniperus, e a mancha foliar provocada por Entomosporium thuemenii e Diplocarpon mespili.
Fenologia
A floração ocorre de abril a junho, deslocando-se para o fim desse intervalo no extremo norte da distribuição, na Suécia. No sudeste da Inglaterra a coincidência com o calendário litúrgico rendeu à planta o nome local de rosa de Pentecostes. Os dados holandeses de longa série documentam um adiantamento expressivo: o início médio da floração passou de 17 de maio, na série de 1940 a 1968, para 1 de maio na série de 2001 a 2010. As flores abrem antes de as folhas estarem plenamente desenvolvidas, e mais cedo em arbustos do que em árvores.
A espécie entra em folha antes de C. monogyna e floresce cerca de 8 a 14 dias antes dela. Essa antecipação é insuficiente para constituir barreira reprodutiva, porque a sobreposição dos períodos de floração das duas espécies chega a 40 por cento, o que sustenta a formação contínua do híbrido. Em condições controladas, plantas individuais mantiveram-se floridas por 12 dias, com flores isoladas durando 8 dias.
As flores são protogínicas. As anteras dos estames mais externos liberam pólen um ou dois dias depois da abertura da flor, e os filamentos curvam-se para dentro em dias quentes, arranjo que tornaria a autopolinização mecanicamente viável. A espécie é, contudo, largamente auto-incompatível: ensaios de cruzamento obtiveram frutificação em 30 a 59 por cento das flores sob polinização cruzada, contra apenas 2 por cento sob autopolinização. A polinização é entomófila, sobretudo por himenópteros e dípteros atraídos pelo néctar e pelo odor das flores, que resulta da emissão de trimetilamina. O pólen apresenta viabilidade alta, de 96 a 98 por cento.
Os frutos desenvolvem-se ao longo de cerca de 106 dias, contra 89 dias em C. monogyna, e amadurecem entre junho e novembro, com maturação tardia nas populações setentrionais. Um fruto maduro persiste na planta por cerca de 64 dias, e a árvore mantém frutos maduros por uma média de 82 dias, contra 150 dias em C. monogyna. A dispersão cabe principalmente a aves frugívoras, com destaque para o melro, o tordo-zornal, o tordo-ruivo e o tordo-músico, e as sementes atravessam o trato digestivo ou são regurgitadas. Não há banco de sementes persistente no solo, característica que torna a regeneração dependente de chuva de sementes recente.
Espécies Relacionadas e Confusões
A identificação de Crataegus em campo é reconhecidamente difícil, e o material examinado deve incluir frutos maduros e folhas de ramos laterais curtos para permitir determinação segura. Um exemplar julgado apenas pelas folhas de brotos vigorosos conduz a erro com facilidade.
Distinção de Crataegus monogyna
Esta é a confusão central do grupo e a razão de existir a rejeição do nome C. oxyacantha. Os caracteres que separam as duas espécies são os seguintes:
- Caroços do fruto: C. laevigata tem geralmente dois pirenos, podendo chegar a três; C. monogyna tem um único pireno, ocasionalmente dois.
- Espinhos: menos numerosos e mais curtos em C. laevigata, de 6 a 15 milímetros, e mais longos e frequentes em C. monogyna.
- Estiletes: geralmente dois em C. laevigata, com variação de um a cinco; um único em C. monogyna.
- Lobos foliares: um a três pares de lobos rasos e arredondados que raramente alcançam metade da distância até a nervura central em C. laevigata, contra cinco a sete lobos profundos e agudos que ultrapassam dois terços dessa distância em C. monogyna.
- Nervuras principais: retas ou curvadas para diante em C. laevigata, curvadas para trás em C. monogyna.
- Pedicelos e tufos de pelos: pedicelos glabros e axilas de nervura sem tufos de pelos em C. laevigata, contra pedicelos pubescentes e tufos axilares presentes em C. monogyna na Grã-Bretanha.
- Tamanho da flor: acima de 15 milímetros de diâmetro em C. laevigata, até 15 milímetros em C. monogyna.
O complicador é que as duas espécies são interférteis e produzem o híbrido Crataegus × media Bechst., de morfologia intermediária, com um a dois estiletes e igual número de caroços. A única barreira relevante à hibridação é a separação espacial dos habitats, e onde a fragmentação florestal aproximou as populações o híbrido tornou-se frequente, em várias regiões britânicas mais comum que a própria C. laevigata. Um exemplar com dois estiletes, portanto, não é automaticamente C. laevigata, e o diagnóstico ganha confiabilidade quando vários caracteres apontam na mesma direção.
Distinção de Crataegus mexicana
A separação em relação ao tejocote é imediata e não depende de caracteres sutis. A espécie mexicana produz pomos de 1,5 a 3 centímetros de diâmetro, amarelo-dourados a alaranjados na maturação, contra os frutos vermelho-escuros de 8 a 10 milímetros da espécie europeia. As folhas de C. mexicana são romboide-elípticas a ovado-lanceoladas, de margem serrada e sem lobação marcada, enquanto as de C. laevigata são obovadas e lobadas. A inflorescência mexicana reúne de 2 a 6 flores em umbela, contra os corimbos de 3 a 11 flores da europeia. Somam-se a distribuição inteiramente disjunta, com C. mexicana restrita às montanhas do México e da Guatemala, e a persistência de folhas mais coriáceas na espécie neotropical.
Outras Espécies e a Ambiguidade dos Nomes Populares
Além de C. monogyna, a espécie hibrida com C. rhipidophylla, originando C. × macrocarpa, e com C. lindmanii, formando C. × calycina. Registra-se ainda o híbrido intergenérico com a nespereira-europeia, Mespilus germanica, denominado × Crataemespilus grandiflora, além das quimeras de enxerto conhecidas como Crataegomespilus, obtidas ao enxertar nespereira sobre espinheiro.
Convém um alerta sobre a nomenclatura vernácula em português. A língua não desenvolveu nomes populares que separem as espécies europeias do gênero, e termos como escalheiro, espinheiro-alvar, estripeiro e pilriteiro aplicam-se de modo preferencial a C. monogyna, que é a espécie de ocorrência corrente em Portugal. A designação espinheiro-branco circula em português associada a C. laevigata, herança direta do antigo nome farmacêutico C. oxyacantha, mas também é empregada em sentido amplo para o gênero. Diante de qualquer texto em português que use apenas o nome popular, a identificação da espécie depende de verificar o binômio citado e, quando possível, os caracteres descritos.
Fitoquímica
Esta seção descreve a composição química documentada para a espécie. Trata-se de caracterização analítica, sem qualquer relação com efeitos em pessoas.
O conteúdo fenólico total medido em C. laevigata alcança 1.288 miligramas por 100 gramas de massa fresca, com ácidos fenólicos totais em 964 miligramas por 100 gramas, valores próximos aos de C. monogyna e superiores aos de sete outros arbustos analisados no mesmo estudo. Nas partes floríferas de amostras europeias silvestres, o conteúdo fenólico total variou de 3 a 19 gramas por quilograma de massa seca, com média de 12 gramas por quilograma.
A caracterização por cromatografia acoplada a espectrometria de massas identificou 54 compostos nas folhas e 47 nas flores da espécie, contra 38 e 41 em C. monogyna. As classes representadas incluem ácidos clorogênicos e outros ácidos fenólicos, proantocianidinas, glicosídeos flavonoides e agliconas flavonoides. Entre os flavonoides descritos figuram apigenina, catequina, epicatequina, hiperosídeo, isoquercitrina, isovitexina, procianidina B-2, quercetina, rutina e vitexina. As proantocianidinas atingem 40,6 gramas por quilograma em material esloveno, e o conteúdo total de flavonoides das flores mostrou-se o mais alto entre dez espécies de Crataegus comparadas.
A composição tem interesse taxonômico. A vitexina e seus derivados ocorrem em concentração mais alta nas folhas das espécies europeias do gênero, ao passo que a rutina se concentra de forma marcada nas norte-americanas. A ausência de isoorientina, orientina, 8-metoxikaempferol-3-O-glucosídeo e 4”-acetil-vitexina-2”-O-ramnosídeo em C. laevigata foi proposta como critério químico auxiliar para separá-la de C. monogyna, o que dá à fitoquímica um papel de apoio à delimitação das espécies.
Entre os triterpenos, os ácidos oleanólico e ursólico são os componentes proeminentes. Análises de compostos orgânicos voláteis detectaram os sesquiterpenos cariofileno e humuleno nas emissões florais, com farneseno e o monoterpeno limoneno surgindo após a floração. Não se detectaram alcaloides nem saponinas verdadeiras na espécie, embora o pseudo-saponosídeo tormentosídeo tenha sido identificado. Cristais de ácido oxálico ocorrem em todas as partes da planta e representam 0,065 por cento da massa seca foliar.
A concentração de metabólitos responde a condições ambientais. Mudas submetidas a dez dias de seca apresentaram elevação de epicatequina e hiperosídeo com redução de vitexina e acetilvitexina, enquanto o estresse por frio a 4 graus Celsius elevou vitexina, epicatequina, hiperosídeo, quercetina e acetilvitexina. A espécie acumula ainda metais pesados em raízes e folhas quando cultivada em solo contaminado.
História e Etnobotânica
A separação evolutiva entre C. laevigata e C. monogyna foi datada por análise de DNA de cloroplasto em cerca de dez milhões de anos, o que faz da semelhança morfológica entre ambas um caso de conservação de forma ao longo de um intervalo considerável. O registro fóssil, porém, não distingue as duas: macrofósseis de madeira e carvão são indistinguíveis, e o mesmo vale em regra para as sementes. Os grãos de pólen podem ser separados estatisticamente, já que os de C. laevigata são predominantemente esferoidais, com 28 a 40 micrômetros e estriação de baixo relevo, contra grãos alongados de 30 a 44 micrômetros e relevo alto em C. monogyna, mas o critério não chegou a ser aplicado na prática paleobotânica.
O espinheiro é planta comum nos bosques europeus desde o Mesolítico, e todo período cultural do Neolítico à época normanda deixou registros do gênero. A maior parte do material pré-histórico identificado corresponde a C. monogyna, espécie pioneira mais eficiente numa paisagem em abertura, embora a possibilidade de que C. laevigata tenha sido subestimada por dificuldade de identificação permaneça em aberto.
Os usos históricos registrados para a madeira e para a planta são variados. A madeira, densa e de grão uniforme, foi empregada na confecção de cabos de ferramenta e bengalas. A casca e as raízes forneceram tintura amarela ou castanha, e a casca foi utilizada em curtimento, prática documentada em Argel. Os frutos foram consumidos frescos e transformados em sucos, geleias e aguardente em várias regiões europeias, e eram secos para consumo no inverno; os caroços torrados serviram como sucedâneo de café. Na Itália, o espinheiro foi correntemente plantado para cercar parcelas agrícolas, função que se perdeu com a mecanização e a necessidade de circulação de máquinas, levando ao desaparecimento quase completo dessas sebes.
No campo da matéria médica antiga, o registro remonta a Dioscórides, no primeiro século, que designou a planta pelo nome grego que originaria o binômio linneano rejeitado. Foi esse trajeto nomenclatural, e não qualquer atributo botânico, que fixou Crataegus oxyacantha na literatura farmacêutica europeia por tanto tempo, razão pela qual o binômio continua a aparecer em fontes que descrevem indiferentemente uma ou outra das duas espécies europeias.
Conservação
A espécie é avaliada como de Menor Preocupação na Lista Vermelha da IUCN, categoria coerente com sua ampla distribuição europeia. Consta também da Lista Vermelha das plantas vasculares de Luxemburgo, ali igualmente na categoria de menor preocupação, ao lado de C. monogyna e C. rhipidophylla.
Esses números, contudo, escondem um processo que merece atenção. A frequência registrada de C. laevigata na Grã-Bretanha mudou pouco desde 1962, mas parte dessa estabilidade aparente decorre de plantios feitos dentro e fora da área nativa, e outra parte da facilidade com que a espécie é confundida com o híbrido C. × media, o que faz alguns registros novos corresponderem na verdade ao híbrido. Por trás dessa aparência de estabilidade há forte indício de declínio das populações geneticamente puras, com destaque para o sudeste inglês.
O mecanismo é bem compreendido. A perturbação e a fragmentação dos bosques abrem espaço para C. monogyna penetrar em ambientes antes ocupados apenas pela espécie de sombra, e como as duas são plenamente interférteis a consequência é hibridação seguida de introgressão. A avaliação mais pessimista da literatura chegou a sugerir, ainda em 1975, que C. laevigata pura poderia desaparecer por completo à medida que a introgressão avançasse, e problema equivalente foi identificado na Bélgica e na Polônia. Populações relativamente puras sobrevivem onde os maciços florestais são grandes e pouco fragmentados, como em florestas extensas do nordeste francês.
A situação se inverte nas bordas da distribuição. Na Bulgária, no extremo sudeste da área nativa, o híbrido C. × media é raro a ponto de ter sido proposto para inclusão no livro vermelho nacional com necessidade de proteção legal. A ausência de banco de sementes persistente no solo acrescenta um fator de fragilidade, porque a recuperação de uma população depende inteiramente de dispersão recente por aves.
Curiosidades
- A dispersão da espécie foi documentada a partir de fontes inesperadas: caroços de espinheiro já foram identificados em dejetos de grou, de ursos e de ungulados, e há relato antigo de um falcão-peregrino cujo poleiro acumulava caroços vindos das papadas dos pombos capturados.
- De Candolle registrou em 1825 uma técnica de horticultura que consistia em alimentar perus com os caroços da planta, cuja passagem pelo trato digestivo das aves antecipava a germinação em cerca de um ano em relação às sementes não tratadas.
- O cheiro das flores, desagradável para o olfato humano, deve-se à emissão de trimetilamina, o mesmo composto associado ao odor de peixe em decomposição, e é justamente ele que atrai os dípteros responsáveis por parte da polinização.
- Ensaios dinamarqueses em estufa mediram o quanto a espécie depende de polinizadores: plantas visitadas pela abelha-cortadeira Megachile rotundata produziram 269 frutos, contra um único fruto nas plantas mantidas sem acesso a insetos.
- A cultivar ‘Paul’s Scarlet’, de flores dobradas vermelhas, surgiu por volta de 1880 como mutação de ramo da cultivar ‘Rosea Flore Pleno’ e tem estatuto ambíguo: na Grã-Bretanha e na América do Norte é atribuída a C. laevigata, enquanto na Europa continental costuma ser tratada como cultivar do híbrido C. × media.
- Uma mariposa minúscula, Coleophora coracipennella, perfura os botões florais para alimentar-se de pólen e chegou a esterilizar 20 por cento das flores de uma população estudada em Oxfordshire, com reflexo direto na produção de frutos daquele ano.
- O Glastonbury Thorn, o espinheiro lendário associado à tradição inglesa por florescer duas vezes ao ano, não pertence a esta espécie: trata-se da cultivar ‘Biflora’ de C. monogyna, atribuição frequentemente trocada em textos de divulgação.
- O levantamento clássico de Southwood contabilizou 149 espécies de insetos associadas aos espinheiros britânicos, número que dá a medida do papel dessas árvores como suporte de fauna, ainda que fique bem abaixo das 284 espécies registradas em carvalhos.
Aviso: este conteúdo é informativo e não substitui orientação de profissional de saúde. Consulte um médico ou fitoterapeuta antes de usar plantas medicinais, especialmente na gravidez, na lactação ou em uso de medicamentos.
Referências e Estudos Científicos
Ver Todas as 16 Referências Citadas
Estudos Científicos Peer-Reviewed (3)
- DOI2021 Thomas, P. A., Leski, T., La Porta, N., Dering, M., Iszkuło, G. Biological Flora of the British Isles: Crataegus laevigata. Journal of Ecology, 109(1), 572-596. 2021. ↗
- DOI2012 Edwards, J. E., Brown, P. N., Talent, N., Dickinson, T. A., Shipley, P. R. A review of the chemistry of the genus Crataegus. Phytochemistry, 79, 5-26. 2012. ↗
- DOI2021 Fichtner, A., Wissemann, V. Biological Flora of the British Isles: Crataegus monogyna. Journal of Ecology, 109, 541-571. 2021. ↗
Leituras Complementares (13)
- 1992 Christensen, K. I. Revision of Crataegus sect. Crataegus and nothosect. Crataeguineae (Rosaceae-Maloideae) in the Old World. Systematic Botany Monographs, 35, 1-199. 1992.
- 1974 Byatt, J. I. Application of the names Crataegus calycina Peterm. and C. oxyacantha L. Botanical Journal of the Linnean Society, 69, 15-21. 1974.
- 1975 Byatt, J. I. Hybridization between Crataegus monogyna Jacq. and C. laevigata (Poiret) DC. in south-eastern England. Watsonia, 10, 253-264. 1975.
- 2012 Christensen, K. I., Talent, N. Crataegus laevigata or C. levigata (Rosaceae), a paleographic analysis. Phyton (Horn, Austria), 52(2), 195-201. 2012.
- de Candolle, A. P. Prodromus Systematis Naturalis Regni Vegetabilis, pars 2. Paris. 1825.
- Poiret, J. L. M. Mespilus laevigata. In: Encyclopédie Méthodique, Botanique, 4(2), 439. Paris. 1798.
- 2006 Bujarska-Borkowska, B. Seed dormancy breaking in Crataegus laevigata. Dendrobiology, 56, 3-11. 2006.
- 2015 Karar, M. G. E., Kuhnert, N. UPLC-ESI-Q-TOF-MS/MS characterization of phenolics from Crataegus monogyna and Crataegus laevigata leaves, fruits and their derived drops. Journal of Chemical Biology & Therapeutics, 1, e102. 2015.
- 2012 Lo, E. Y. Y., Donoghue, M. J. Expanded phylogenetic and dating analyses of the apples and their relatives (Pyreae, Rosaceae). Molecular Phylogenetics and Evolution, 63, 230-243. 2012.
- 1991 Eriksson, O., Ehrlén, J. Phenological variation in fruit characteristics in vertebrate-dispersed plants. Oecologia, 86, 463-470. 1991.
- 2014 Sell, P., Murrell, G. Flora of Great Britain and Ireland, vol. 2. Cambridge University Press. 2014.
- International Plant Names Index. Crataegus laevigata (Poir.) DC. Royal Botanic Gardens Kew, Harvard University Herbaria and Australian National Herbarium. Registro 723644-1. ↗
- Plants of the World Online. Crataegus laevigata (Poir.) DC. Royal Botanic Gardens Kew. ↗