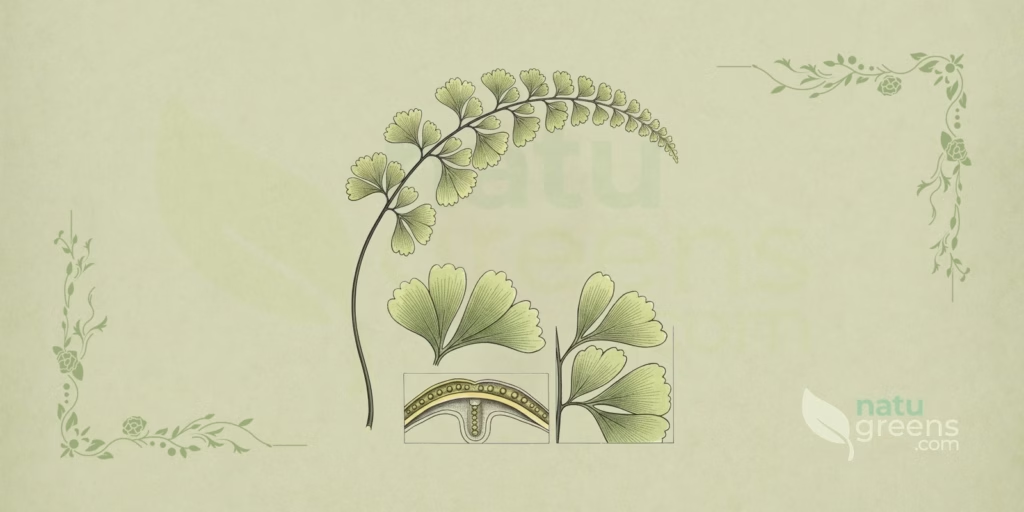
Adiantum capillus-veneris(ホウライシダ)は、イノモトソウ科の根茎性シダで、淡緑色でほとんど半透明の小羽片と、それを支える光沢のある黒い葉柄との対比によって遠目にも識別できる。この特徴からヨーロッパのほぼすべての言語で「ヴィーナスの髪」を意味する名がつけられた。触れるだけで崩れる葉を持ちながら、地中海の風にさらされた石灰岩の岩壁に何千年も定着し続けるという、脆さと生命力を併せ持つ植物である。
本種の分布域はシダ植物の中でも最も広い部類に入る。Plants of the World Onlineはその自生域を単に汎存種(コスモポリタン)と分類しており、南極を除くすべての大陸の温暖な温帯から湿潤な熱帯地域に自然分布することを意味する。この広がりは環境適応の広さによるものではなく、むしろ逆で、常に湿った浸透水に富み直射日光の少ない特定の微小生育地に依存しており、その生育地が地球上のほぼ全域に点在しているためである。
本種の植物学的な意義は園芸の枠を超える。発芽が容易で、実験室条件下では約100日で世代を完結し、光刺激に対して予測可能な反応を示すことから、Adiantum capillus-venerisはシダ植物の発生生物学における古典的なモデル生物となっており、19世紀にさかのぼる研究の蓄積がある。
アロエベラと同様、この種も非常に広い分布域を持つが、ホウライシダの場合は人為的な移動ではなく胞子の風散布によるものである。
Adiantumの分類と学名
本種は1753年、カール・フォン・リンネによって『Species Plantarum』初版で記載された。International Plant Names Indexはこの原記載をSp. Pl. 2: 1096、識別番号325030-2として登録している。Plants of the World Onlineはこの学名を受理名として維持している。
- 界: 植物界(Plantae)
- 門: シダ植物門(Polypodiophyta)
- 綱: Polypodiopsida
- 目: ウラボシ目(Polypodiales)
- 科: イノモトソウ科(Pteridaceae)
- 亜科: Vittarioideae
- 属: Adiantum L.(ホウライシダ属)
- 種: Adiantum capillus-veneris L., 1753
科の扱いは資料によって異なる。IPNIは本種を伝統的に独立していたAdiantaceaeに分類しているが、2016年に発表され現在Kewをはじめ多くのフローラで採用されているPteridophyte Phylogeny Groupの分類体系では、Adiantumはイノモトソウ科(Pteridaceae)のVittarioideae亜科に含まれる。どちらも同じ植物を指しており、現在の見解はPteridaceaeである。
異名
遠く離れた個体群間の形態変異が大きいため、かつて別種として記載された多数の異名が存在する。
- Adiantum capillus-veneris f. dissectum (M.Martens & Galeotti) Ching
- Adiantum capillus-veneris f. rimicola (Sloss.) Fernald
- Adiantum capillus-veneris var. modestum (Underw.) Fernald
- Adiantum capillus-veneris var. protrusum Fernald
- Adiantum capillus-veneris var. trifidum (Willd. ex Bolle) Milde
- Adiantum cuneifolium Stokes
- Adiantum emarginatum Bory ex Willd.
- Adiantum fumarioides Willd.
これらの変種のいずれもKewの現行の扱いでは有効なタクソンとされていないが、古い園芸文献や地域フローラでは今も使われている。
語源
属名はギリシャ語のadiantonに由来し、否定の接頭辞aと「濡らす」を意味する動詞diaineinから成り、文字通り「濡れないもの」を意味する。これは小羽片のクチクラが強い撥水性を持ち、水に沈めた葉が乾いたまま浮かび上がるという観察可能な現象を表している。この語はすでに紀元前4世紀のテオフラストスが用いていた。
種小名capillus-venerisは「ヴィーナスの髪」と訳され、細く黒く光沢のある葉柄が濡れた髪を思わせることに由来する。ハイフンでつなぐ表記は国際藻類・菌類・植物命名規約上の正しい形である。
形態的特徴
根茎を持つ多年生の草本性シダで、基質の傾斜や亀裂の状態に応じて密な株立ちまたは疎らなマット状の群落を形成する。通常の高さは15から45センチメートルで、常に湿潤な熱帯の遮蔽された環境では例外的に60センチメートルに達することもある。生育は緩慢かつ連続的で、熱帯個体群には明確な休眠期がない。
葉
葉は本種を識別するうえで最も重要な器官である。根茎に沿って不規則な間隔で出現し、渦巻状の若葉展開(circinate vernation)を示し、数週間かけて基部から先端へ徐々に開く。
- 全長: 葉柄を含め15から45センチメートル、例外的に60センチメートルまで
- 色: 表側は鮮やかな淡緑色、裏側はやや淡い
- 葉身: 卵状三角形、長さ6から25センチメートル、幅8から16センチメートル、下部は2回羽状、上部は1回羽状
- 葉柄: 5から15センチメートル、黒紫色から暗褐色、円柱形で滑らかで光沢がある
- 小羽片: 扇形、基部はくさび形、12から20×10から15ミリメートル、上縁は丸みを帯び2から4の浅い裂片に分かれる
- 葉軸: 黒く光沢があり、わずかに屈曲し、分岐する
- 質感: 膜質で光にかざすと半透明、撥水性のクチクラを持つ
胞子嚢群(ソーラス)は稔性小羽片の裏側、上縁に沿って1小羽片あたり3から10個つく。真の包膜はなく、小羽片の縁が折り返して形成される偽包膜が保護の役割を果たす。胞子は三条溝型で、直径40から50マイクロメートル、表面にしわがある。
花
本種は花をつけない。シダ植物として、花の出現よりはるか以前に種子植物と分岐した無種子維管束植物の系統に属し、有性生殖はフェノロジーの項で述べる独立した微小な世代、配偶体で行われる。
果実と種子
同様の理由で果実も種子もない。散布単位は胞子であり、耐性のある壁を持つ半数体の細胞が、各胞子嚢内に数千個単位で作られる。胞子嚢の環帯は乾燥に伴って収縮し、蒴を破裂させて胞子を数センチメートル飛ばし、その後は気流が輸送を担う。
根茎と根
根茎は短く匍匐して分岐し、太さ数ミリメートルで、長さ2から4ミリメートルの披針形の褐色鱗片に覆われる。根は不定根で束生し、細く暗色、長さ5から15センチメートルで、岩の割れ目、コケ、有機物にしっかり付着する。
分布と生育地
Plants of the World Onlineは本種の自生域を汎存種と記載しており、これはシダ植物の中では珍しい状況である。分布は地中海沿岸全域、マカロネシア、北アフリカと東アフリカ、中東、インド亜大陸、日本を含む東アジア、東南アジア、オーストラリア、ニュージーランド、アメリカ合衆国南部、メキシコ、中央アメリカ、カリブ海、南アメリカの大部分に及ぶ。大西洋岸のヨーロッパでは、イングランド南部、ウェールズ、アイルランドの保護された場所にまで達し、耐寒性の限界に位置する。
広い地理的分布にもかかわらず、生育地は驚くほど均一である。石灰岩や泥灰岩を中心に、常時水が滴る岩、洞窟の入り口、滝の壁、湧水のふち、井戸、水道橋、浸透水のある古い壁などに生育する。求められる条件は、常時高い大気湿度、拡散した弱い光、しっかりした弱アルカリ性の基質、そして根が水浸しにならないことである。この石灰岩への依存性が地域スケールでの分布を制限する主要因である。
標高分布は海抜0メートルからヨーロッパでは約1500メートルまで、熱帯アジアでは2800メートルに達する記録もある。本種は霜に弱い。連続分布域から遠く北に離れたサウスダコタ州とブリティッシュコロンビア州の2つの孤立個体群は、基質を温める温泉のおかげで生存している。
ブラジルでは、最近のブラジル産イノモトソウ科の分布調査が本種を自生種の分析から除外し、導入種または栽培種として扱っている。国内の記録は観賞栽培からの野生化を反映したものであり、自生を意味しない。
栽培
ホウライシダは家庭栽培では難しいという評判があり、その理由はほぼ常に大気の相対湿度に尽きる。乾燥への対処として基質への灌水量を増やすのは典型的な誤りで、乾燥による枯死を根茎の腐敗による枯死に置き換えるだけである。
基本的な条件は以下の通りである。
- 光: 半日陰から日陰、拡散光。直射日光は数時間で小羽片を焼く
- pH: 中性からアルカリ性、6.5から8.0。多くの栽培シダが酸性土壌を好むのに対し本種を特徴づける
- 用土: 多孔質で排水性が良く、有機物に富み、ドロマイト石灰や石灰岩砕石などを添加する
- 温度: 16から25℃が適温域で、霜を避け、12℃を下回る状態が長く続かないようにする
- 大気湿度: 60から80パーセントが最も重要な要素。エアコンやセントラルヒーティングのある環境は本種に不向きである
- 通風: カビの発生を抑える程度の穏やかな空気循環、葉を乾燥させる直接の風は避ける
株分けによる繁殖が一般的で最も速い方法である。早春に成株を分割し、各断片に根と数枚の葉を持つ根茎片を残して湿った用土に直ちに植え付け、新苗は数週間ほど日陰で管理する。
胞子による繁殖はより時間がかかるが、最も多くの株を得られ、唯一遺伝的多様性を生む方法でもある。偽包膜が暗褐色になった稔性葉を採取し、乾いた環境で1から2日間平滑な紙の上に置いて胞子を放出させ、滅菌した湿った用土に播種して密閉透明容器に入れる。良好な条件では数日で発芽し、心臓形の前葉体は数週間で目に見えるようになり、移植可能な最初の胞子体になるまで数か月から1年以上かかる。
繰り返し発生する病害虫には、葉柄基部や根茎に付くカイガラムシ、散水によって広がるAphelenchoides属の葉線虫、屋外栽培でのナメクジやカタツムリがある。病害では、多湿で通気の悪い環境で灰色かび病菌(Botrytis cinerea)が進行し、Rhizoctonia属やPythium属が過湿な用土で根茎や実生を侵す。小羽片の先端が褐変する場合は乾燥した空気や残留塩素の多い水を、全体的な黄化と縁の焼けは光の過多を示す。
農業的な収穫の対象ではない。地中海沿岸やアジアの一部地域では、観賞用取引や伝統市場向けに野生個体群から葉を採取する慣行があり、これが地域個体群に圧力をかけている。
フェノロジー
シダのフェノロジーは開花暦ではなく世代交代を軸に組み立てられる。目に見える世代である胞子体は、主に晩春から夏にかけて成熟する稔性葉に胞子嚢を形成する。北半球では6月から8月、南半球の個体群では11月から3月に相当する。明確な乾季のない湿潤熱帯気候では、胞子生産がほぼ通年続くこともある。
花がないため送粉者は存在しない。散布は風散布(アネモコリー)で、胞子嚢の環帯が乾燥によって胞子を放出し、その後は気流が輸送を担う。胞子が高層大気に達すれば大陸間規模の距離まで運ばれることもあり、これが本種の汎存的な分布と、隔離された個体群間の形態的差異の小ささを最もよく説明する。
湿って光の当たる基質に達した胞子は数日で発芽し、独立生活を送る緑色で扁平な配偶体となり、数週間で特徴的なハート形に発達し、多数の仮根で基質に固着する。配偶体は雌雄同株で、仮根の間の腹面に造精器を、頂端の切れ込み付近に造卵器をつくる。受精には液体の水が必須であり、鞭毛を持つ精子が前葉体を覆う水の膜を泳いで造卵器に達する。そのため雨や絶え間ない滴りが有性生殖の必須条件となり、これが本種が常時水の滴る岩に強く依存する理由の一因である。接合子から新しい胞子体が発生し、実験室の管理条件下では全サイクルが約100日で完結するが、野外ではそれよりかなり長くかかる。
近縁種と混同されやすい種
Adiantum属は主に熱帯・亜熱帯に分布する約200種を含み、その多くが同じ流通名で観賞用取引に出回っている。
- Adiantum aethiopicum L.: アフリカ・オーストラレーシア産で、小羽片が小さく葉がより直立し、長く匍匐する根茎が開いた群落を形成する
- Adiantum caudatum L.: 単羽状で長く弓なりの葉が先端で発根し無性芽をつくる点でA. capillus-venerisと異なる
- Adiantum pedatum L.: 葉柄の先端から扇状に広がる掌状の葉身を持ち、他に類を見ない構造を持つ
- Adiantum raddianum C.Presl: より小さく数の多い密集した小羽片、より緊密な葉、酸性土壌への耐性を持ち、A. capillus-venerisの石灰岩嗜好とは対照的である
- Adiantum reniforme L.: 分裂のない単一の腎形葉身を持ち、マカロネシアと少数のアジアの産地に限られる
属外では2つの混同に注意が必要である。Asplenium trichomanesは黒い葉柄と岩生の生態を共有するが、葉身は単羽状で、長楕円形の小羽片が分岐しない葉軸に規則正しく対生し、魚の骨のような配置を示す点で、分岐した葉軸と扇形の小羽片を持つホウライシダとは明確に異なる。鉢植えでも栽培されるDavallia属は、容器の縁に露出した太い毛深い鱗片に覆われた気根状の根茎を持ち、これはAdiantumには決して見られない特徴である。本種と混同されうる有毒な近似種は知られていない。
植物化学
Adiantum capillus-venerisの化学組成はよく調べられている。以下の記述は純粋に成分に関するものであり、生物への何らかの作用を示唆するものではない。
トリテルペノイドは最も特徴的な化合物群である。アディアントンは本属に広く見られる化合物で、A. capillus-venerisの葉からはイソアディアントン、イソアディアントールB、フィリセン、3,4-ジヒドロキシフィリカンなどのフィリカン誘導体も単離されている。フィリセンは主にクチクラワックス層に集中しており、これが撥水性に関与している。
フラボノイドとしては、酢酸エチル画分からケルセチン、ケルセチン-3-O-グリコシド(イソケルセチトリン)、ケルセチン-3-O-ルチノシド(ルチン)が得られる。ケンフェロールとその配糖体アストラガリンも葉から検出されており、没食子酸などのフェノール酸、カフェ酸誘導体、縮合タンニンであるプロアントシアニジンも含まれる。
より広範なプロファイル分析では、トリアシルグリセロール、リン脂質、カロテノイド、クロロフィル、フィトステロール、揮発性有機化合物も報告されており、若い葉組織で濃度が高い。汚染された基質で生育した場合、本種は重金属を蓄積するが、これは採取地の環境を反映したものであり、植物本来の成分ではない。
歴史と民族植物学
これほど長い文献記録を持つシダは少ない。ディオスコリデスは1世紀に『薬物誌(De Materia Medica)』の中でギリシャ語名adiantonとしてこの植物を記述し、以後プリニウス、中世の本草書、ルネサンス期の薬局方に至るまで、ヨーロッパの薬草学の伝統全体を通じて登場する。
16世紀から19世紀のヨーロッパ薬局では、ホウライシダはフランス語の文献で「五つのカピレール」と呼ばれた一群に属し、Asplenium trichomanes、Asplenium ceterach、Asplenium scolopendrium、Polypodium vulgareとともに用いられた。ここから生まれたシロップ・カピレールは、フランスとイギリスの薬局カタログに3世紀にわたって掲載された商業製品だが、19世紀にはすでに植物由来成分を含まないオレンジフラワー風味のシロップとして売られることが多かった。
ヨーロッパ以外でも民族誌的な記録は幅広い。中国の伝統医学では鉄線蕨(tie xian jue)と呼ばれ、黒い葉柄にちなむ名である。インドではhansrajと呼ばれ、アーユルヴェーダの薬草目録に含まれていた。北米南西部のナバホの人々は虫刺されに煎じ薬を用いたと20世紀の民族植物学の記録にあり、イランの伝統医学では黄疸に関連づけられていた。
ブラジルにはポルトガルの観賞用園芸を通じて伝わり、家の霊的な守り手としての象徴的な役割を担うようになった。以上はすべて文化史であり、現在の慣行を記述するものでも、いかなる効能を裏付けるものでもない。
保全状況
Adiantum capillus-venerisはIUCNレッドリストで軽度懸念(LC)と評価されており、これは汎存的な分布と検出可能な世界的減少が見られないことと一致する。本種はCITESのいずれの附属書にも掲載されていない。
しかし、この落ち着いた世界的評価は、顕著な地域的脆弱性と共存している。個体群は微小で孤立した生育地の斑点を占め、それぞれが単一の湧水や露頭に依存しているため、一度の局所的な介入が世界的な状況には検出されないまま、ある個体群全体を消滅させうる。文書化された主な脅威は、湧水の取水や水路化、湿地の排水、インフラ工事による岩壁の破壊や被覆、浸透水の汚染、そして野生個体群からの葉の採取である。
いくつかのヨーロッパ諸国は、特に分布の北限で本種を地域的な保護対象または注意種のリストに含めている。ブラジルでは自生種と見なされていないため、特別な保護指定は与えられていない。
豆知識
- 属名は詩的な比喩ではなく検証可能な物理的性質の記述である。水に沈めた葉は完全に乾いた状態で浮かび上がる。これはクチクラワックスが水の膜を組織に付着させないためで、テオフラストスは23世紀以上前にこの観察を記録している。
- 本来の気候分布域から遠く離れたサウスダコタ州とブリティッシュコロンビア州の個体群は、冬の間も基質を温め大気を飽和させる温泉の周囲でのみ生存している。
- 本種は植物発生生物学における歴史的なモデル生物である。発芽が速く、大きく透明な細胞からなる配偶体を形成し、特定の波長の光に予測可能に反応することから、シダの光形態形成研究の標準材料となった。
- シロップ・カピレールは、名前の由来となった原料より長く生き延びた。19世紀以降、フランスやイギリスでこの名称で販売された製品の多くは、植物成分を含まないオレンジの花の香りのシロップだった。
- 華奢な姿にもかかわらず、岩壁に定着した群落は、供給源の湧水が流れ続ける限り、根茎の分岐によってゆっくり拡大しながら、同じ場所で数十年から数世紀にわたって存続しうる。
ご注意:本コンテンツは情報提供を目的としており、医療専門家の助言に代わるものではありません。薬用植物を使用する前に、特に妊娠中、授乳中、または薬を服用中の場合は、医師または専門家にご相談ください。
参考文献と科学的研究
査読済み科学研究 (4)
- DOI2016 PPG I. A community-derived classification for extant lycophytes and ferns. Journal of Systematics and Evolution, 54(6), 563-603. 2016. ↗
- DOI2004 Pryer, K. M. et al. Phylogeny and evolution of ferns (monilophytes). American Journal of Botany, 91(10), 1582-1598. 2004. ↗
- DOI1999 Banks, J. A. Gametophyte development in ferns. Annual Review of Plant Physiology and Plant Molecular Biology, 50, 163-186. 1999. ↗
- DOI2001 Reddy, V. L. N. et al. A new triterpenoid from the fern Adiantum capillus-veneris. Chemical and Pharmaceutical Bulletin, 49(10), 1348-1351. 2001. ↗