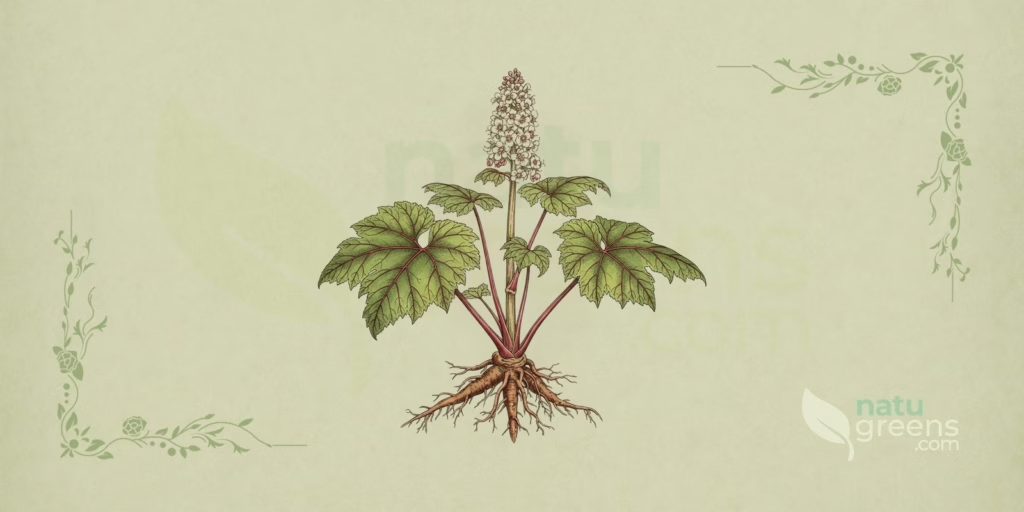
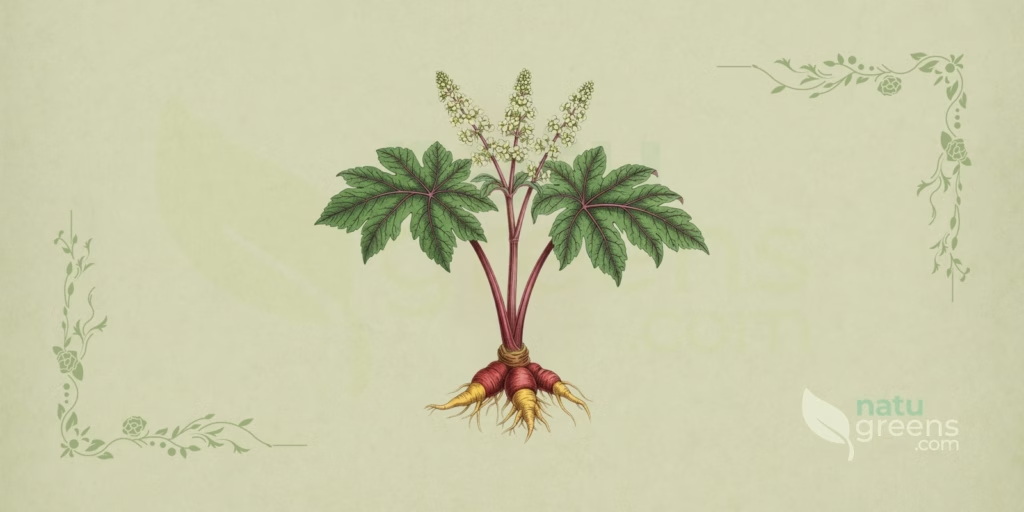
Rheum palmatum er en av de mest imponerende stauder fra fjellene i det kinesiske innlandet, i stand til å reise en blomsterstengel på opptil to meter over en rosett av blader som blir over en halv meter brede. Arten tilhører familien Polygonaceae, samme familie som syre og bokhvete, og okkuperer steinete skråninger og dalbunner mellom 1500 og 4400 meter, i buen som strekker seg fra Indre Mongolia til det østlige Tibet. Artsepitetet palmatum beskriver presist det som slår en i øynene i felt: bladplaten er delt i dype lapper, åpnet som fingrene på en hånd.
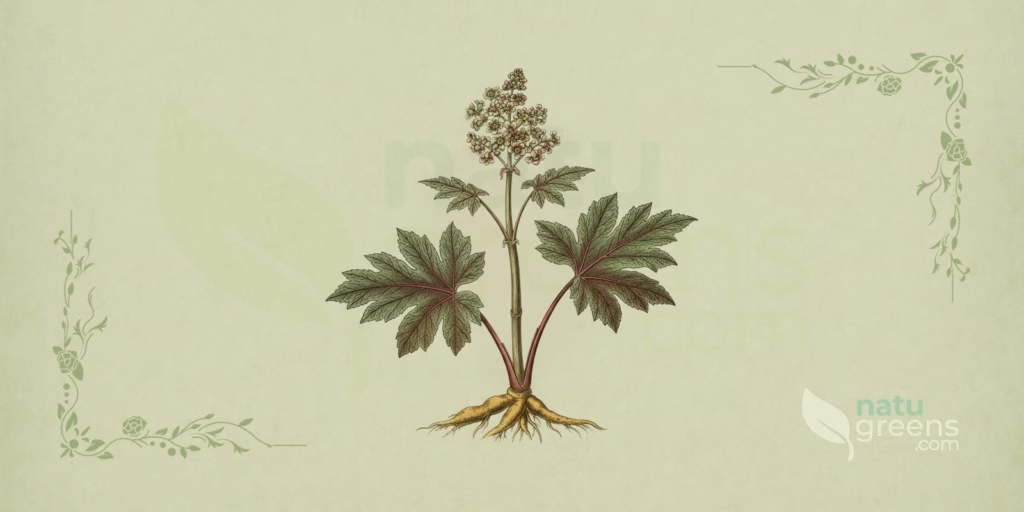
Under bakken bygger planten en tykk jordstengel og en robust hovedrot, hvis indre vev har en karakteristisk gul farge. Dette anatomiske detaljet ga planten det kinesiske navnet da huang (大黃), bokstavelig «stor gul», et navn som den tørkede roten sirkulerte under i århundrer på handelsrutene som forbandt Sentral-Asia med Middelhavsområdet og senere med Nord-Europa.
Denne siden samler artens botaniske profil: formell taksonomi bekreftet i nomenklaturindeksene, detaljert morfologi, utbredelse, habitat, dyrking, fenologi, relasjoner til de nærstående artene i palmatum-komplekset, beskrivende kjemisk sammensetning, historisk registrering og bevaringsstatus.
Taksonomi for Rheum
Navnet Rheum palmatum L. ble publisert av Carl von Linné i 1759, i den tiende utgaven av Systema Naturae (bind 2, side 1010), og forblir akseptert i de gjeldende nomenklaturindeksene. Familien Polygonaceae omfatter omtrent femti slekter med overveiende temperert utbredelse på den nordlige halvkule, og slekten Rheum teller omtrent seksti arter i Asias fjellkjeder og høysletter.
- Rike: Plantae
- Rekke: Magnoliophyta (dekkfrøplanter)
- Klasse: Magnoliopsida (tofrøbladete)
- Orden: Caryophyllales
- Familie: Polygonaceae Juss.
- Underfamilie: Polygonoideae
- Tribus: Rheeae
- Slekt: Rheum L.
- Art: Rheum palmatum L., 1759
Aksepterte synonymer
Tre navn regnes i dag som heterotypiske eller homotypiske synonymer av arten:
- Rhabarbarum palmatum (L.) Moench
- Rheum potaninii Losinsk.
- Rheum qinlingense Y. K. Yang, D. K. Zhang & J. K. Wu
Det er verdt å merke seg at Rheum tanguticum og Rheum officinale, ofte samlet under R. palmatum i eldre litteratur, forblir akseptert som selvstendige arter, selv om grensen mellom dem fortsatt er gjenstand for løpende debatt blant taksonomer.
Slektsnavnet stammer fra det greske rheon, en form knyttet til det gamle handelsnavnet for den tørkede roten, rha. Enkelte forfattere kobler begrepet til Rha, den klassiske betegnelsen for Volga-elven, en av rutene varen nådde de vestlige havnene gjennom. Epitetet kommer fra det latinske palmatus, «håndformet», en direkte referanse til formen på bladet ved basis.
Morfologisk beskrivelse
Dette er en flerårig staude av stor størrelse, med en bred basal tue og en oppreist blomsterstengel som når 1,5 til 2 meter, av og til mer i velnært dyrking. Stengelen er hul, furet på langs, glatt eller nesten glatt, med små ruheter konsentrert ved nodene. Hele den overjordiske delen visner ved sesongens slutt og skyter igjen fra den underjordiske strukturen neste vår.
Blader
De basale bladene hører til de største i slekten og definerer plantens utseende. Bladplaten måler omtrent 40 til 60 centimeter, har en bredde som er omtrent lik lengden, og har fem hovednerver som går ut fra den hjerteformede basisen. Delingen er håndformet, med lapper som når et fjærsnittmønster, og spissen på hver lapp er tilspisset eller smalt spiss. Undersiden er tett håret, mens oversiden varierer fra furet til papilløs å ta på. Bladstilken er sylindrisk, dekket av tette papiller og nesten like lang som selve bladplaten. Stengelbladene gjentar mønsteret i redusert skala jo høyere opp på stengelen de sitter, og ochreaen, den hinneaktige slira som omgir noden rett over bladstilkens feste, når 15 centimeter og har en ru ytre overflate. Denne ochreaen er det mest pålitelige familiekjennetegnet i felt.
Blomster
Blomsterstanden er en bred, endestilt topp med sammenhellende, tett hårete grener, som stikker seg ut på avstand når blomstringen omfatter hele bestanden. Hver blomst er ganske liten og sitter på en blomsterstilk på 2 til 2,5 millimeter, leddet under midten. Blomsterdekket har seks blader i rødlilla farge, sjeldent hvitgul, hvor de tre ytterste er elliptiske til rundaktige og mindre, med 1 til 1,5 millimeter. Støvbærerne rager ikke ut over blomsterdekket. Fruktknuten er rombisk-eggformet, griffelen bøyer seg lett utover, og arret er utvidet.
Frukter og frø
Frukten er en trekantet nøttefrukt utstyrt med tre hinneaktige vinger, med et langstrakt-elliptisk til langstrakt omriss, omtrent 8 til 9 millimeter lang og 7 til 7,5 millimeter bred, med begge ender lett innskåret. Vingene er omtrent 2,5 millimeter brede og viser langsgående nerver nær kanten, et detalj som er nyttig for å skille beslektede arter fra hverandre. Frøet er bredt eggformet med et mørkebrunt til nesten svart frøskall.
Jordstengel og rot
Det underjordiske systemet kombinerer en kort, tykk jordstengel med like tykke hovedrøtter, som hos flere år gamle planter danner en massiv enhet. Overflaten er lys brun til mørkebrun, og det indre vevet viser en gul til oransje nyanse, gjennomskåret av et marmorert mønster som klassisk farmakognosi noterte som stjerneformede striper. Denne indre fargen er konstant nok til å tjene som diagnostisk kjennetegn i tørket materiale.
Utbredelse og habitat
Den naturlige utbredelsen dekker det vestlige og nordvestlige Kina, med dokumenterte funn i Gansu, Hubei, Indre Mongolia, Qinghai, Shaanxi, Sichuan, Xizang og Yunnan. Diversitetssenteret for arten og dens nærmeste slektninger ligger på den østlige tibetanske høyplatået og i de omkringliggende fjellkjedene. Bestandene okkuperer åpne skråninger, daler, høyalpine enger og bryn av nåleskoger, i et bredt høydeintervall fra 1500 til 4400 meter.
Klimaregimet er kontinentalt og kaldt, med strenge vintre, korte somre og stor daglig temperatursvingning. De foretrukne jordsmonnene er dype, rike på organisk materiale og godt drenerte, en avgjørende betingelse fordi jordstengelen lett råtner i vannmettet terreng. Utenfor det naturlige utbredelsesområdet ble arten brakt til Russland og Vest-Europa som avling og som hageplante.
I Storbritannia, hvor den har vært i dyrking siden 1763, opptrer planten som neofytt, med første registrering utenfor dyrking i 1954, i Bolton, i det sørlige Lancashire. Den overlever på forlatte beitemarker, bekkebredder, grøfter, veikanter og ubebygde arealer, nesten alltid som en rest av utplanting, uten dokumentert aggressiv invasiv atferd.
Dyrking
Formeringen skjer via frø eller ved deling av jordstengelen. Såing krever kald stratifikasjon forut for spiring, som forløper uregelmessig over noen uker, og planter av frøopprinnelse tar år på å danne en voksen tue. Deling av jordstengelen sent på høsten, med minst to knopper per fragment, er den foretrukne veien for dem som ønsker ensartethet mellom individer.
Arten krever dyp, fruktbar og godt drenert jord, med lett sur til nøytral reaksjon, og responderer godt på tilførsel av organisk kompost ved planting. Den ønsker full sol i kaldt klima og aksepterer halvskygge der somrene er varme. Det kritiske punktet i dyrkingen er drenering: langvarig vannmetning fører til jordstengelråte, og vedvarende subtropisk varme forhindrer rett og slett etableringen. Rikelig plantavstand er obligatorisk, siden en voksen plante lett okkuperer en kvadratmeter bladprojeksjon.
Blant de vanligste plantehelseproblemene opptrer bladlus, som fungerer som vektorer for mosaikkvirus, snutebiller hvis larver borer gjennom jordstengelen, og snegler og sneglehus, som vansirer unge blader i fuktig vår. På sykdomssiden konsentrerer jordstengelråte forbundet med Phytophthora og bakterielle bløtråter tapene på dårlig drenert jord. I kulturer rettet mot høsting av den underjordiske delen skjæres blomsterstengelen vanligvis av så snart den kommer til syne, og røttene høstes om høsten, fra det fjerde året i marken.
Fenologi
I det naturlige utbredelsesområdet konsentreres blomstringen i juni og fruktsettingen i august, en kalender som forskyves noen uker avhengig av høyde og skråningens eksponering. I europeisk dyrking blomstrer godt etablerte planter mellom slutten av våren og begynnelsen av sommeren, og ikke hver tue danner en blomsterstengel hvert år.
Blomsterarkitekturen, med reduserte blomsterdekkblader, korte støvbærere og en enorm mengde blomster per topp, er forenlig både med besøk av små, generalistiske insekter og med pollentransport via vinden, en kombinasjon som er hyppig hos Polygonaceae. Fruktspredningen er overveiende anemokor, understøttet av de tre hinneaktige vingene som fungerer som motstandsflate. På skrånende terreng blir en stor del av nøttefruktene forskjøvet av tyngdekraften og avrenningsvannet, noe som bidrar til å forklare bestandenes klyngevise fordeling langs daler.
Beslektede arter og forveksling
Rheum palmatum inngår i seksjonen Palmata i slekten, sammen med R. laciniatum, R. officinale og R. tanguticum, inkludert varieteten liupanshanense av sistnevnte. En morfometrisk undersøkelse av Wang og medforfattere, publisert i 2014, viste at graden av bladinnsnitt varierer kontinuerlig mellom lappet og delt, og at lappens form går uten diskontinuitet fra bredt trekantet til lansettformet, både innenfor og mellom bestander. Forfatterne foreslo til og med å synonymisere de øvrige artene i seksjonen under R. palmatum, et forslag som ennå ikke er innarbeidet i de gjeldende nomenklaturindeksene.
- Rheum australe D. Don: art fra Himalaya, med blader av helt til bare bølget omriss, uten den karakteristiske håndformede delingen.
- Rheum × hybridum Murray: hagehybrid med bred og hel bladplate, dyrket i Europa for bladstilkens skyld.
- Rheum officinale Baill.: bladplate bare overflatisk lappet, mer kompakt topp og grønnaktige blomster, mot de dype lappene og de purpurfargede blomstene hos R. palmatum.
- Rheum rhabarbarum L.: hagerabarbraen, med helt og hjerteformet blad med bølget kant og saftige, rødlige bladstilker, uten noen håndformet deling.
- Rheum tanguticum (Maxim. ex Regel) Balf.: den hyppigste forvekslingen i felt, som skiller seg ved smalere og dypere innskårne lapper og en utbredelse konsentrert på det tibetanske platået.
Utenfor slekten skaper planter med stort basalt blad ofte tvil i vegetativ fase, som borre (Arctium lappa), med filtaktig underside uten lapper, og Petasites hybridus, med rundaktig bladplate og bare tannet kant. Ingen av de to har den hinneaktige ochreaen rundt noden, og dette ene kjennetegnet avgjør identifikasjonen på få sekunder.
Fytokjemi
Artens kjemiske profil hører til de best undersøkte i den kinesiske floraen. Rot og jordstengel akkumulerer antrakinoner, til stede både i fri form og bundet til sukkerarter, med vekt på aloe-emodin, krysofanol, emodin, physcion og rein. Ved siden av dem forekommer diantroniske glykosider av sennosidtypen, tanniner av gallisk og katekinsk natur, fenolsyrer som gallussyre, og glykosylerte stilbener, en gruppe som omfatter derivater av rapontigenin og resveratrol. Det er disse antrakinonene, konsentrert i parenkymet i barken og den sentrale sylinderen, som er ansvarlige for den gule fargen i det indre vevet.
Fordelingen av forbindelsene i planten er ujevn og endrer seg med individets alder og med årstiden. Blader og bladstilker følger en annen rute: de konsentrerer oksalater, til stede som fri oksalsyre og som kalsiumoksalatkrystaller.
Her kommer et sikkerhetsfaktum som ikke avhenger av bruksammenheng. Bladene til Rheum palmatum inneholder, i likhet med de øvrige rabarbraene, løselige oksalater i høy konsentrasjon og er ikke spiselige. Inntak forårsaker irritasjon av mage-tarmkanalen og, i tilstrekkelig mengde, fall i sirkulerende kalsium og nyreskade. Det samme gjelder for kjæledyr: hunder, katter, hester og andre beitende planteetere er mottakelige for oksalatforgiftning når de har tilgang til bladmassen, derfor krever bed med slekten forsiktighet på eiendommer med dyrehold.
Historie og etnobotanikk
Den tørkede roten fra asiatisk rabarbra var en av de dyreste vegetabilske handelsvarene i langdistansehandelen mellom Asia og Europa. Greske og romerske forfattere registrerte allerede produktet under navnet rha, ankommet ad ruter som krysset Sentral-Asia, og Marco Polo noterte i det trettende århundret eksistensen av rikelig rabarbra i regionen Tangut, i det nåværende nordvestlige Kina. I kinesiske kilder opptrer materialet under navnet da huang siden de gamle farmakobotaniske kompendiene, og europeiske apotekere fra det sekstende til det attende århundret handlet med den importerte roten i sine verksteder.
Handelen fremkalte i det attende århundret en av de mest bemerkelsesverdige episodene i de nyttige plantenes historie: Det russiske riket etablerte statsmonopol på eksporten av asiatisk rabarbra, med en inspeksjonspost i Kjakhta, ved grensen til Kina, og destruksjon av de forkastede partiene. Historikeren Clifford Foust rekonstruerte dette handelskretsløpet i en studie viet varen, publisert i 1992.
På botanisk side ble arten beskrevet av Linné i 1759 basert på materiale som sirkulerte i Europa ad de samme rutene, og kom i dyrking i Storbritannia fra 1763. De ville bestandene ble imidlertid først godt dokumentert mer enn et århundre senere, med de russiske ekspedisjonene ledet av Nikolaj Przjevalskij og Grigorij Potanin til det tibetanske platået og de omkringliggende fjellkjedene, mot slutten av det nittende århundret. Det var dette feltarbeidet som gjorde det mulig å skille slektens asiatiske arter på grunnlag av levende planter, og ikke bare ut fra fragmenter av tørket rot som nådde markedet.
Bevaring
Arten har ingen publisert global vurdering på IUCNs rødliste, registrert som ikke vurdert, og opptrer ikke i CITES-listene. Den fremgår heller ikke av listen over ville planter under nasjonal beskyttelse utarbeidet for Qinghai-Tibet-platået, selv om den kinesiske litteraturen behandler de ville bestandene av palmatum-komplekset som en ressurs under press.
Arbeidet til Wang og medforfattere, publisert i 2012 i PLoS ONE basert på ISSR-markører, tok prøver fra tjueén ville bestander fordelt fra Shanxi til det sentrale Tibet og fant et informativt mønster: høy genetisk mangfold innenfor arten som helhet og lav innenfor hver enkelt bestand. Forfatterne konkluderte med at den observerte nedgangen hovedsakelig skyldes overdreven høsting av vilt materiale og ikke genetisk utarming, og anbefalte in situ-bevaring av de gjenværende bestandene sammen med utvidelse av den kommersielle dyrkingen som en måte å lette presset på den naturlige bestanden.
Omdirigeringen av etterspørselen til etablerte plantinger er i dag den viktigste forvaltningslinjen i de produserende provinsene, med offisielle programmer for god landbrukspraksis som nettopp sikter mot å erstatte ekstraktivisme med styrt dyrking.
Kuriositeter
- Det kinesiske navnet da huang betyr «stor gul» og beskriver rotens indre vev, hvis farge stammer fra antrakinonene som samles opp i parenkymet.
- Det basale bladet til Rheum palmatum hører til de største hos enhver staude i tempererte klima dyrket i hager, og kultivarer med rødlig ungt løv, som ‘Atrosanguineum’, plantes utelukkende for den dekorative effekten.
- I samme familie eksisterer to ytterpunkter side om side: bladstilken til hagerabarbraen er en vanlig ingrediens i søtsaker og paier i Europa, mens bladet til enhver art i slekten er giftig på grunn av oksalatinnholdet.
- Det russiske riket opprettholdt i det attende århundret et statsmonopol på eksporten av den tørkede roten, med en inspeksjonspost ved den kinesiske grensen og destruksjon av de forkastede partiene.
- Brakt til Storbritannia i 1763, ble planten først registrert som voksende utenfor dyrking i 1954, nesten to århundrer etter introduksjonen.
Les også vår fullstendige botaniske profil av Prunella vulgaris for mer om andre hardføre stauder fra tempererte klima.
Merk: dette innholdet er informativt og erstatter ikke profesjonell helserådgivning. Rådfør deg med lege eller fytoterapeut før du bruker medisinplanter, spesielt under graviditet, amming eller ved bruk av legemidler.
Referanser og vitenskapelige studier
Se Alle 9 Siterte Kilder
Fagfellevurderte Vitenskapelige Studier (2)
- DOI2012 Wang, X. M. m.fl. Genetic variation in Rheum palmatum and Rheum tanguticum (Polygonaceae), two medicinally and endemic species in China using ISSR markers. PLoS ONE, 7(12): e51667. 2012. ↗
- DOI2014 Wang, X. M. m.fl. Morphological variation in leaf dissection of Rheum palmatum complex (Polygonaceae). PLoS ONE, 9(10): e110760. 2014. ↗
Supplerende Lesning (7)
- American Society for the Prevention of Cruelty to Animals. Rhubarb (Rheum rhaponticum). Toxic and Non-Toxic Plants Database. ↗
- Botanical Society of Britain and Ireland. Rheum palmatum L. BSBI Online Plant Atlas. ↗
- 2003 Flora of China Editorial Committee. Rheum palmatum Linnaeus. Flora of China, bind 5, s. 345. Science Press og Missouri Botanical Garden Press. 2003. ↗
- 1992 Foust, C. M. Rhubarb: The Wondrous Drug. Princeton University Press. 1992.
- International Plant Names Index. Rheum palmatum L., Syst. Nat. ed. 10, 2: 1010. 1759. Royal Botanic Gardens Kew, Harvard University Herbaria og Australian National Botanic Gardens. ↗
- Linnaeus, C. Systema Naturae, utg. 10, bind 2, s. 1010. Stockholm. 1759.
- Plants of the World Online. Rheum palmatum L. Royal Botanic Gardens, Kew. ↗