Aralia racemosa er en kraftig flerårig urteaktig plante som bebor skogbunnen i løvskogene i det østlige Nord-Amerika. Den tilhører Araliaceae, samme familie som asiatisk ginseng og eføy, og skiller seg ut blant nordamerikanske villurter ved en uvanlig kombinasjon av trekk: sammensatte blader som blir over en halv meter lange, vidt forgrenede topper av mikroskopiske blomster og en tykk, aromatisk underjordisk jordstengel som kan bestå i tiår på samme sted i skogen.
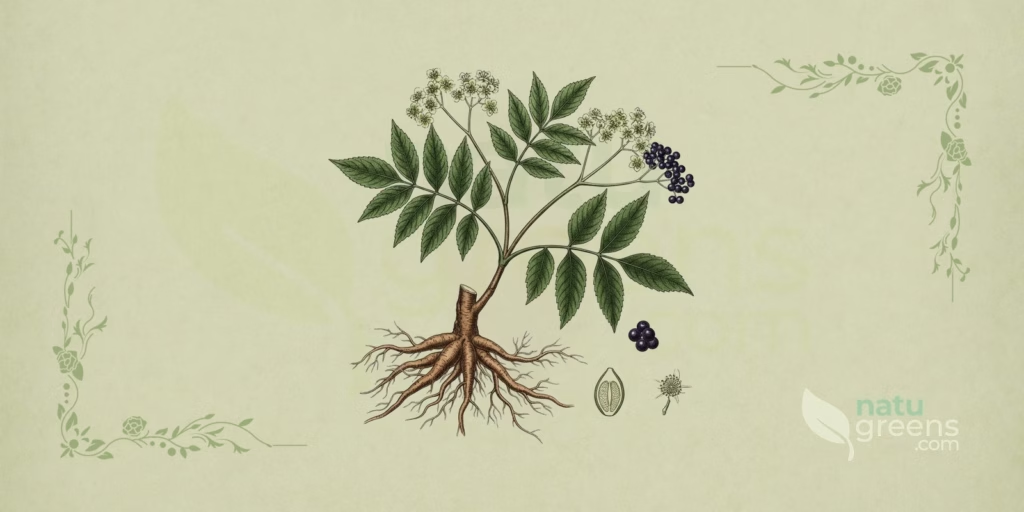
Det generelle utseendet motsier plantens urteaktige natur. Hver vår bryter rødlige skudd gjennom jorden, og i løpet av få uker reiser de en nesten buskaktig struktur som den første kraftige frosten feller i sin helhet. Denne årlige syklusen av oppbygging og kollaps, finansiert av reserver lagret i jordstengelen året før, bidrar til å forklare hvorfor arten trives nettopp der lyset er knapt og konkurransen om luftrommet er intens.
Denne profilen samler det botanisk litteratur dokumenterer om arten: aktuell taksonomisk avgrensning, feltkjennetegn for identifikasjon, geografisk utbredelse, dyrkingskrav, fenologi, kjemiske stoffklasser beskrevet for taksonet og slekten, samt den historiske dokumentasjonen av artens tilstedeværelse i nordamerikansk etnobotanikk.
Taksonomi for Aralia racemosa
Arten ble beskrevet av Carl von Linné i Species Plantarum, bind 1, side 273, utgitt i 1753, og forblir akseptert under det opprinnelige binomenet både i International Plant Names Index og i Plants of the World Online, forvaltet av Royal Botanic Gardens, Kew. Plasseringen i slekten har aldri for alvor blitt bestridt, bemerkelsesverdig for et takson navngitt i de første årene av den binomiale nomenklaturen.
- Rike: Plantae
- Klade: Angiospermer, eudikotyledoner, asterider
- Orden: Apiales
- Familie: Araliaceae Juss.
- Underfamilie: Aralioideae
- Slekt: Aralia L.
- Art: Aralia racemosa L., Sp. Pl. 1: 273 (1753)
Synonymer og infraspesifikke taksa
Den aksepterte synonymien er kort og begrenser seg til regionale varietetsnavn:
- Aralia racemosa f. foliosa (Vict. & J.Rousseau) Scoggan
- Aralia racemosa var. foliosa Vict. & J.Rousseau
To andre infraspesifikke navn krever forsiktighet fordi de behandles ulikt avhengig av kilden. Aralia racemosa subsp. bicrenata (Wooton & Standl.) S.L.Welsh & N.D.Atwood, fra fjellene i det sørvestlige USA, anerkjennes som underart av Plants of the World Online, mens regionale florabehandlinger foretrekker å heve den til full art, Aralia bicrenata Wooton & Standl. Aralia racemosa var. occidentalis Torr., publisert i 1874, fremstår i dag i de fleste nomenklaturdatabaser som et navn med usikker anvendelse. Den som arbeider med herbariemateriale fra det vestlige Nord-Amerika, bør sjekke hvilken avgrensning kilden bruker før spredningsdata sammenlignes.
Etymologi av binomenet
Opprinnelsen til slektsnavnet forblir uklar. Den hyppigst gjentatte hypotesen i litteraturen avleder Aralia fra det fransk-kanadiske folkelige ordet «aralie», en term som skal ha nådd Joseph Pitton de Tournefort via legen og naturforskeren Michel Sarrazin, bosatt i Ny-Frankrike tidlig på 1700-tallet. Ingen overbevisende gresk eller latinsk etymologi er foreslått siden. Artsepitetet racemosa kommer fra det latinske racemus, klase, og viser til det hengende og avlange utseendet til blomster- og fruktstandene, selv om blomsterstanden strengt tatt er en topp av skjermer og ikke en ekte klase.
Morfologisk beskrivelse
Det dreier seg om en kraftig urteaktig flerårig plante uten ekte ved i den overjordiske delen, som danner brede, avrundede tuer. Årets stengler når 1 til 2 meter i høyden og en tilsvarende krondiameter, noe som gir planten et uvanlig volum for en skogbunnsurt. Den overjordiske delen er glatt eller nesten glatt, grønn til purpurfarget, og tørker fullstendig ut om høsten. Saften er vandig og fargeløs, et kjennetegn som er nyttig for å skille slekten fra skogbunnsfamilier med melkesaft.
Blader
Bladene er spredte, svært store og to- til tredobbelt fjærdelte, noe som gir planten en silhuett som mange observatører beskriver som tropisk. Hele bladplaten kan bli opptil 80 centimeter lang, båret av en lang bladstilk som er utvidet ved basis, der den delvis omslutter stengelen. Hver primærdeling bærer tre til syv eggformede til hjerteformede blader, opptil 15 centimeter lange, med tilspisset spiss og asymmetrisk eller lett hjerteformet base. Kanten er dobbelt sagtakket, med større tenner som igjen bærer mindre tannspisser, et diagnostisk kjennetegn innen slekten. Oversiden er mørkegrønn, undersiden lysere, noen ganger sparsomt hårete langs nervene.
Blomster
Blomstene er ørsmå, hvite til krem-grønnaktige, omtrent 2 millimeter i diameter, og samlet i kuleformede skjermer som til sammen danner endestilte og aksillære topper som kan overstige 30 centimeter. Hver blomst er aktinomorf og femtallig, med fem korte kronblader, fem pollenbærere vekslende med kronbladene og en underhinnet fruktknute med fem fruktblader, kronet av frie griffelgrener. Det blomstrende hele er beskjedent på avstand og overraskende staselig på nært hold, spesielt på grunn av antallet skjermer som er åpne samtidig i samme topp.
Frukter og frø
Frukten er en kuleformet steinfrukt på 5 til 7 millimeter i diameter, saftig, som skifter fra grønn til purpurrød og til slutt til svært mørk, nesten svart purpur ved modning. De hengende klasene av modne frukter kontrasterer med den rødlige bladstilken og utgjør syklusens mest dekorative øyeblikk. Hver steinfrukt inneholder tre til fem flate, lysebrune steinkjerner på 2 til 3 millimeter, hvis frø har et lite differensiert embryo ved spredning, en tilstand som forklarer den langvarige hvilen omtalt nedenfor.
Rot og stengel
Det underjordiske systemet er artens mest karakteristiske organ. Det består av en tykk, saftig, horisontal jordstengel med brun bark og gulaktig indre, som blir tykkere år for år og danner kraftige siderøtter. Det ferske vevet avgir en sterk, søtlig duft, i litteraturen sammenlignet med sassafras og lakris, som stammer fra flyktig olje lagret i parenkymet. Det er fra denne jordstengelen at knoppene om våren bryter frem og står for hele gjenveksten av den overjordiske delen.
Utbredelse og habitat
Arten er hjemmehørende i sentrale og østlige Canada samt den sentral-nordlige og østlige delen av USA. På kanadisk territorium forekommer den fra Manitoba og Ontario til Quebec, New Brunswick, Nova Scotia og Prince Edward Island. I USA strekker utbredelsen seg fra Maine, Minnesota og South Dakota til Alabama, Georgia og Mississippi, og dekker praktisk talt hele provinsen av østlige løvskoger. Utenfor det hjemmehørende arealet registrerer Plants of the World Online en introdusert forekomst i Storbritannia, hvor planten har unnsluppet fra prydhager uten å opptre som en aggressiv invasiv art.
Det typiske habitatet er det indre av modne løv- og blandingsskoger med et kronedekke av lønn, bøk, bjørk og eik, samt skyggefulle skogkanter, fuktige raviner, steinete skråninger og bredder langs fjellbekker. Den foretrekker dype, organisk rike jordsmonn med rikelig strølag, god fuktholdingsevne og effektiv drenering, i et lett surt til nøytralt pH-område. Høydeutbredelsen går fra lavtliggende kystområder i nord til rundt 1500 meter i Appalachene, og underarten fra sørvest bebor skyggefulle canyons i enda større høyder. Kuldetoleransen er stor, med hvilende jordstengler som tåler de strenge vintrene i USDAs herdighetssoner 3 til 9. Det er ingen dokumenterte tilfeller av invasiv atferd i noen del av det introduserte arealet.
Dyrking
Formering ved deling av jordstengelen er den raskeste og mest forutsigbare metoden. Inngrepet gjøres på slutten av vinteren eller begynnelsen av våren, før knoppene bryter jorden, ved å skille ut deler med minst to levedyktige knopper og umiddelbart plante dem om i en grunn grop med jordstengelen like under overflaten. Planter oppnådd slik gjenvinner sin opprinnelige kraft i løpet av to til tre sesonger.
Formering ved frø er tregere og krever forståelse for taksonets hvile. Frøene har et umodent embryo ved spredning og krever en varm periode etterfulgt av en langvarig kald stratifisering, i størrelsesorden 90 til 120 dager mellom 2 og 4 grader Celsius, før spiring skjer. Fruktkjøttet i steinfrukten må fjernes før lagring, siden det hemmer spiringen. Selv med protokollen overholdt er fremspiringen som regel uregelmessig og fordeler seg over mer enn én sesong, derfor sår spesialiserte planteskoler utendørs om høsten og venter til påfølgende vår.
Dyrkingskravene gjenspeiler det naturlige habitatet. Planten krever delvis til tett skygge og tåler full sol bare i kjølige klima med konstant jordfuktighet. Det ideelle substratet er en dyp skogkompost, holdt fuktig uten vannmetning, dekket av et permanent lag med blader eller findelt bark. Plantavstanden må ta hensyn til tuens endelige volum, med minst 1 meter mellom eksemplarer. Kraftig gjødsling er unødvendig og til og med kontraproduktivt, siden det favoriserer den overjordiske delen på bekostning av det underjordiske systemet.
Blant de hyppigst nevnte plantehelseproblemene er snegler som angriper de sarte vårskuddene, den japanske billen Popillia japonica i områder der den er invasiv, midd i tørr luft og sporadiske bladlus på blomsterstandene. På sykdomssiden opptrer soppflekker på blader i regnfulle somre, og rotråte forårsaket av Phytophthora er den alvorligste risikoen på komprimerte eller dårlig drenerte jordsmonn. Den hagebrukmessige høstingen begrenser seg til modne frukter sent på sommeren, bestemt for frøinnsamling. Uttak av jordstengler fra ville bestander frarådes av bevaringshensyn omtalt nedenfor.
Fenologi
Utspring skjer mellom april og mai på den nordlige halvkule, når kronedekket ennå ikke er helt lukket og lys når skogbunnen. Blomstringen konsentreres fra juni til august, med en topp i juli, og en enkelt plante holder skjermene åpne i flere uker takket være den trinnvise åpningen inne i toppen.
Bestøvningssystemet er generalistisk, og nektaren ligger eksponert på blomsterskiven, tilgjengelig for insekter med kort munnapparat. Registrerte besøkende omfatter solitære bier, solitære veps, blomsterfluer, maur, små biller og dagaktive møll, uten at noen spesialiseringsrelasjon er dokumentert. Denne opportunistiske strategien er i tråd med blomstringen på sommerens høydepunkt, når tilbudet av pollinatorer i skogbunnen er stort.
Fruktsettingen strekker seg fra august til oktober. Spredningen er hovedsakelig endozoøkorisk: fruktetende fugler, inkludert trosker av slektene Catharus og Turdus, spiser steinfruktene og avsetter frøene langt fra morplanten, mens små pattedyr som stripete jordekorn supplerer tjenesten i lokal skala. Etter spredningen pålegger den morfofysiologiske hvilen et intervall på minst én vinter, ofte to, mellom fruktfall og spiringens fremkomst. Den juvenile veksten er langsom, og et individ trenger vanligvis tre til fem år for å blomstre for første gang.
Beslektede arter og forvekslinger
Slekten Aralia samler omtrent sytti arter fordelt over Asia og Amerika, og flere av dem forekommer eller dyrkes i samme region. De mest nyttige feltkjennetegnene er følgende:
- Aralia californica S.Watson: vestlig sideart av lignende størrelse, begrenset til elveskoger langs Stillehavskysten, uten geografisk overlapp med den østlige arten.
- Aralia cordata Thunb.: stor urteaktig art fra Øst-Asia, dyrket i Japan som grønnsak, med blader med enkelt sagtakket kant og en mer veldefinert klaseaktig blomsterstand.
- Aralia hispida Vent.: lav halvbusk fra sandige jordsmonn og glenner, med nedre stengel dekket av stive bust og en størrelse som sjelden overstiger 1 meter.
- Aralia nudicaulis L.: utvikler ikke en bladbærende overjordisk stengel, siden det enkle bladet og blomsterstanden springer separat ut fra jordstengelen, og blomsterstanden reduseres til noen få skjermer holdt under løvverket.
- Aralia spinosa L.: forvedet busk eller lite tre bevæpnet med kraftige torner på stamme og bladstilker, et kjennetegn som løser identifikasjonen umiddelbart.
Tre dobbeltgjengere utenfor slekten fortjener oppmerksomhet fordi de villeder uerfarne observatører:
- Actaea racemosa L.: deler artsepitetet ved en tilfeldighet og intet annet. Tilhører Ranunculaceae, har trekoblede blader og en oppreist, hvit, avlang klaseblomsterstand, svært forskjellig fra Araliaceaes kuleformede skjermer.
- Phytolacca americana L.: ligner på avstand ved den kraftige urteaktige størrelsen og klasene av mørke frukter, men har enkle, ikke sammensatte blader, en iøynefallende rødlig stengel og flate bær i klaser. Skillet har betydning for sikkerheten: røtter, stengler og frukter av Phytolacca americana inneholder saponiner og fytolakkatoksin, og inntak forårsaker forgiftning.
- Sambucus spp.: hyllebusker gjentar mønsteret med sammensatte blader og mørke frukter i klaser, men har varig forvedede stengler, motstilte blader og en flat, skjermaktig blomsterstand, mens Aralia racemosa har spredte blader og en helt ettårig overjordisk del.
Fytokjemi
Den kjemiske karakteriseringen av arten er mindre grundig enn for kommersielt interessante asiatiske slektninger, og mye av det som er kjent kommer fra fytokjemiske screeninger og komparative studier på slektsnivå. Analyser av rot og stengel registrerer tilstedeværelsen av saponiner, triterpener, glykosider, flavonoider, tanniner og flyktig olje.
De triterpene saponinene av oleanan-typen utgjør den mest karakteristiske klassen av Aralia og er, sammen med polyacetylenene, ansvarlige for den kjemiske profilen som bringer slekten nær Panax. Aralosidene, med oleanolsyre som aglykon og varierende glykosidkjeder, er den emblematiske gruppen i denne linjen. Polyacetylener av falcarinol- og falcarindiol-typen, vanlige i Araliaceae og Apiaceae, er også beskrevet for slekten og konsentrerer seg i de underjordiske vevene og de unge siderøttene.
Jordstengelens flyktige olje står for plantens intense duft i fersk tilstand og samler monoterpener og sesquiterpener i forhold som varierer med opprinnelse og innsamlingstidspunkt. Fenoliske forbindelser, spesielt kaffesyrederivater, finnes fordelt i blader og røtter. Metabolittenes fordeling langs plantekroppen følger familiens mønster: de underjordiske organene konsentrerer saponiner og polyacetylener, mens bladene primært hoper opp flavonoider og fenolsyrer.
Historie og etnobotanikk
Materialet som lå til grunn for Linnés beskrivelse, kom fra Peter Kalms nordamerikanske ekspedisjon, en elev av Linné selv, gjennomført mellom 1748 og 1751. Kalm noterte i sine dagbøker at kolonister og urfolk kjente den aromatiske roten godt lenge før noen europeisk botaniker hadde navngitt planten.
Den etnobotaniske dokumentasjonen er blant de mest omfattende blant nordamerikanske urter. Daniel Moermans sammenstilling samler snesevis av anvendelser tilskrevet folk fra hele den østlige halvdelen av kontinentet, blant dem algonkin, cherokee, chippewa, choctaw, irokeser, malecite, menominee, meskwaki, micmac, ojibwe, penobscot og potawatomi. Cherokeserne brukte infusjoner av rot og frukt; irokeserne tilberedte sammensatte avkok som kombinerte røtter og bark fra flere planter; grupper rundt de store sjøene inkluderte jordstengelen i blandinger mot luftveisplager. Flere av disse folkene betraktet også planten som sesongbasert mat og som en del av seremonielle praksiser, en dimensjon som 1900-tallets litteratur ofte ignorerte ved kun å katalogisere de medisinske anvendelsene.
På 1800-tallet kom arten inn i den nordamerikanske eklektiske medisinens repertoar og dukket opp i King’s American Dispensatory, et kompendium utgitt i 1898 av John King, Harvey Wickes Felter og John Uri Lloyd. Det folkelige navnet «life-of-man», brukt i deler av New England og de kanadiske sjøprovinsene, er en rest av dette ryktet. I samme periode ble roten en ingrediens i drikkevareindustrien: aromaen tjente som erstatning for eller supplement til sarsaparilla i fremstillingen av root beer, og den hjemlige bruken av denne aromatiseringen holdt seg gjennom mesteparten av 1900-tallet i Appalachene. Ingenting av dette utgjør en aktuell anbefaling, men kun en historisk dokumentasjon av hvordan ulike kulturer forholdt seg til planten.
Bevaring
Arten har ingen publisert vurdering på Rødlisten til Den internasjonale naturvernunionen, en status klassifisert som ikke evaluert. Den tilgjengelige referansen er NatureServe-systemet, som tildeler Aralia racemosa den globale rangeringen G5, tilsvarende et sikkert takson, med N5 i Canada og N4 i USA. Den brede utbredelsen og forekomsten i mange stater understøtter denne klassifiseringen.
Bildet endrer seg ved kantene av utbredelsesområdet, hvor perifere bestander får statlige risikorangeringer og figurerer på lokale lister over arter av bekymring. Det dokumenterte presset er av fire slag: innsamling av jordstengler fra ville bestander til urtehandelen; fragmentering og nedgang av modne skoger, det eneste habitatet der arten trives; intensiv beiting fra hjortedyr i områder der hjortebestander har vokst uten rovdyr; og konkurranse med invasive skogbunnsarter, særlig Alliaria petiolata og Microstegium vimineum. Organisasjonen United Plant Savers holder arten på sin overvåkningsliste og anbefaler dyrking som alternativ til vill innsamling. Aralia racemosa er ikke oppført i noe vedlegg til Konvensjonen om internasjonal handel med truede arter av vill flora og fauna.
Når det gjelder hjemmesikkerhet, er en faktuell merknad på sin plass: arten står ikke på listene over giftige eller ugiftige planter for hunder og katter publisert av ASPCA, noe som betyr fravær av vurdering og ikke dokumentert ufarlighet. Fruktene inneholder saponiner, en stoffklasse assosiert med gastrointestinal irritasjon ved inntak i mengde.
Kuriositeter
- Det folkelige navnet har ingen slektskap med nardusen fra den bibelske og middelhavske tradisjonen, som tilsvarer Nardostachys jatamansi, en himalayisk plante fra familien Caprifoliaceae. Navneoverføringen skjedde kun på grunn av likheten i rotens duft.
- Artsepitetet racemosa beskriver planten dårlig. Blomsterstanden er en topp av skjermer, en helt annen struktur enn en ekte klase, og Linnés valg synes å ha vært styrt av det hengende utseendet til fruktklasene.
- Planten er urteaktig, men oppfører seg som en langlivet flerårig plante. Etablerte tuer i modne skoger kan innta samme sted i tiår og gjenoppbygge mer enn 1 meter overjordisk del hver vår.
- Den eneste dokumenterte forekomsten utenfor Nord-Amerika er forvillingen i Storbritannia, resultatet av unnslupne prydhageplanter i skygge.
- To nordamerikanske skogbunnsplanter bærer epitetet racemosa og er blitt brukt i samme region, selv om de tilhører ikke nært beslektede familier: Actaea racemosa, fra Ranunculaceae, og arten i denne profilen, fra Araliaceae.
- For en annen botanisk profil fra samme orden Apiales, se profilen av Ferula linkii.
Merk: dette innholdet er informativt og erstatter ikke profesjonell helserådgivning. Rådfør deg med lege eller fytoterapeut før du bruker medisinplanter, spesielt under graviditet, amming eller ved bruk av legemidler.
Referanser og vitenskapelige studier
Se Alle 11 Siterte Kilder
Fagfellevurderte Vitenskapelige Studier (3)
- DOI2004 Lowry, P. P., Plunkett, G. M., Wen, J. Generic relationships in Araliaceae: looking into the crystal ball. South African Journal of Botany, 70(3), 382-392. 2004. ↗
- PEER NatureServe. Aralia racemosa, American Spikenard: global rank G5. NatureServe Explorer, Arlington. ↗
- DOI2001 Wen, J. Evolution of the Aralia-Panax complex (Araliaceae) as inferred from nuclear ribosomal ITS sequences. Edinburgh Journal of Botany, 58(2), 243-257. 2001. ↗
Supplerende Lesning (8)
- 2016 Flora of North America Editorial Committee. Flora of North America North of Mexico, vol. 13: Araliaceae. Oxford University Press, New York. 2016.
- Global Biodiversity Information Facility. Aralia racemosa L. GBIF Backbone Taxonomy. ↗
- International Plant Names Index. Aralia racemosa L., Species Plantarum 1: 273. Royal Botanic Gardens Kew, Harvard University Herbaria and Australian National Herbarium. ↗
- Linnaeus, C. Species Plantarum, vol. 1. Laurentius Salvius, Stockholm. 1753.
- 1998 Moerman, D. E. Native American Ethnobotany. Timber Press, Portland. 1998.
- Native Plant Trust. Aralia racemosa L., American spikenard. Go Botany. ↗
- Plants of the World Online. Aralia racemosa L. Royal Botanic Gardens, Kew. ↗
- United Plant Savers. Species At-Risk Assessment Tool: Spikenard, Aralia racemosa. unitedplantsavers.org. ↗