Chrysanthemum × morifolium er planten som nesten alle rett og slett kaller krysantemum, en flerårig urt i familien Asteraceae som ikke finnes i vill tilstand og trolig aldri har gjort det. Det som dyrkes under dette navnet, er et hybridkompleks bygget opp gjennom menneskelig utvelgelse i det østlige Kina over mer enn to årtusener, ved gjentatt krysning av flere arter innen samme slekt. Plants of the World Online, fra Royal Botanic Gardens Kew, registrerer hybridformelen som C. argyrophyllum × C. dichrum × C. indicum × C. nankingense × C. zawadskii, og plasserer opprinnelsen til dette komplekset i det sørøstlige Kina.
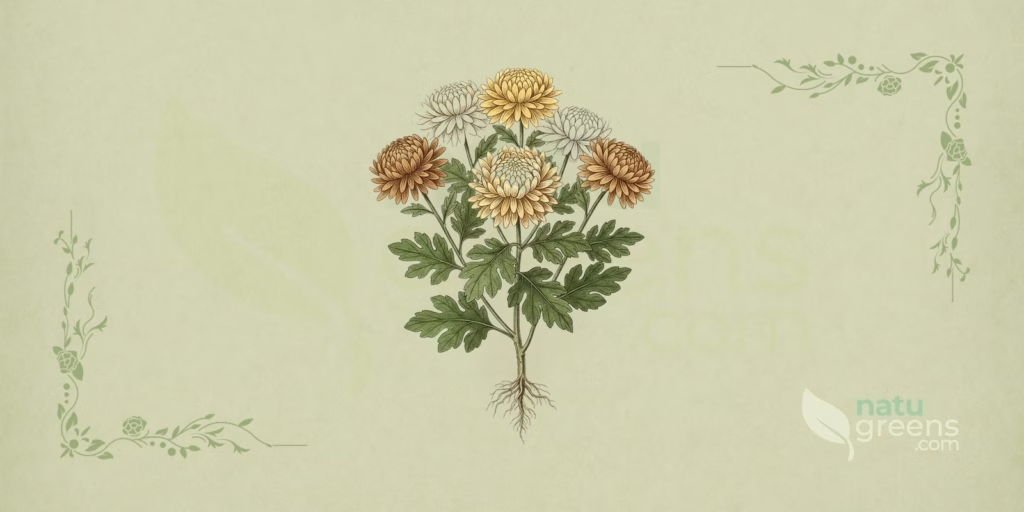
Denne statusen som gammel hybrid forklarer nesten alt som gjør planten bemerkelsesverdig. Krysantemum teller over tjue tusen registrerte kultivarer innen prydplantedyrking, et mangfold av blomsterformer som spenner fra en enkel kurv som ligner en prestekrage til kuler på ti centimeter og trådformede blomsterstander kalt edderkopp, samt et ustabilt heksaploid genom som fortsatt gir somatisk variasjon selv innenfor samme klonale linje. Samtidig er den en av verdens mest omsatte potte- og snittplanter, med relevante produksjonskjeder i Kina, Colombia, Nederland, Japan og Kenya, i tillegg til Brasil, hvor regionen Holambra i delstaten São Paulo konsentrerer det meste av den nasjonale produksjonen.
Denne profilen samler den bekreftede klassifiseringen ifølge IPNI og Plants of the World Online, den nomenklatoriske historien som førte til at slekten ble splittet og siden gjenforent ved vedtak fra en botanisk kongress, morfologien ifølge floristiske behandlinger, den fenologiske atferden styrt av fotoperioden, den dokumenterte agronomiske forvaltningen, den beskrivende kjemiske sammensetningen av kurvene og artens historiske og kulturelle plass i Asia og Vesten. Andre medlemmer av familien Asteraceae med en grundig profil på dette nettstedet er ekte kamille og romerkamille.
Taksonomi
Navnet som er akseptert av Plants of the World Online er Chrysanthemum × morifolium (Ramat.) Hemsl., under IPNI-registreringsnummer 77111328-1. Epitetet morifolium går tilbake til Thomas Albin Joseph d’Audibert de Ramatuelle, som publiserte det i Journal d’Histoire Naturelle, bind 2, side 240, i 1792, og den nåværende kombinasjonen tilskrives William Botting Hemsley, som behandlet hagekrysantemummet og dets slektninger i Annals of Botany i 1889. Skrivemåten for forfatterangivelsen varierer mellom databasene: en del av litteraturen siterer rett og slett Chrysanthemum morifolium Ramat., og IPNI selv fører separate registreringer for de konkurrerende kombinasjonene. Multiplikasjonstegnet som Kew bruker, signaliserer taksonets hybride natur, og det er vanlig å se binomiet skrevet uten det i agronomisk og hagebruksfaglig litteratur.
- Rike: Plantae
- Divisjon: Tracheophyta
- Klasse: Magnoliopsida
- Orden: Asterales
- Familie: Asteraceae Bercht. & J. Presl
- Underfamilie: Asteroideae
- Tribus: Anthemideae
- Subtribus: Artemisiinae
- Slekt: Chrysanthemum L.
- Art: Chrysanthemum × morifolium (Ramat.) Hemsl., Ann. Bot. 3 (1889)
Synonymer
Synonymien er omfattende, resultatet av to århundrer med parallelle beskrivelser av kultivarer og to slektsskifter i motsatte retninger. Blant navnene som behandles som synonymer av Plants of the World Online, er:
- Anthemis grandiflora Ramat.
- Chrysanthemum × hortorum W. Mill.
- Chrysanthemum × sinense Sabine
- Dendranthema × grandiflorum (Ramat.) Kitam.
- Dendranthema × morifolium
- Matricaria × morifolia
Omklassifiseringen til Dendranthema og tilbakevendingen til Chrysanthemum
Få navn på kulturplanter har hatt en så omtumlet nomenklatorisk historie. På 1960-tallet konkluderte revisjoner av tribus Anthemideae med at slekten Chrysanthemum, slik den da var avgrenset, samlet heterogene linjer, og størstedelen av de asiatiske artene ble overført til Dendranthema. Den praktiske konsekvensen var at prydkrysantemummet, en av verdens mest omsatte prydplanter, i kataloger, plantehelsenormer og agronomisk litteratur fra 1970- til 1990-tallet ble betegnet Dendranthema × grandiflorum.
Reaksjonen kom fra bransjen selv. I 1995 sendte Piers Trehane til tidsskriftet Taxon forslaget om å bevare navnet Chrysanthemum med en konservert type, ved å erstatte typearten med Chrysanthemum indicum L. Forslaget ble godkjent og ratifisert på den internasjonale botaniske kongressen i 1999 i St. Louis, som brakte hage- og handelskrysantemumene tilbake til den opprinnelige slekten og flyttet de europeiske artene som tidligere bar navnet til andre slekter. I dag er bruken av Chrysanthemum klart dominerende, selv om Dendranthema fortsatt forekommer i eldre litteratur og enkelte østasiatiske publikasjoner.
Etymologi
Slektsnavnet kombinerer de greske ordene chrysos, gull, og anthemon, blomst, en henvisning til den gule fargen på kurvene til artene Linné kjente. Epitetet morifolium kommer fra latin og betyr med blader som morbærtreets, slekten Morus, en sammenligning basert på den flikete formen og teksturen til bladene. På norsk er navnet krysantemum en direkte lån fra det latinske slektsnavnet.
Morfologisk beskrivelse
Det er en oppreist til halvoppreist, flerårig urt som danner kompakte tuer og hos de fleste kultivarer når tretti til nitti centimeter i høyden, selv om utstillingskultivarer med oppbinding overstiger halvannen meter. I klima med streng vinter visner den overjordiske delen, og planten skyter igjen fra basen påfølgende vår; i milde klima, som store deler av Brasil, er veksten halvvintergrønn, og tuen beholder løv hele året. Den morfologiske variasjonen mellom kultivarer er så stor at enhver beskrivelse må leses som et intervall, ikke som et fast mønster.
Blader
Bladene er spredte, stilkede, med en bladstilk på en til tre centimeter, en bladplate på tre til ti centimeter i lengden og to til fem centimeter i bredden, eggformet omriss og fjærfliket med tre til fem dype flikker og uregelmessig sagtannet kant. Oversiden er grønn til gråaktig grønn, og undersiden, lysere, har en behåring av fine hår som gir planten et lett filtaktig preg ved berøring. Når bladene knuses, avgir de en karakteristisk kamferaktig duft, resultatet av eterisk olje oppsamlet i kjertelceller, og denne duften er et av de mest nyttige feltkjennetegnene for å gjenkjenne slekten innen Anthemideae.
Blomster
Det handelen kaller krysantemumets blomst, er i streng botanisk forstand en kurv, den sammensatte blomsterstanden som er typisk for Asteraceae, dannet av titalls til hundretalls enkeltblomster samlet på en hvelvet blomsterbunn, beskyttet av en svøp av dekkblad i flere rekker. Periferien opptas av tungeblomster, som ivaretar den visuelle funksjonen som kronblad, og sentrum av rørformede skiveblomster. Diametrene spenner fra to til tretti centimeter avhengig av kultivar, og fargepaletten dekker hvitt, gult, bronse, oransje, rosa, rødt, purpur og grønnaktige nyanser, samt tofargede kombinasjoner.
Århundrer med hagebruksmessig utvelgelse har nettopp virket på denne arkitekturen, ved å mangfoldiggjøre tungeblomstene på bekostning av rørblomstene, noe som har gitt de klassene som anerkjennes av hagebruksforeninger, blant annet anemoneform, edderkopp, dekorativ, innbøyd, pompong, tilbakebøyd og enkel. Hos mange fylte kultivarer forsvinner skiveblomstene nesten helt, noe som drastisk reduserer produksjonen av pollen og frø.
Frukter og frø
Frukten er en nøttefrukt, den kjennetegnende småfruktypen hos Asteraceae, på en til to millimeter, mørkebrun, uten fremtredende fnokk hos de fleste kultivarer. Produksjonen av spiredyktige frø er lav og uregelmessig, dels på grunn av den delvise steriliteten forbundet med heksaploidien, dels på grunn av undertrykkingen av skiveblomster i fylte kultivarer. Kjønnet formering er i praksis begrenset til foredlingsprogrammer, ettersom avkommet av enhver kultivar spalter i former og farger som ikke gjenskaper morplanten.
Røtter og stengler
Stengelen er oppreist, forgrenet i den øvre delen, grønn til grønfiolett, dekket av fine hvitaktige hår og lett forvedet ved basen hos voksne planter. Rotsystemet er trevlet og overflatisk, konsentrert i de øverste ti til tretti centimeterne av jorden, noe som gjør planten følsom for både kortvarig tørke og vannmetning. Fra basen springer korte jordstengler og utløpere som ved hver syklus danner nye skudd, en mekanisme som understøtter tuens flerårighet og danner grunnlaget for formering ved deling.
Utbredelse og habitat
Som en hybrid av dyrket opprinnelse har krysantemum ikke et naturlig utbredelsesområde i vanlig forstand. Plants of the World Online registrerer det sørøstlige Kina som opprinnelsesregion for hybridkomplekset, og foreldreartene er utbredt over Øst-Asia, fra det østlige Himalaya og det nordlige Indokina til Korea, Japan, Mongolia og det sørlige Sibir. All forekomst av planten utenfor dette beltet skyldes bevisst introduksjon.
Den globale spredningen skjedde i to bølger. Den første, asiatiske bølgen brakte krysantemum fra Kina til Japan og Korea mellom det 8. og 10. århundre. Den andre startet fra havnen i Marseille i 1789, da kinesiske eksemplarer nådde Frankrike og, i løpet av få tiår, England og resten av Europa, noe som nærte det intensive hybridiseringsarbeidet i det 19. århundre. I dag dyrkes arten i praktisk talt alle regioner med tempererte, subtropiske og tropiske høylandsklima på planeten.
Når det gjelder miljøkravene, trives planten på veldrenerte, fruktbare jorder, rike på organisk materiale og med en pH mellom 6,0 og 7,0, fra havnivå til rundt to tusen meters høyde. Det ideelle temperaturintervallet for vegetativ vekst ligger mellom 17 og 23 grader Celsius; temperaturer over 30 grader forringer kurvenes kvalitet, og robuste hagekultivarer tåler moderat frost med visnende overjordisk del. Registreringer av forvillelse er sjeldne og lokale, oftest knyttet til rømte dyrkningsplanter langs veikanter og forstyrrede arealer, uten at arten opptrer på relevante lister over invaderende planter.
Dyrking
Den kommersielle produksjonen baserer seg nesten utelukkende på vegetativ formering, som bevarer kultivarens identitet. Den dominerende metoden er topputstikk, med stiklinger på fem til ti centimeter tatt fra morplanter holdt i vegetativ tilstand, rotfestet i lett substrat under tåkevanning i fjorten til tjueen dager, ofte med hjelp fra rotfestingsregulatorer. Deling av tuen, utført ved slutten av vinteren, betjener hager og småplantinger. Mikroformering ved meristemkultur fyller en spesifikk og strategisk rolle, nemlig å produsere virus- og viroidfritt utgangsmateriale for å fornye morplantebestander.
Dyrkingens forvaltning kombinerer gjentatt topping for å fremme forgrening, balansert gjødsling med oppmerksomhet på fosfor ved overgangen til den reproduktive fasen, regelmessig vanning fortrinnsvis ved dryppvanning, og hos langstengelede kultivarer oppbinding med horisontale nett. Vanlige plantingsavstander på åkeren ligger mellom tretti og femti centimeter i raden og femti til åtti centimeter mellom radene. I beskyttet dyrking er styringen av fotoperioden systemets sentrale element: mørkleggingsnett forkorter dagen for å fremkalle blomstring utenom sesong, og natteavbruddslamper forlenger den vegetative fasen, noe som gjør det mulig å forsyne markedet hele året.
Blant de vanligste skadedyrene finnes bomullsnattfly og andre nattsvermere av slektene Helicoverpa og Spodoptera, mellomkålsommerfugl, minérflue av slekten Liriomyza, krysantemumbladlusen Macrosiphoniella sanborni, et skadedyr spesifikt for kulturen, og tripsen Frankliniella occidentalis, også viktig som virusvektor. På sykdomssiden fremheves hvit rust forårsaket av Puccinia horiana, en karanteneskadegjører regulert av EPPO og ulike nasjonale plantehelsetjenester, brunrust av Puccinia chrysanthemi, bladflekk av Septoria, visnesyke av Verticillium og krysantemummosaikkviruset. Høsting til snittblomst skjer ved åpningsstadiet for kurven som er fastsatt per kultivar, og høsting av kurver bestemt for tørking foregår manuelt, enkeltvis.
Fenologi
Krysantemum er det klassiske eksempelet på en kortdagsplante, og denne egenskapen styrer hele dens kalender. Blomsterinduksjonen avhenger av lange netter og inntreffer når fotoperioden faller under omtrent tretten og en halv time, en terskel som varierer etter kultivar. Under naturlige forhold på den nordlige halvkule plasserer dette blomstringen om høsten, mellom september og november, en sammenheng som har gitt planten kallenavnet høstblomst på flere språk. På den sørlige halvkule flytter den naturlige toppen seg til perioden mellom mars og mai.
Fra planting av stiklingen til de første kurvene åpner seg, går det i gjennomsnitt nitti til hundre og tjue dager. Bestøvningen er entomofil, utført av bier, fluer og sommerfugler tiltrukket av skiveblomstene, men denne besøkets økologiske betydning er redusert hos fylte kultivarer, hvor skiven er blitt undertrykt av utvelgelsen. Fruktdannelsen, når den forekommer, skjer uker etter blomstringen, og spredningen av nøttefruktene er vindspredning over kort avstand. I praksis avhenger den dyrkede krysantemumets videreføring verken av frø eller spredere: den er klonal og formidlet av mennesket.
Beslektede arter og forvekslinger
Slekten Chrysanthemum omfatter rundt førti aksepterte arter, konsentrert i Øst-Asia og organisert i to store linjer, komplekset rundt C. indicum og komplekset rundt C. zawadskii. Artene som er mest relevante for å forstå det dyrkede krysantemumet, er nettopp dets foreldre og bidragsytere: C. argyrophyllum, C. dichrum, C. indicum, C. lavandulifolium, C. nankingense, C. vestitum og C. zawadskii. Å skille hybriden fra disse artene i felt er vanskelig og til tider umulig uten cytogenetisk analyse, ettersom variasjonen fremkalt av utvelgelse overgår den naturlige variasjonen mellom de ville taksonene. Den mest anvendelige indikasjonen er kurvens størrelse, langt større og mer fyldig hos det dyrkede materialet, kombinert med opprinnelse fra planting og ikke fra en spontan populasjon.
Utenfor slekten er den vanligste forvekslingen historisk og skyldes nettopp de nomenklatoriske endringene. Flere planter som tidligere het Chrysanthemum, tilhører i dag andre slekter: Argyranthemum frutescens, buskmargeritt, tidligere C. frutescens; Glebionis coronaria, tidligere C. coronarium, hvis blader spises som grønnsak i Øst-Asia; Leucanthemum vulgare, prestekrage, tidligere C. leucanthemum; Tanacetum parthenium, tidligere C. parthenium; og Tanacetum vulgare, reinfann, tidligere C. vulgare. Den som arbeider med tørket materiale eller litteratur fra før år 2000, må kontrollere navnets dato og kilde før man antar plantens identitet, fordi det samme binomiet kan betegne svært ulike arter avhengig av perioden.
Det finnes ingen klassisk farlig dobbeltgjenger for krysantemumet i betydningen forveksling med en voldsomt giftig plante, men det bør nevnes at slekten Tanacetum, nærstående innen Anthemideae og lignende i den kamferaktige duften, omfatter arter med en betydelig mer aggressiv profil av sesquiterpenlaktoner, og at flere lignende Anthemideae er kontaktsensibiliserende.
Fytokjemi
Kurvene er artens kjemisk best undersøkte organ og konsentrerer tre hovedklasser av metabolitter. De dominerende flavonoidene er flavoner og deres glykosider, med acacetin, apigenin, diosmetin og luteolin i front, ledsaget av derivater som linarin og luteolin-7-O-glykosid. Fenolsyrene opptrer hovedsakelig som kaffeoylkinasyreestere, deriblant klorogensyre og syrene 3,5-dikaffeoylkinasyre og 4,5-dikaffeoylkinasyre, brukt som analytiske markører for kvalitetskontroll av tørkede partier. Bladene registrerer normalt høyere relative innhold av fenolsyrer enn kurvene, mens flavonoider og eterisk olje konsentreres i blomsterstandene.
Den eteriske oljen domineres av monoterpener, med kamfer, borneol, chrysanthenon, eukalyptol og alfa-pinen blant de tilbakevendende bestanddelene, supplert av sesquiterpener som beta-karyofyllen. Nyere gjennomganger av slekten katalogiserer over hundre og åtti monoterpenoider og over to hundre sesquiterpenoider, deriblant laktoner av eudesmanolid-, germakranolid- og guaianolidtypen, hvorav handelin er et hyppig sitert eksempel. I tillegg kommer karotenoider som er ansvarlige for en del av den gule fargen, særlig lutein og zeaksantin, samt cellevegg- og reservepolysakkarider. Sammensetningen varierer markant mellom kultivarer, dyrkingsregioner og etter tørkemetoden etter høsting, noe som begrenser generaliseringer basert på isolerte analyser.
Historie og etnobotanikk
Dyrkingen av krysantemum i Kina er dokumentert siden Zhou-dynastiet, og klassiske tekster nevnte den allerede som hageplante og som råstoff registrert i gamle kompendier. Shennong Bencao Jing, satt sammen mellom det 1. og 2. århundre etter vår tidsregning, oppførte de tørkede kurvene under navnet Ju Hua blant materialene som ble katalogisert av datidens kinesiske farmakopé. Under Song-dynastiet var planten allerede gjenstand for monografiske avhandlinger, utstillinger og klassifiseringer av kultivarer, en virksomhet som ligger århundrer forut for den europeiske prydplantedyrkingen.
I Japan, dit den kom rundt det 8. århundre, ble krysantemum tatt opp i hoffkulturen med en intensitet uten sidestykke. Festivalen Chōyō no Sekku, feiret den niende dagen i den niende måneden, inngikk i den aristokratiske kalenderen siden Heian-perioden, og fra Kamakura-perioden begynte det stiliserte krysantemumet med seksten kronblad å identifisere det keiserlige hus, en bruk som overlever i det keiserlige seglet og i uttrykket Krysantemumtronen, brukt som metonymi for selve det japanske monarkiet. Kiku-utstillingene befestet ytterst utspekulerte oppbindingsteknikker, som ozukuri, hvor hundrevis av kurver oppnås fra én enkelt plante formet i kuppel, og kengai, som trener planten kaskadeformet.
Den vestlige ferden begynner i 1789 med introduksjonen av kinesiske eksemplarer i Frankrike av handelsmannen Pierre-Louis Blancard, og vinner omfang på 1800-tallet med arbeidet til britiske og franske hagebruksforeninger, som registrerte og navnga tusenvis av kultivarer. I samme periode, i store deler av katolske Europa og senere Latin-Amerika, etablerte krysantemumet seg som blomst forbundet med Allehelgensdag og Alle sjelers dag, en rolle som forklarer etterspørselstopper i begynnelsen av november på den nordlige halvkule og en betydelig del av den brasilianske prydplantehandelens kalender.
Fra et sikkerhetsmessig synspunkt inneholder planten sesquiterpenlaktoner, og ASPCAs dyregiftsenter klassifiserer slekten som giftig for hunder, katter og hester, med sesquiterpenlaktoner og pyretrinlignende forbindelser blant de toksiske prinsippene, med symptomer som overdreven spyttproduksjon, oppkast, diaré, koordinasjonsvansker og dermatitt. Hos mennesker forårsaker gjentatt kontakt med blader og stengler allergisk kontaktdermatitt hos sensibiliserte personer, en tilstand beskrevet i yrkeslitteraturen blant blomsterdyrkere og drivhusarbeidere.
Bevaring
Chrysanthemum × morifolium har ingen vurdering på IUCNs rødliste, en forventet situasjon for et takson av hybrid opprinnelse som utelukkende eksisterer i dyrking, og oppføres derfor som ikke vurdert. Arten opptrer heller ikke i noen av CITES’ vedlegg, og det finnes ingen internasjonal restriksjon på dens handel.
Det relevante bevaringsspørsmålet flytter seg til to andre punkter. Det første er de ville bestandene av foreldreartene, særlig innenfor kompleksene av C. indicum og C. zawadskii, som opplever habitattap og fragmentering i Øst-Asia og utgjør det genetiske reservoaret som all fremtidig foredling avhenger av. Det andre er ex situ-bevaring av selve den dyrkede diversiteten, oppbevart i genbanker og levende samlinger, siden klonale kultivarer lett går tapt når de forlater det kommersielle kretsløpet, og det ikke finnes en frøbank som kan gjenskape dem. I tillegg kommer den miljømessige kostnaden ved den intensive drivhusproduksjonen, med høyt forbruk av energi, gjødsel og plantevernmidler, et tilbakevendende tema i diskusjonene om prydplanteavlens bærekraft.
Kuriositeter
- Heksaploidien til det dyrkede krysantemumet, med 2n lik 54 kromosomer og hyppige aneuploidier, er en av grunnene til at somatiske mutasjoner lett oppstår i tuene. En stor del av de kommersielle kultivarene oppsto nettopp fra muterte skudd, identifisert og formert av oppmerksomme produsenter.
- I NASAs luftkvalitetsundersøkelse fra 1989, utført i lukkede kammer, var potte-krysantemumet blant plantene med best ytelse i å fjerne flyktige organiske forbindelser. Senere forskning viste at effekten er liten i reelle, ventilerte omgivelser, og det opprinnelige resultatet forblir en historisk kuriositet.
- Det stiliserte krysantemumet med seksten kronblad har identifisert det japanske keiserlige hus siden Kamakura-perioden og opptrer på det japanske passet, i det keiserlige seglet og i uttrykket Krysantemumtronen.
- Den samme slekten som i Øst-Asia symboliserer langt liv og adel, er i store deler av Europa og Latin-Amerika en sørgeblomst, en kulturell kontrast som ofte gir anledning til misforståelser ved gaver og buketter.
- Én enkelt plante, formet etter den japanske ozukuri-teknikken, kan vise frem mer enn tusen åpne kurver samtidig, alle båret av én opprinnelig stengel trent i nesten et år.
Merk: dette innholdet er informativt og erstatter ikke profesjonell helserådgivning. Rådfør deg med lege eller fytoterapeut før du bruker medisinplanter, spesielt under graviditet, amming eller ved bruk av legemidler.
Referanser og vitenskapelige studier
Se Alle 10 Siterte Kilder
Fagfellevurderte Vitenskapelige Studier (4)
- DOI2022 Hao, D. C., Song, Y., Xiao, P., Zhong, Y., Wu, P., Xu, L. The genus Chrysanthemum: phylogeny, biodiversity, phytometabolites, and chemodiversity. Frontiers in Plant Science, 13: 973197. 2022. ↗
- DOI Hemsley, W. B. The garden chrysanthemum and its allies. Annals of Botany, 3(4): 487-500. 1889. ↗
- DOI2012 Liu, P. L., Wan, Q., Guo, Y. P., Yang, J., Rao, G. Y. Phylogeny of the genus Chrysanthemum L.: evidence from single-copy nuclear gene and chloroplast DNA sequences. PLOS ONE, 7(11): e48970. 2012. ↗
- DOI1995 Trehane, P. Proposal to conserve the name Chrysanthemum L. with a conserved type (Compositae). Taxon, 44(3): 439-441. 1995. ↗
Supplerende Lesning (6)
- 2007 Anderson, N. O. Chrysanthemum. In: Flower Breeding and Genetics: Issues, Challenges and Opportunities for the 21st Century. Springer, Dordrecht. 2007.
- ASPCA Animal Poison Control Center. Chrysanthemum. American Society for the Prevention of Cruelty to Animals. ↗
- EPPO Global Database. Puccinia horiana. European and Mediterranean Plant Protection Organization. ↗
- International Plant Names Index. Chrysanthemum × morifolium (Ramat.) Hemsl., registro 77111328-1. The Royal Botanic Gardens Kew, The Harvard University Herbaria e Australian National Herbarium. ↗
- Plants of the World Online. Chrysanthemum × morifolium (Ramat.) Hemsl. Royal Botanic Gardens Kew. ↗
- Ramatuelle, T. A. J. d’A. de. Journal d’Histoire Naturelle, vol. 2, p. 240. Paris. 1792.