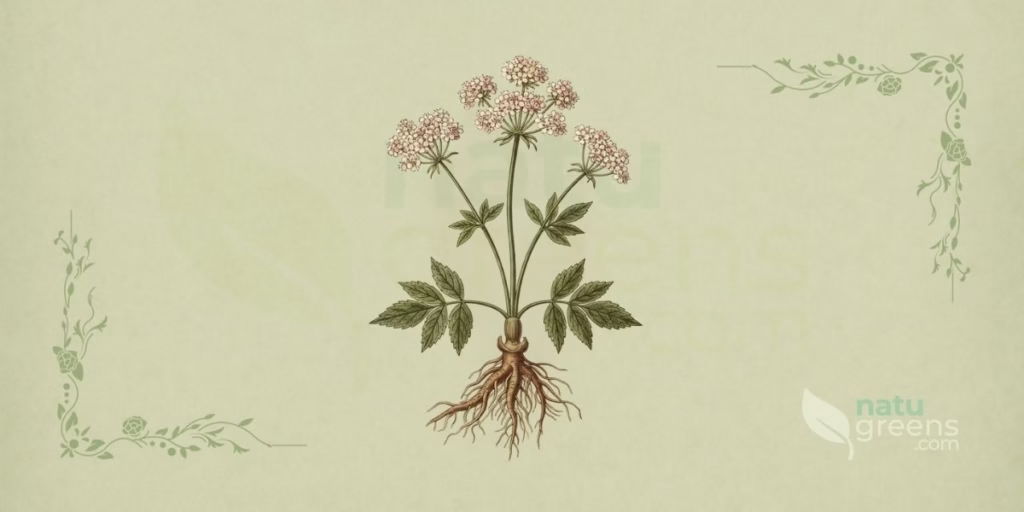
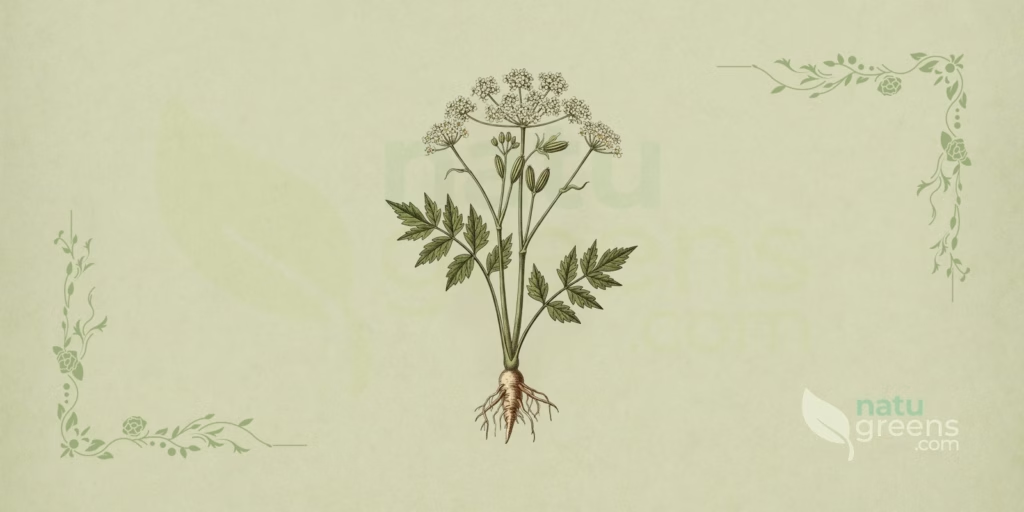
Ligusticum porteri er en kraftig, flerårig urteagtig plante af familien Apiaceae, samme gruppe som gulerod, selleri og fennikel. Den findes udelukkende i bjergene i det vestlige Nordamerika, hvor den vokser på subalpine enge og i det åbne underskov af nåleskove og bævreaspskove. På new mexicansk spansk kaldes planten “oshá”, et navn der er gået over i engelsk og den populære botaniske litteratur i det sydvestlige USA.
Det, der først fanger opmærksomheden i felten, er ikke bladværket, som ligner dusinvis af andre skærmplanter, men duften. Når rodstokken skrabes, frigives en gennemtrængende aroma, der ofte beskrives som en blanding af selleri og karamel, vedholdende nok til at blive på hænderne i timevis. Denne duftsignatur er artens mest pålidelige diagnostiske træk og, som det vil fremgå, også skillelinjen til dødeligt giftige slægtninge, der vokser i de samme bjergkæder.
Arten er bemærkelsesværdig af tre grunde, der forstærker hinanden. Den er så krævende, at den modstår dyrkning uden for sit eget habitat, vokser langsomt nok til, at en høstet plante repræsenterer mange års opbygning, og koncentrerer i rodstokken en phthalidkemi, der har været genstand for løbende fytokemisk forskning siden 1990’erne. Denne profil beskriver selve planten: taksonomi, morfologi, økologi, fænologi, kemi og bevaring.
Taksonomi
Placeringen af Ligusticum porteri har aldrig været genstand for relevant kontrovers. Navnet blev publiceret i 1888 af John Merle Coulter og Joseph Nelson Rose i deres revision af de nordamerikanske skærmplanter og accepteres fortsat både af International Plant Names Index og af Kews Plants of the World Online.
- Rige: Plantae
- Række: Tracheophyta (karplanter)
- Klasse: Magnoliopsida (tokimbladede)
- Orden: Apiales
- Familie: Apiaceae (Umbelliferae)
- Underfamilie: Apioideae
- Slægt: Ligusticum L.
- Art: Ligusticum porteri J.M.Coult. & Rose (1888)
Synonymer og infraspecifikke taxa
Synonymikken er kort. Ligusticum brevilobum Rydb., publiceret i 1917 i floraen for Rocky Mountains, blev senere nedgraderet til Ligusticum porteri var. brevilobum (Rydb.) Mathias & Constance i 1941. Nuværende behandlinger samler dette materiale under arten, så begge navne i dag cirkulerer som synonymer. Varieteten citeres stadig separat af nogle amerikanske myndigheder, især i statslige forekomstlister, hvilket skaber støj i udbredelsesdatabaser.
Det er værd at bemærke, at slægten Ligusticum, med mellem fyrre og tres cirkumboreale arter afhængigt af den anvendte inddeling, er blevet opsplittet i nyere molekylære studier. De asiatiske og nordamerikanske linjer danner ikke en sammenhængende gruppe, og en del af de arter, der tidligere blev samlet under navnet, er flyttet til andre slægter. Ligusticum porteri forbliver i slægten.
Etymologi
Slægtsnavnet henviser til Ligurien, regionen i det nordvestlige Italien, hvor slægtens europæiske arter har været kendt siden antikken. Artsepitetet hædrer Thomas Conrad Porter (1822-1901), amerikansk botaniker og gejstlig, som samlede en af det 19. århundredes vigtigste plantesamlinger fra Colorado.
Folkenavnene har mere uklar oprindelse. “Oshá” er et ord fra new mexicansk spansk med uløst etymologi, muligvis lånt fra et oprindeligt sprog i regionen. En tilbagevendende hypotese i litteraturen forbinder det med zuni-ordet for bjørn, uden at der findes noget solidt sprogligt belæg. “Chuchupate”, almindeligt i det nordlige Mexico, tilskrives generelt en spansk tilpasning af et nahuatl-udtryk for bittert urt.
Morfologisk beskrivelse af Ligusticum
Kraftig, flerårig urteagtig plante med oprette stængler, der varierer fra moderat slanke til tykke og bliver 42 til 150 centimeter høje. Stænglens base er omgivet af fibrøse rester af bladstilke fra tidligere sæsoner, som danner en karakteristisk krone af gråligt fiberværk over rodstokken. Hele den overjordiske del dør ned om vinteren, og planten skyder igen op fra det underjordiske system.
Blade
Basalbladene er få, nul til to per individ, og båret af lange bladstilke på 7 til 24 centimeter med udvidet skede ved fæstet. Bladpladen er tre til fire gange, sjældnere fem gange, delt i et fjeret til fjertredelt mønster, hvilket giver bladværket det typiske blondeagtige udseende hos skærmplanter. De terminale småblade er ægformede, sjældent lancetformede, måler 1 til 4,6 centimeter og har en indskåret til tandet rand. Stængelbladene er et til fire i antal, gradvist mindre og mere forenklede mod spidsen. Knust mellem fingrene frigiver de en stærk selleriduft.
Blomster
Blomsterstanden er en terminal sammensat skærm, flad til let hvælvet, som ved frugtsætning når 4,5 til 15,4 centimeter i diameter, undtagelsesvist ned til 3,3 centimeter. Antallet af primære stråler ligger hos de fleste individer mellem tolv og enogtyve, med registrerede yderpunkter fra seks til fireogtredive, og hver stråle måler 3,8 til 8 centimeter. Involukralblade mangler generelt eller optræder kun med ét, ægformet til aflangt. Involukelbladene er linjeformede og måler 1 til 6 millimeter. De enkelte blomster er små, med fem hvide eller sjældent lyserøde kronblade og omkring 2 til 5 millimeter i diameter samlet; bægerbladene er utydelige, som reglen er i familien.
Frugter og frø
Frugten er en aflang-ellipsoid spaltefrugt, dorsiventralt sammentrykt, 5,2 til 7,5 millimeter, med registrerede yderpunkter på 4,4 til 8 millimeter. Ribberne er veludviklede og ændrede, og i mellemrummene mellem dem løber tre til fem oliekanaler, sekretkanalerne der oplagrer de flygtige forbindelser. Modne delfrugter antager en brunlig til rødlig tone. Hver spaltefrugt deler sig i to enfrøede delfrugter ved spredning.
Rodstok og rod
Det underjordiske organ er artens mest karakteristiske struktur. Det drejer sig om en tyk, forveddet, forgrenet rodstok, dækket udvendigt af rynket, mørkebrun bark og kronet af den allerede nævnte fiberkrone. Indvendig er den gullig til lysebrun og udviser harpikskanaler synlige for det blotte øje i tværsnittet. Aromaen er intens og kompleks. Frisk er vævet sammensnerpende og forårsager irritation af mundslimhinden, en effekt der forsvinder ved tørring.
Udbredelse og levested
Arten er hjemmehørende i bjergene i det vestlige Nordamerika. Hovedudbredelsen dækker Arizona, Colorado, Nevada, New Mexico, Utah og Wyoming, med yderligere forekomster dokumenteret i Idaho og Montana, og strækker sig til det nordlige Mexico gennem staterne Chihuahua, Durango og Sonora i Sierra Madre Occidental.
Den registrerede højdegradient går fra 1.400 til 3.700 meter, men hovedparten af populationerne koncentreres mellem 2.200 og 3.400 meter. Der er tydelig variation efter breddegrad: i den sydlige ende af udbredelsen begrænser planten sig til de højeste niveauer, mens den i Utah og Wyoming går ned til betydeligt lavere højder. Det typiske levested omfatter åbne subalpine enge, lysninger og underskov i skove af Abies, Picea, Populus tremuloides og Pseudotsuga, samt bredder af bjergvandløb. Malurtformationer hører til de hyppige naboer i de tørrere randområder af udbredelsen.
Hvad angår jordbund er kravet konsekvent i hele udbredelsesområdet: dybt substrat, rigt på organisk materiale, fugtigt men veldrænet. Arten tåler både fuld sol og tæt skygge, hvilket forklarer dens tilstedeværelse både på enge og under lukket kronedække. Der er ingen registreret naturalisering af Ligusticum porteri uden for dens hjemmeområde, og heller ingen tegn på invasiv adfærd.
Dyrkning
Ligusticum porteri har et veletableret ry som en vanskelig plante, og havelitteraturen registrerer konsekvent fiaskoer ved forsøg på dyrkning uden for de bjergagtige oprindelsesbetingelser. Afhængigheden af mykorrhizasamarbejder i den hjemlige jord peges på som en af faktorerne, sammen med behovet for langvarig vinterkulde og markant temperaturamplitude mellem dag og nat.
Formering ved frø støder på dyb hvile. Langvarig kold stratifikation er nødvendig, i nogle tilfælde kombineret med fugtig stratifikation, og selv da forbliver spiringen uregelmæssig. I naturen er rekruttering fra frø en sjælden hændelse, og vedligeholdelsen af populationspletterne sker hovedsageligt gennem vækst og forgrening af rodstokken. Deling af rodstokken er teknisk mulig, når fragmenterne bærer levedygtige knopper, men etableringen er langsom og tager år.
Væksten er den centrale flaskehals. Aktuelle estimater peger på, at individer med udviklet rodstok er mere end ti år gamle, hvilket gør enhver produktionscyklus uforenelig med konventionelle landbrugsskalaer. De mest succesrige erfaringer er ikke egentlig dyrkning, men assisteret formering inden for de naturlige populationer selv, med såning og forvaltning på forekomststedet.
Fytosanitært udviser arten ingen alvorlige problemer i naturligt levested. Bladlus koloniserer blomsterstande og unge stængler, larver af svalehaler bruger bladværket som værtsplante, hvilket er almindeligt blandt Apiaceae, og rodråd opstår, når jorden forbliver vandmættet uden dræning. Græsning fra hovdyr og nedtrampning af kvæg udgør et større pres end nogen skadedyr i egentlig forstand.
Fænologi
Blomstringen finder sted om sommeren, koncentreret i den korte gunstige periode af bjergcyklussen, med højdepunkt mellem slutningen af juni og august afhængigt af højde og breddegrad. Frugtsætningen følger fra sensommer til tidlig efterår, og de tørre skærme forbliver oprejste på planten i nogle uger, før delfrugterne falder.
Som i hele familien tiltrækker skærmene et bredt spektrum af blomsterbesøgende, herunder bier, biller, fluer og hvepse. Studier af bestøvningsbiologi hos Apiaceae skelner dog mellem lejlighedsvise besøgende og effektive bestøvere, og i sidstnævnte gruppe findes bier fra familierne Andrenidae, Colletidae og Halictidae. Halictider er observeret på artens blomster i Chiricahua-bjergene i Arizona i september 2003.
Spredningen er cyklussens mest begrænsende punkt. Delfrugterne bæres hverken af dyr eller effektivt af vinden, og feltobservationer viser, at de falder og forbliver i nærheden af moderplanten. Denne i det væsentlige barokore spredning forklarer populationernes klyngede mønster og den langsomhed, hvormed arten genkoloniserer områder, hvor den er blevet fjernet.
Beslægtede arter og forvekslinger
Inden for slægten optræder nogle arter hyppigt i sammenligninger og bestemmelsesnøgler:
- Ligusticum canadense (L.) Britton, fra det østlige Nordamerika, med grovere bladværk og levested i løvskov.
- Ligusticum chuanxiong S.H.Qiu et al., et kinesisk taxon med lang landbrugshistorie, i dag ofte behandlet under navnet Ligusticum striatum DC.
- Ligusticum filicinum S.Watson, slægtning fra de centrale Rocky Mountains, med endnu finere delte blade og mindre aromatisk rodstok.
- Ligusticum grayi J.M.Coult. & Rose, fra Cascade Range og Sierra Nevada, mærkbart mindre af vækst.
- Ligusticum mutellina (L.) Crantz, europæisk alpin art fra Alperne og Pyrenæerne.
- Ligusticum scoticum L., kystplante fra det nordlige Europa og det nordøstlige Nordamerika, med kødfulde, blanke blade.
Farlige dobbeltgængere
Dette er profilens vigtigste sikkerhedspunkt. Ligusticum porteri ligner vegetativt to dødeligt giftige skærmplanter, der findes i det vestlige Nordamerika, og forvekslinger ved identifikation har allerede resulteret i dødelige forgiftninger.
- Cicuta douglasii og Cicuta maculata: vandgifttyderne indeholder cicutoxin og er blandt de giftigste planter i den nordamerikanske flora. Indtagelse af en lille mængde rodstok fremkalder krampe og død. De adskiller sig ved levested i vandmættet jord, sump eller kant af stillestående vand i generelt lavere højder, ved rodstokken med tværgående indre kamre, der udskiller gullig væske ved gennemskæring, ved den ubehagelige lugt og ved den afvigende frugtform.
- Conium maculatum: skarntyde, indført fra Europa og i dag vidt udbredt naturaliseret, indeholder piperidinalkaloider som coniin, og alle dele er giftige. Genkendes på de lilla pletter eller striber på den glatte stængel, på lugten der beskrives som harsk eller som gnaverurin, på den hvide, kødfulde rod med tynd skal, og på fraværet af den fibrøse krone ved basen.
Det mest pålidelige praktiske kriterium kombinerer tre observationer: kronen af gråligt fiberværk øverst på rodstokken, den mørkebrune, rynkede yderbark og den umiskendelige aroma af selleri med sødlig undertone. Ingen af de to gifttyder udviser denne kombination. Stængel med lilla pletter og hvid rod uden behagelig duft indikerer en giftig plante, og den gældende regel blandt feltbotanikere er, at enhver tvivl om identiteten af en vild skærmplante afgør sagen.
Fytokemi
Rodstokken af Ligusticum porteri ophober æterisk olie i sekretkanaler fordelt over cortex, og det er i denne fraktion, at den analytiske interesse for arten koncentrerer sig. De hidtil karakteriserede forbindelsesklasser er følgende.
- Phenolsyrer: ferulasyre, identificeret i de organiske ekstrakter af rodstokken.
- Cumariner og furanocumariner: til stede i beskeden koncentration sammenlignet med andre Apiaceae.
- Dimere phthalider: diligustilid, riligustilid og tokinolid B, karakteriseret ud fra hexanekstrakter af rodstokken.
- Monomere phthalider: Z-ligustilid, Z-butylidenphthalid og senkyunolid F og I.
- Polyacetylener: falcarinol og falcarindiol, en almindelig forekomst i familien.
- Terpener: blandt de kulbrinteholdige monoterpener dominerer sabinen og p-cymen; trans-sabinylacetat udgør størstedelen af den oxygenerede monoterpenfraktion. Alfa-pinen, beta-phellandren og myrcen indgår også i analyserne.
I analyser af rodæterisk olie udgjorde phthalider omkring 44% af totalen og sesquiterpener omkring 11%. Kvantificering ved højtryksvæskekromatografi viste indhold af Z-ligustilid mellem 0,15% og 2,5% og af diligustilid mellem 0,002% og 1,0%, brede intervaller der afspejler variation i herkomst, materialets alder og tørringsbetingelser. Fordelingen i planten er ujævn: rodstok og rod koncentrerer den flygtige fraktion, mens blade og frugter udviser mindre rige profiler, selvom frugterne også har veludviklede oliekanaler.
Historie og etnobotanik
Arten fik en formel beskrivelse i 1888, baseret på materiale fra Rocky Mountains i Colorado, men havde allerede cirkuleret i århundreder i regionens folks botaniske viden. Etnografiske optegnelser samlet gennem det 20. århundrede dokumenterer brugen af rodstokken hos nationer i det sydvestlige USA, herunder apacher, diné, tarahumara og pueblo-folk, samt dens senere inkorporering i praksis hos de spansktalende samfund i New Mexico, hvor planten blev kendt som oshá de la sierra.
Den etnobotaniske litteratur registrerer, at rodstokken blev tilberedt i form af infusioner og tinkturer, og at de hule stængler blev brugt til rygning i visse sammenhænge. Kilder fra det 20. århundrede beskriver også udvortes brug af rodtilberedninger. Dette er historiske optegnelser over praksis dokumenteret af etnografer, ikke beskrivelser af nuværende procedurer.
Betegnelsen “bjørnerod” har observationel oprindelse. Beretninger indsamlet blandt folk i Rocky Mountains beskriver bjørne, der graver og tygger rodstokkene ved fremkomsten fra dvale og gnider materialet ind i pelsen. Observationen cirkulerede bredt og blev optaget både i indianske fortællinger og i det 19. århundredes naturhistoriske litteratur, hvilket gjorde den til det mest citerede træk ved planten uden for botaniske kredse.
Fra den akademiske botaniks side kom arten på det amerikanske kommercielle radar i slutningen af det 20. århundrede. Den voksende efterspørgsel efter tørret rod gennem 1990’erne fik den amerikanske skovstyrelse til i 1999 at indføre et treårigt indsamlingsmoratorium i to af sine administrative regioner, en episode der markerer begyndelsen på behandlingen af Ligusticum porteri som et bevaringsspørgsmål.
Bevaring
Den globale vurdering fra International Union for Conservation of Nature klassificerede arten som Ikke Truet (LC) i 2020, baseret på udbredelsens omfang og den relative talrighed af kendte populationer. Denne vurdering eksisterer side om side med mere forsigtige regionale vurderinger. NatureServe tildelte arten kategorien G3, sårbar på globalt niveau, og klassificerer populationerne som S3 i Colorado og Utah, og S4 i Wyoming.
Ligusticum porteri optræder ikke i noget CITES-bilag. Den blev foreslået til overvejelse i år 2000, baseret på en rapport udarbejdet af et universitetsprogram for bevaringsbiologi, men forslaget gik ikke videre. Den optræder heller ikke på føderale lister over truede arter i USA, og ingen stat i det vestlige Nordamerika forbyder indsamling på statslige arealer. Organisationen United Plant Savers holder den på sin liste over risikoarter.
De dokumenterede trusler lægger sig ugunstigt sammen:
- Destruktiv indsamling: udvinding af rodstokken fjerner hele individet, og den langsomme vækst betyder, at populationsgenopretning tager mere end et årti.
- Skovhugst og terrænkøretøjer: ændrer kronedækket og komprimerer jorden i de subalpine enge.
- Klimaændringer: opvarmningen har tendens til at indsnævre det egnede højdebælte og presse det levedygtige levested til stadig snævrere niveauer.
- Overgræsning: husdyrs afgræsning reducerer den i forvejen naturligt sparsomme frøproduktion.
En underliggende forværrende faktor er datamangel. Der findes ingen omfattende overvågningsprogrammer for artens populationer, og de tilgængelige oplysninger dækker dens udbredelsesområde ujævnt. Indledende studier tyder på, at populationerne kan tåle lave niveauer af rodstokfjernelse, men langtidseffekterne er fortsat dårligt karakteriseret.
Vidste du
- Alle nordamerikanske stednavne, der indeholder elementet “Oshá”, ligger i New Mexico, uvægerligt tæt på historiske spansktalende samfund, hvilket har hjulpet lingvister med at spore navnets regionale udbredelse.
- Arten er en af de få planter af kommerciel interesse, der konsekvent har modstået alle seriøse forsøg på landbrugsmæssig domesticering, i en grad hvor den anbefalede forvaltningsstrategi er at så inden for de vilde populationer selv.
- Rodstokkens aroma er så specifik, at den fungerer som et mere pålideligt feltidentifikationskriterium end noget bladtræk, en usædvanlig situation i beskrivende botanik.
- Indsamlingsmoratoriet indført i 1999 af den amerikanske skovstyrelse fik en varig kommerciel effekt: handlen med tørret vild rod nåede aldrig igen op på blot 10% af de tidligere mængder, og dyrket materiale vandt terræn på markedet fra 2002.
- Slægten Ligusticum, udbredt over hele den tempererede nordlige halvkugle, viser sig i molekylære analyser at være kunstig, og omfordelingen af dens arter til andre slægter er en af de igangværende omlægninger i Apiaceaes systematik.
- Interesseret i flere botaniske profiler på platformen? Se også profilen af Curcuma longa, en lige så veldokumenteret art med en helt anden økologi.
Bemærk: dette indhold er informativt og erstatter ikke professionel sundhedsrådgivning. Kontakt en læge eller fytoterapeut, før du bruger lægeplanter, især under graviditet, amning eller ved brug af medicin.
Referencer og videnskabelige studier
Se Alle 13 Citerede Kilder
Peer-Reviewed Videnskabelige Studier (1)
- PEER NatureServe. NatureServe Explorer: Ligusticum porteri. Arlington, Virginia. ↗
Supplerende Læsning (12)
- 2014 Collin, G.; Gagnon, H. Composition of the essential oil and the hydrosol of the roots of Ligusticum porteri. American Journal of Essential Oils and Natural Products. 2014.
- Coulter, J. M.; Rose, J. N. Revision of North American Umbelliferae. Crawfordsville. 1888.
- 1992 Delgado, G. et al. Phthalides and Monoterpenes of the Hexane Extract of the Roots of Ligusticum porteri. Heterocycles. 1992.
- Flora of North America Editorial Committee. Ligusticum porteri. Flora of North America North of Mexico, vol. 13. Oxford University Press, New York og Oxford.
- International Plant Names Index (IPNI). Ligusticum porteri J.M.Coult. & Rose. Royal Botanic Gardens, Kew; Harvard University Herbaria; Australian National Herbarium. ↗
- 2020 IUCN. The IUCN Red List of Threatened Species: Ligusticum porteri. Version 2020. ↗
- 2011 León, A. et al. Phthalides and other constituents from Ligusticum porteri. Natural Product Research, 25(13). 2011.
- Mathias, M. E.; Constance, L. Studies in the Umbelliferae. Bulletin of the Torrey Botanical Club, 68, 123. 1941.
- Pollinator Partnership. Medicinal Plant Fact Sheet: Ligusticum porteri / Osha. San Francisco, Californien.
- POWO. Plants of the World Online: Ligusticum porteri J.M.Coult. & Rose. Royal Botanic Gardens, Kew. ↗
- Rydberg, P. A. Flora of the Rocky Mountains and Adjacent Plains. New York. 1917.
- United Plant Savers. Species At-Risk Assessment: Osha, Ligusticum porteri. Rutland, Ohio. ↗