Zea maysは栽培植物の中でも特異な位置を占めている。人為選抜によってこれほど深く改変され、単独で繁殖する能力を失った禾本科植物は他に存在しないからである。これは大型の直立性一年草で雌雄同株、イネ科に属し、メソアメリカ原産であり、苞葉に包まれた雌穂は誰かが脱穀し再び播種しなければ、種の存続そのものが成り立たない完全な栽培依存植物である。
イネ科は約780属、1万1千種以上を含み、その中にはイネ、サトウキビ、コムギも含まれる。この膨大な多様性の中で、トウモロコシは類を見ない生殖構造によって際立っている。雄花は茎の頂部に位置し、農家が雄穂と呼ぶ開いた円錐花序に集まる一方、雌花は苞葉の層に守られた側生の雌穂に集中する。雌穂の先端から現れる長く絹のような柱頭が、植物分類の検索表を一度も開いたことのない人にとっても即座に識別を可能にする一連の特徴を完成させる。
以下のプロフィールは植物そのものを扱う。国際データベースで確認された分類学的位置づけ、類似する禾本科植物と区別する形態、圃場での生育相の挙動、文献に記載された化学組成、そして小さな穂をつけるメキシコの野草を地球上で最大の生産量を誇る農作物へと変えた長い栽培化の歴史をまとめる。
Zeaという属名は穀物を意味する古代ギリシャ語zeiaに由来し、同じ属には近縁の野生種であるテオシントの数種も含まれる。
Zeaの分類学的位置づけ
承認された学名はZea mays L.であり、1753年にカール・フォン・リンネによってSpecies Plantarum(第2巻、971ページ)で発表された。International Plant Names Indexの照会は二名法、命名者、原記載の出典を確認し、Plants of the World Onlineも同じ名称を承認名として維持しており、再分類の進行中の提案はない。完全な階層分類は以下にまとめる。
- 界: Plantae(植物界)
- 門: Magnoliophyta(被子植物)
- 綱: Liliopsida(単子葉植物)
- 目: Poales(イネ目)
- 科: Poaceae Barnhart(イネ科)
- 亜科: Panicoideae(キビ亜科)
- 連: Andropogoneae(モロコシ連)
- 属: Zea L., 1753
- 種: Zea mays L., 1753
承認されている異名
本種の異名は少なく、早くから記載され常に同じ名称で認識されてきた植物として予想通りである。Plants of the World Onlineは異型異名および同型異名を5件登録している。
- Mays americana Baumg.
- Mays zea Gaertn.
- Mayzea cerealis Raf.
- Thalysia mays (L.) Kuntze
- Zea segetalis Salisb.
承認されている亜種
現在3亜種が認められており、そのうち栽培トウモロコシに相当するのは1つのみである。残る2つはテオシントと呼ばれるメキシコの野生イネ科植物で、硬化した小穂を持ち、長らく別属の植物として扱われてきた。
- Zea mays subsp. huehuetenangensis (Iltis & Doebley) Doebley、グアテマラ北西部
- Zea mays subsp. mays、栽培トウモロコシ
- Zea mays subsp. parviglumis Iltis & Doebley、メキシコのバルサス川流域
記しておくべき活発な分類上の相違がある。メキシコ中央高原のテオシントは農学文献の多くでZea mays subsp. mexicanaとして扱われるが、Plants of the World Onlineはこれを独立種Zea mexicana (Schrad.) Kuntzeに昇格させている。異なる時代の文献を参照する者は両方の表記に出会うことになるが、それを採用する体系の中ではどちらも誤りではない。
語源
属名Zeaはギリシア語のzeiáに由来し、地中海古代において栽培された穀物、おそらく皮性コムギの一種を指す語であった。リンネはギリシアの著者たちが見たこともない種を命名するために古典的語彙を援用するという18世紀植物学に一般的な手法で、この語をアメリカ大陸の植物に転用した。種小名mayは全く異なる由来を持つ。カリブ海のタイノ族がこの植物に与えたmahizという名称に由来し、カスティーリャ語にmaízとして取り入れられ、そこから他のヨーロッパ諸語へと伝わった。
胚乳型グループ
栽培亜種の中では、胚乳の変異が正式な分類学と並行する園芸学的な命名法を支えている。これらのグループは承認された分類群ではなく実用上の区分であり、育種と種子取引において現在も使用され続けている。
- デント種: アンデスの品種に伝統的な、粉質で柔らかい胚乳を持つ
- ワキシー種: ほぼアミロペクチンのみからなるでんぷんを持ち、工業用でんぷんの原料となる
- デントコーン: 粒の先端に特徴的な窪みがあり、商業生産で優勢
- スイート種: 糖からでんぷんへの変換を阻害する変異を持ち、未成熟のまま緑色で消費される
- フリント種: ガラス質で硬い胚乳を持ち、ブラジルとアルゼンチンで優勢
- ポップコーン種: 小粒でガラス質、内部水分が加熱により膨張を引き起こす
- 有稃種: 各粒が独自の穎に包まれた原始的な形態で、商業栽培はされていない
形態学的記述
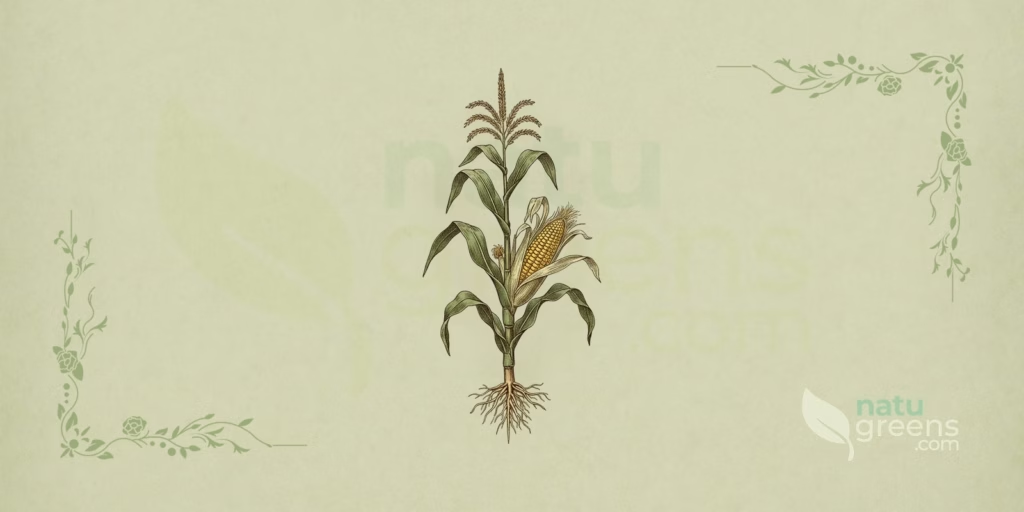
トウモロコシは1.5から4メートルの高さに達する直立性の一年草本で、長期型の熱帯品種は5メートルを超える。頑丈な草姿は髄柔組織で満たされた円柱状の充実した稈に支えられており、これは一般に禾本科植物と結び付けられる中空の茎という通念に反する。この植物は雌雄同株で、単性花が別々の花序に分かれる点で、大多数の禾本科植物とは異なる。
葉
葉は互生かつ二列に配置される、すなわち稈に沿って二つの対向する面に分かれて並び、上から見ると若い植物に扁平な輪郭を与える。各葉は長さ50から120センチメートル、幅5から12センチメートルで、披針形の葉身、長く尖った先端、全縁からわずかに波打つ縁を持つ。葉脈は平行脈で、白みを帯びた顕著な中肋が野外での識別形質となる。葉鞘は稈を完全に包み込み、縁は重なり合い、葉舌は膜質で短く2から5ミリメートルである。成熟した植物は12から22枚の葉を付け、その数は品種と生育期間の長さによって異なる。
花
性の空間的分離が本種の最も顕著な特徴である。雄穂は10から25本の側枝を持つ頂生の円錐花序で、それぞれ3本の葯を持つ2個の雄花からなる小穂で構成され、開花期には一株あたり数千万個の花粉粒を放出する。一方、雌穂は稈の中間三分の一の位置に着生する腋生花序で、葉状の苞葉に包まれ、常に偶数列、通常8から24列に並んだ200から1000個の雌花を持つ。柱頭は10から30センチメートルの糸状で、俗にコーンシルクと呼ばれ、それぞれが個々の花に属するため、一本の糸が花粉を捕獲できなければ、その粒は形成されない。
果実と種子
果実は穎果で、果皮が種皮と癒合し全体が裂開しない一つの単位として振る舞う、イネ科に特徴的な果実型である。粒は5から15ミリメートルで、雌穂を支える木質化した中心軸である穂軸の上に偶数列に並ぶ。色は果皮とアリューロン層の色素沈着により、白や黄色からオレンジ、赤、紫、青、ほぼ黒に至る顕著な幅を持つ。千粒重はデント種およびフリント種で通常250から400グラムであり、平均的な商業用雌穂は400から600粒を生産する。
根と茎
根系は繊維状で、3つの連続する機能群に組織化される。種子根は最初のもので胚由来であり、第6葉期頃まで幼植物を支え、その後重要性を失う。節根は第3葉期から地下の節から発生し、側方に最大1メートル広がり、深さ約1.5メートルまで下降し、成熟した根系のほぼ全てを担う。最後に、支持根と呼ばれる不定根が地表に露出した下部の節から発生し、植物を土壌に固定する。これは風雨の中で数メートルの生体量を直立させ続けなければならない植物にとって決して些細な機能ではない。稈には明瞭に区切られた節があり、節間は不均等に伸長し、基部で短く雄穂に向かって次第に長くなる。
分布と生育地
本種の起源は現在のメキシコ、ゲレーロ州のバルサス川流域に限られ、季節的に乾燥した気候のこの地域では祖先型テオシントが今も天然の集団として存在する。しかし栽培亜種は通常の意味での自生域を持たない。これは栽培品であり、人が植えた場所にのみ存在するからである。メソアメリカからこの植物はヨーロッパ人の到来以前にアメリカ大陸全域に広がり、1493年以降は数十年のうちにヨーロッパ、アフリカ、アジアに到達した。
今日トウモロコシは海抜0メートルからアンデスの約3800メートルの標高まで、各高度帯に適応した品種によって栽培されている。本種は完全な日照を要求し、栄養成長期には摂氏25から30度の気温によく反応し、発芽には土壌温度が少なくとも10度必要である。生育期のいかなる段階でも霜には耐えない。好まれる土壌は深く肥沃で排水良好、保水力が高くpHは5.5から7.0で、窒素要求量は一年生作物の中でも最も高い部類に入る。90から150日続く生育期間を通じて必要な降水量はおよそ500から800ミリメートルで、開花の2週間前から2週間後までの臨界期に特に集中する。
分布に関する記述で見落とされがちな点がある。トウモロコシはほとんど野生化しない。畑の縁や空き地に自生個体が現れることはあるが、雌穂を包む苞葉が粒の脱落と拡散を妨げるため、集団が世代を超えて維持されることはない。栽培地外にトウモロコシが見られる場所には、ほぼ必ず近くに播種された畑があり、その存在は一時的なものにすぎない。
栽培
繁殖は種子のみによって行われ、実用上の栄養繁殖の手段はない。播種は3から5センチメートルの深さで行われ、密度は穀実生産で1ヘクタールあたり5万5千から8万株、サイレージ用途では6万から7万株で、条間は通常0.45から0.90メートルである。発芽は摂氏25度の土壌で5から10日を要する。
この作物は養分に対してほぼ攻撃的なまでに要求が高い。窒素は最も決定的な要因であり、圃場での推奨量は1ヘクタールあたり150から250キログラムで、播種時の基肥と、第4から第6葉期および第8から第10葉期の2回の追肥に分けて施用される。リンとカリウムはこれよりはるかに少ない量で計画を補完する。水分不足地域では灌漑が不可欠となり、ブラジル中央部ではセンターピボット灌漑が主流のシステムである。ダイズとの輪作はセラード地域の農業暦全体を形作っており、豆類の収穫直後にその区画を二期作トウモロコシが占める。
害虫の中では、ツトウガ(Spodoptera frugiperda)が南北アメリカで経済的損失が最も大きく、まず巻葉部を、次に雌穂を加害する。トウモロコシヒメヨコバイ(Dalbulus maidis)はブラジルで最近、萎縮病を引き起こすファイトプラズマ様菌を媒介することで重要性を増しており、コーンイヤーワーム(Helicoverpa zea)は先端部の粒を損傷する。糸状菌病害の中では、灰色葉斑病(Cercospora zeae-maydis)、ポリソラさび病(Puccinia polysora)、ターシカム葉枯病(Exserohilum turcicum)が顕著で、いずれも葉部病害であり、成熟前に進行すると子実肥大に損害を与える。
穀実の収穫は水分含量が18から23パーセントの範囲まで低下したときに行われ、これは粒の基部に黒層が形成される時期と一致し、生理的成熟が完了し植物が光合成産物の種子への転流を終えたことを示す目視可能な合図である。
フェノロジー
開花は播種後50から100日の間に起こり、品種の生育期間と地域の積算温度によって幅広く変動する。本種は顕著な雄性先熟を示す。すなわち同一植物の柱頭が受容可能になる前に雄穂が花粉を放出し、この数日のずれが繁殖システムを他家受粉へと押しやる。受粉は風媒で、花粉は豊富であるものの重く短距離しか移動しないため、それぞれの圃場が比較的閉じた繁殖集団を形成する。
受精後、子実肥大には45から65日を要し、乳熟期、糊熟期、粉熟期という連続した段階を経て生理的成熟に至る。一方で自然な散布は単純に存在しない。鳥や昆虫から雌穂を守る苞葉は同時に粒を穂軸に閉じ込めてしまい、人の介入がなければ雌穂全体が落ちた場所で腐敗する。この植物と農民との相互依存関係は幾千年に及ぶ選抜の帰結であり、本種の生物学的特徴の中で最も徹底したものである。
近縁種と誤認
Zea属は、トウモロコシのほかに、まとめてテオシントと呼ばれる野生のメソアメリカ産イネ科植物群を含む。主なものは、1979年にようやく記載されたハリスコ州産の二倍体多年生テオシントであるZea diploperennis Iltis, Doebley & R.Guzmán、グアテマラとホンジュラスの一年生であるZea luxurians (Durieu & Asch.) R.M.Bird、ニカラグアの沿岸平野に限られ耐水性を持つZea nicaraguensis Iltis & B.F.Benz、同じくハリスコ州産の四倍体多年生テオシントであるZea perennis (Hitchc.) Reeves & Mangelsd.である。これらはいずれも雌花序によってトウモロコシと容易に区別できる。テオシントの雌花序は少数の硬化した小穂からなる脆い穂で、包む苞葉も肉質の穂軸も持たない。
圃場での実際の誤認は幼若期に起こる。トウモロコシがまだ雄穂も雌穂も形成していない段階で、他の大型イネ科植物がこれに似て見えるのである。注意すべき事例は三つある。
- サトウキビ(Saccharum officinarum): 多年生で、稈はショ糖に富む組織で満たされ、葉はより細くトウモロコシの幅広い白色中肋を欠く。側生の雌穂を決して形成しない。
- ジョンソングラス(Sorghum halepense): 若いトウモロコシに似た葉を持つ多年生根茎性の草。本種の葉と再生芽にはシアン配糖体が含まれ、特に干ばつや霜の後の再生芽を牛や馬が摂取すると青酸中毒を引き起こす。確実な識別はトウモロコシに存在しない太い根茎による。
- モロコシ(Sorghum bicolor): 草姿は似ているが、開いた雄穂ではなく密な頂生円錐花序で終わり、腋生の雌穂を形成せず、葉と稈にしばしば白っぽいろう質層を示す。
絶対的な診断形質は、頂生の雄性穂と長い柱頭を持つ腋生の雌性雌穂の組み合わせのままである。この二つの構造を併せ持つイネ科植物は他に存在しない。
フィトケミストリー
組成は分析する器官によって大きく異なる。成熟した粒はでんぷんが優勢で、乾燥重量の60から72パーセントを占め、慣行型ではアミロースとアミロペクチンがおよそ1対3の比率で分かれるが、この比率はワキシー種ではほぼ完全にアミロペクチンに偏る。タンパク質画分は6から12パーセントで、優勢な貯蔵タンパク質であるゼインは必須アミノ酸のリシンとトリプトファンに著しく乏しいことで知られる。胚芽に濃縮された油分は3から5パーセントを占め、リノール酸に富む。
色素は粒の色に対応する。ルテインやゼアキサンチンなどのカロテノイドは黄色種やオレンジ色種の胚乳に蓄積し、一方シアニジン3グルコシドやペラルゴニジン型のアントシアニンは紫、赤、青の品種の果皮とアリューロン層に沈着する。果皮の細胞壁では、フェルラ酸がアラビノキシランに結合した状態で、穀物としては高い濃度で存在する。
柱頭は独自の成分プロファイルを蓄積し、アピゲニン、ルテオリン、マイシンなどのフラボノイド、多糖粘質物、高濃度のカリウム、低含量のサポニン、乾燥物質の1から3パーセントの範囲のタンニンを含む。一方、幼植物はDIMBOAを含むベンゾオキサジノイドを合成し、これらは化学生態学の文献において植食性昆虫に対する植物の防御と関連付けられ、その濃度は組織の老化とともに低下する。
組成に関する2つの事実は直接的な実用上の帰結を持ち、明示的に記しておく価値がある。第一に、粒中のナイアシンは主に結合型、すなわちニアシチンとして存在し、水中での加熱調理ではこれが遊離しないことである。第二に、高水分または換気不良の条件で貯蔵された粒はAspergillus属やFusarium属の糸状菌に汚染され、アフラトキシンやフモニシンなどのマイコトキシンを産生することである。これらの毒素は通常の加工工程の熱に耐え、汚染は味や匂いでは感知できないため、貯蔵時の水分管理はほぼすべての生産国で衛生法規の対象となっている。
歴史と民族植物学
栽培化されたトウモロコシの最古の証拠はバルサス川流域の考古学遺跡から出土しており、製粉道具から回収されたでんぷん粒とフィトリスにより、およそ8700年前と年代測定されている。野生の祖先はZea mays subsp. parviglumisというテオシントで、その穂は硬い穎に包まれた5から12粒を付ける植物である。この草と現代の雌穂との形態的隔たりは膨大であるが、集団遺伝学の研究により、この変化はごく少数の調節遺伝子の変異を伴っていたことが示されている。中でも重要なのは、側枝の分岐を抑制し植物のエネルギーを少数の大きな雌穂に集中させたteosinte branched1と、硬化した穎を縮小させ粒を露出させたteosinte glume architecture1である。
メソアメリカの諸民族にとって、トウモロコシは単なる食料ではなかった。16世紀に記録されたキチェ・マヤの聖典『ポポル・ヴフ』は、粘土と木による先行する試みが失敗した後、最終的な人類はトウモロコシの練り粉から形作られたと語り、トウモロコシの神を表す図像は古典期マヤの図像学に何世紀にもわたって登場する。アステカ人は儀式暦と農業サイクルを同じ植物の周りに組織していた。
技術的観点から見て、メソアメリカによる最も重要な貢献はニシュタマル化であった。これは製粉の前に、石灰または焚き火の灰から得たアルカリ溶液に粒を浸して煮る工程である。このアルカリ処理は果皮を緩め、生地の質感を変化させ、それまで利用できなかったナイアシンを遊離させた。この技術を採用した民族は、後にヨーロッパを襲うことになる流行病を経験することなく、何千年もの間トウモロコシを中心とした食事を維持した。
この歴史はヨーロッパにおいて暗い対極を持つことになった。トウモロコシは1493年のコロンブスの航海の後にこの大陸に到達し、16世紀から17世紀にかけて地中海沿岸、アフリカ、アジアへと急速に広まったが、アルカリ処理はこの種子とともには伝わらなかった。北イタリア、南フランス、バルカン半島、そして後には米国南部の住民は、製粉と水での調理のみで調製されたトウモロコシに依存するようになり、18世紀から20世紀にかけて壊滅的なペラグラの流行に見舞われた。この欠乏症の栄養学的原因は、ジョセフ・ゴールドバーガーとその後継者たちの研究によって1930年代になってようやく確立された。この出来事は今日、食文化がいかに不完全な形で移植されうるかを示す典型例となっている。
カール・フォン・リンネは1753年、ヨーロッパの庭園で栽培された標本を用いてこの種を正式に記載した。それは植物が大西洋を渡ってからほぼ3世紀後、そしてゲレーロでの栽培化から8千年以上を経た後のことであった。
保全
栽培トウモロコシはIUCNレッドリストにおいて個別評価を持たない。これは農業管理下でのみ存在し、その存続が天然集団に依存しない栽培品にとって通常の状況である。本種はまたCITESのいかなる附属書にも記載されていない。したがって保全上の懸念は、性質の全く異なる二つの前線に向けられる。
第一は野生近縁種の状況である。Zea diploperennisはレッドリストで絶滅危惧種として記載されており、メキシコのシエラ・デ・マナントラン地域のわずか数平方キロメートルで生き残っている。この地域は、まさにこの生育のためにバイオスフィア保護区に転換された。Zea nicaraguensisはさらに不安定な状況にあり、推定個体数数千のみがニカラグアの沿岸平野のごく限られた帯状地域に集中し、湿地の排水と都市の拡大にさらされている。その他のテオシント集団は生育地の分断化、放牧、農業フロンティアの拡大に苦しんでいる。
第二の前線は栽培種自体の中での遺伝的浸食である。在来品種が均質な商業ハイブリッドに置き換えられたことで、世界規模の育種に利用可能な遺伝的基盤が狭まった。この対応は生息域外保全を通じて行われており、メキシコのCIMMYT遺伝資源バンクはトウモロコシとテオシントの系統について世界最大のコレクションを維持している。また、農場内保全もブラジルではEmbrapaのプログラムや、南部および北東部の在来種子を守る農民ネットワークによって支えられている。
豆知識
- 雌穂の粒列数は常に偶数であり、これは各雌性小穂が隣接する2個の花を生じるという発生パターンの結果である。奇数列の雌穂はほぼ存在しない。
- コーンシルクの一本一本は単一の花に対応し、粒が形成されるにはその糸が少なくとも一粒の花粉を捕獲する必要がある。受粉不良の雌穂に見られる不規則な欠粒は、どの柱頭が花粉を得られなかったかを正確に映し出している。
- トウモロコシはC4光合成を行い、これは二酸化炭素を濃縮し光呼吸を抑制する仕組みである。これにより、コムギのようなC3型穀物が効率を失う高温・強光条件下でのこの作物の高い生産性が説明される。
- バーバラ・マクリントックは、トウモロコシにおける粒色の不規則な遺伝を研究する中で、後にトランスポゾンと呼ばれる可動遺伝因子を発見し、この研究により最初の発表から30年以上を経た1983年にノーベル生理学・医学賞を受賞した。
- テオシントはあまりに長い間独立した属とみなされてきたため、これをZea属に統合することは今なお著者の間で意見の相違を生んでおり、トウモロコシがこれに由来するという仮説は、1990年代の分子解析がそれを裏付けるまで、科学界の大部分から退けられていた。
ご注意:本コンテンツは情報提供を目的としており、医療専門家の助言に代わるものではありません。薬用植物を使用する前に、特に妊娠中、授乳中、または薬を服用中の場合は、医師または専門家にご相談ください。
参考文献と科学研究
査読済み科学研究 (2)
- DOI2004 Doebley, J. F. The genetics of maize evolution. Annual Review of Genetics, 38, 37-59. 2004. ↗
- DOI2009 Piperno, D. R., Ranere, A. J., Holst, I., Iriarte, J., Dickau, R. Starch grain and phytolith evidence for early ninth millennium B.P. maize from the Central Balsas River Valley, Mexico. Proceedings of the National Academy of Sciences, 106(13), 5019-5024. 2009. ↗
補足資料 (5)
- CIMMYT. Maize Germplasm Bank. Centro Internacional de Mejoramiento de Maíz y Trigo, El Batán, メキシコ. ↗
- International Plant Names Index (IPNI). Zea mays L. Royal Botanic Gardens, Kew; Harvard University Herbaria; Australian National Botanic Gardens. ↗
- IUCN. The IUCN Red List of Threatened Species. International Union for Conservation of Nature. ↗
- Linnaeus, C. Species Plantarum, vol. 2, p. 971. ストックホルム. 1753. ↗
- POWO. Plants of the World Online. Zea mays L. Royal Botanic Gardens, Kew. ↗