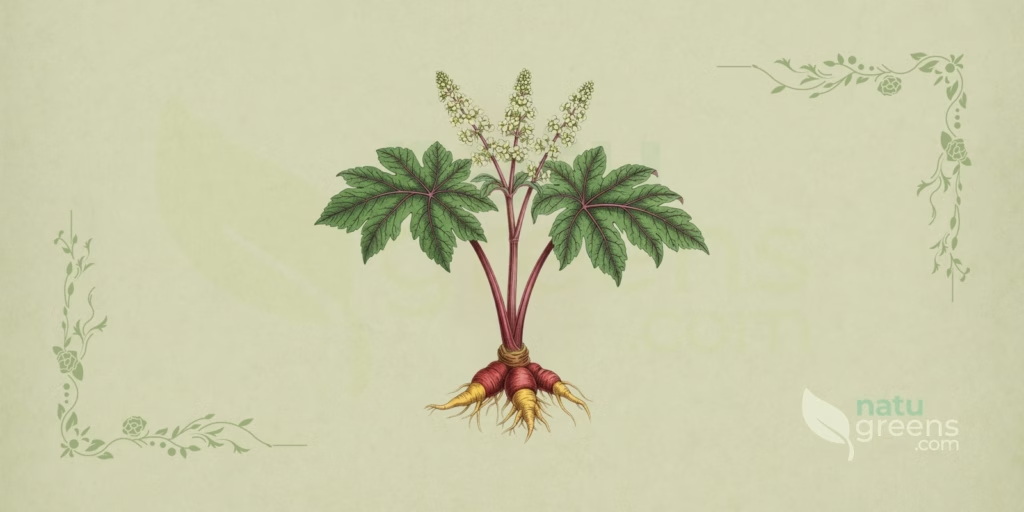
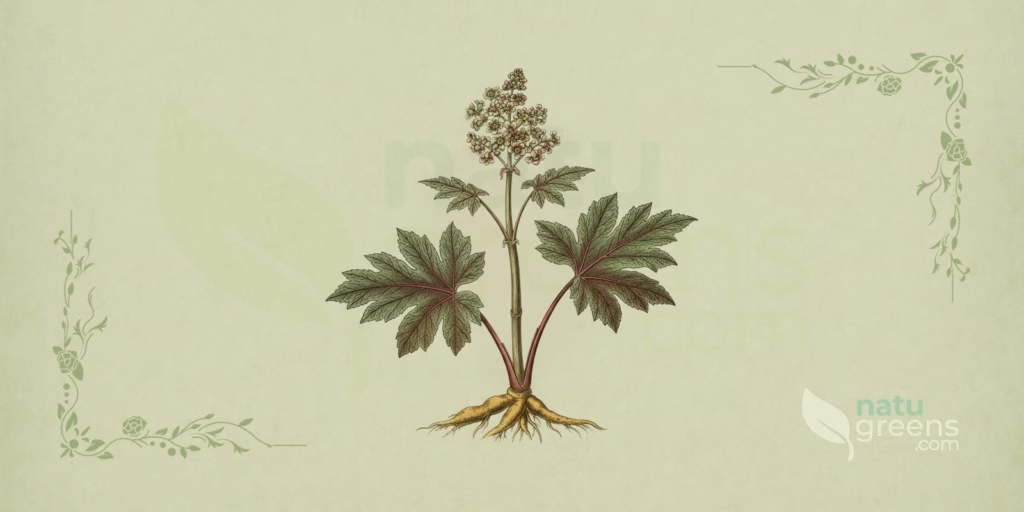
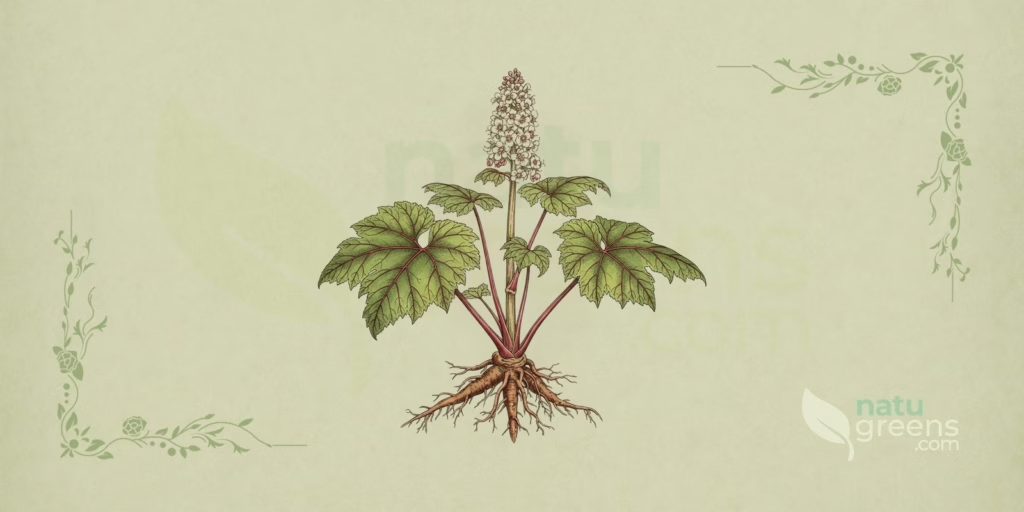
Rheum tanguticumは、中国北西部の山地とチンハイ・チベット高原東縁部に固有の、タデ科の大型多年草である。オレンジ色の内部を持つ太い根茎の上に幅広の葉から成る根生葉のロゼットを形成し、夏には2メートルを超えることもある中空の花茎を伸ばし、小さな赤みを帯びた花からなる密な円錐花序を頂く。同じ科にはソバ、Rumex属のスイバ類、そしてヨーロッパの庭で栽培されるルバーブが含まれる。
本種を属内で際立たせているのは葉の切れ込みである。近縁種の多くが幅広い裂片を持つ掌状の葉であるのに対し、本種では中央の3裂片が羽状深裂し、主脈近くまで細く鋭い裂片に分かれる。この特徴から中国語名「鸡爪大黄」(ジージュアダーホアン、「鶏の爪の大黄」の意)が付けられ、また本種を独立種として認めるかどうかという、一世紀以上にわたり結論の出ていない植物学的議論を支える形質でもある。
本プロフィールは、この分類群について植物学文献が記録している事柄、すなわち分類学的位置づけと異名、比較形態学、標高別の生態、栽培、フェノロジー、近縁種との識別、記述的な化学組成、採集の歴史、保全状況をまとめたものである。
Rheumは種間交雑が起こりやすく、野生集団における種の境界の判定が難しいことで知られる属である。
Rheumの分類
学名はRheum tanguticum (Maxim. ex Regel) Balf.で、1879年に『Transactions of the Botanical Society of Edinburgh』で発表され、IPNIには識別番号696803-1で登録されている。基礎異名はRheum palmatum var. tanguticum Maxim. ex Regelで、これが複合的な命名者表記の理由である。アイザック・ベイリー・バルフォアによる種への昇格は決して満場一致の見解ではなく、その後の多くの植物誌は本タクソンをRheum palmatumの変種または亜種として扱い続けた。Flora of China自体も、本種を採用しつつ、執筆者の一人がこれをR. palmatumの異名とみなしている旨を注記している。
- 界: 植物界 Plantae
- 門: 維管束植物門 Tracheophyta
- 綱: 双子葉綱 Magnoliopsida
- 目: ナデシコ目 Caryophyllales
- 科: タデ科 Polygonaceae Juss., 1789
- 亜科: タデ亜科 Polygonoideae
- 連: Rumiceae(古い文献ではRheeaeを使用)
- 属: Rheum L., 1753(ダイオウ属)
- 種: Rheum tanguticum (Maxim. ex Regel) Balf., 1879
異名と種内分類群
承認されている異名は、本タクソンがR. palmatumの下位分類として扱われていた時期のものである。
- Rheum palmatum subsp. tanguticum (Maxim. ex Regel) Stapf, 1930
- Rheum palmatum var. tanguticum Maxim. ex Regel, 1874(基礎異名)
種内には、草丈と毛の密度によって区別される2変種が認められている。
- Rheum tanguticum var. liupanshanense C. Y. Cheng & T. C. Kao, 1975:草丈0.6から1メートル、密に毛が生えた茎、分枝の少ない花序
- Rheum tanguticum var. tanguticum:草丈1.5から2メートル、茎は無毛か上部の節のみ剛毛状、分枝の多い花序
学名の語源
属名Rheumは古代ギリシア語のrhaに由来し、大陸を通るルートで地中海世界に到達した乾燥根茎を指す古典的な呼称である。古い時代の著者はこの語をヴォルガ川のギリシア名Rhaと結びつけたが、この語源については今なお議論がある。種小名tanguticumは、チベット・ビルマ語系の言語を話し西夏帝国を建てた民族タングートに由来し、彼らが暮らした甘粛・青海の高地こそが、本種の最初の学術的な採集地であった。
形態学的特徴
草丈0.6から2メートルに達する頑丈な多年草で、冬は地下部のみとなって過ごし、春に根茎の芽から萌芽する。草姿は幅広い根生葉のロゼットで、そこから直立した中空で細かい溝のある単一の花茎が伸び、個体によって無毛のものと有毛のものがある。この構造は、短い生育期に適応した植物であり、数週間のうちに大きな葉と大規模な花序の生産を集中させる。
葉
根生葉は本種の同定上の決め手となる形質である。葉身は円形から広卵形で、長さ30から60センチメートル、やや心形の基部から出る5本の主脈を持ち、掌状に5裂する。中央の3裂片は羽状深裂し、すなわち中肋近くまで細い裂片に分かれ、先端は細く鋭くとがり、近縁種に比べて全体としてはるかにレース状の外観を葉に与える。裏面には毛があり、表面は乳頭状からざらついた表面を持ち、触れるとやや粗い。葉柄は頑丈でしばしば赤みを帯び、特に若い個体や強い日射にさらされた個体群で顕著である。茎葉は少数で著しく小さく、これも深く切れ込み、着生部で茎を包む、外側に毛のある幅広い托葉鞘を伴う。
花
花序は集散状に集まる枝を持つ大型の頂生円錐花序で、葉群の上に高く伸びる。個々の花は小さく近くで見てもほとんど目立たないが、その数の多さから全体としては相当な視覚的効果を生む。各花は2輪に配置された6枚の円形の花被片を持ち、内側の3枚が大きく約1.5ミリメートルである。色は紫赤色から淡いピンクまで変化し、まれに緑がかることもある。花柄は細く、長さ2から3ミリメートルで、中央より下で関節する。子房は広卵形で、花柱は短く、柱頭は膨らんでいる。
果実と種子
果実は三稜形の痩果で、宿存する花の各部から発達した膜質の翼に包まれる。全体の大きさは長さ8から9.5ミリメートル、幅7から7.5ミリメートルで、形は長卵形から長楕円形、翼の幅は2から2.5ミリメートルで、縁近くを縦に走る脈が通っている。色は成熟が進むにつれて緑色から赤褐色に変わる。種子は卵形で黒色、小さく軽量で、風による散布に適している。
根と茎
地下部は太い根茎と、それに伴う塊根から成り、いずれも切断すると黄色から橙色を呈する。成熟した個体では、この地下部の塊は数キログラムを超えることもあり、何年もかけてゆっくりと発達する。根茎の切断面には解剖学的な特徴があり、異常な配列で放射状に並ぶ維管束が、中国の文献で「錦紋」として知られる、明暗の斑点からなる大理石模様を生み出す。これに対して地上の茎は一年生で中空、短命であり、結実後には消える。
分布と生育地
本種は中国固有種で、甘粛、青海、陝西、西蔵(チベット自治区)に確実な分布が確認されており、これはチンハイ・チベット高原の東縁部と、岷山、祁連山、邛崍山などの隣接する山脈に相当する。総分布域は限定的かつ分断されており、個体群は谷や分水嶺によって隔てられている点が、より広い分布を持つR. palmatumとの違いである。
Flora of Chinaは生育地を標高1600から3000メートルの谷とし、この範囲に標本の大部分が集中している。高原での生態学的な野外調査では、より高い標高、高山草原、岩の多い斜面、水路沿いに生育する個体群が記録されており、古典的な植物誌の記述よりも広い標高幅を示唆している。これらの地域の気候は大陸性の寒冷気候で、冬は長く厳しく、夏は短く、日較差が大きく、標高のため紫外線量も高い。好まれる土壌は深く、排水がよく、質感の緩い土壌であり、これは根茎の拡大の必要性と関連する条件である。
本種が生育する群落では、Rhododendron属やSalix属の高山性低木、およびKobresia属が優占する草原とともに出現する。原産地の外での野生化の記録はなく、いかなる地域でも侵略的な挙動は報告されていない。本種は温帯のヨーロッパの庭園で葉を観賞するための植物として栽培されているが、通常はR. palmatumの変種という園芸上の呼称の下で扱われ、定着した逸出は知られていない。
栽培
繁殖は種子または根茎の分割によって行われる。種子は湿った低温期を経ることで発芽が良くなるが、これは自然界では秋の自然な種子散布と、春まで雪の下で過ごす期間によって満たされる条件である。生育期の終わりに、生育可能な芽を残した部分で行う定着した株の分割は、成熟までの時間を短縮し、母株の特性を維持するため、均一な材料を目的とする栽培において重要な利点となる。
本種は日当たりを必要とし、深く肥沃で排水の非常に良い、中性に近いpHの土壌を必要とし、いかなる時期の水浸しにも耐えない。原産地に見合った顕著な耐寒性を持つが、低標高の湿った暑さは生育の制限要因であり、これが中国での商業栽培が甘粛・青海の高地に集中している理由を説明する。生育は遅く、種子由来の個体は収穫サイズに達するまで数年を要し、高地の栽培プログラムは典型的には4年目から7年目までの長い周期で運用される。
最も頻繁に報告される病害虫としては、排水不良や融雪期に水浸しとなった土壌での日和見的な菌類による根茎腐敗と、地下組織に穴を開けるゾウムシ類の幼虫による食害が挙げられる。高地の栽培では、げっ歯類やOchotona属のナキウサギなどのウサギ形目動物が根や根茎に被害を与える。収穫は地上部が枯れる秋に行われ、材料は洗浄され、切断され、天日または穏やかな温度のオーブンでゆっくりと乾燥される。
フェノロジー
開花は6月に起こり、結実は7月から8月にかけて起こる。この圧縮された暦は、高地における夏の短さを反映している。若い個体は初めて開花するまで数年間栄養成長を続け、成熟した個体のすべてが毎シーズン開花するわけではない。これは、根茎に蓄えられた資源に依存する高山性多年草に共通するパターンである。
Rheum属の送粉様式は主に虫媒であり、ハエ類、クロバネキノコバエ科(Sciaridae)のキノコバエ類、そして小型のハチ類が関与し、これらの分類群が本種の生育する標高での訪花者相を占めている。小さく密集し、色のついた花被片を持つ花は、こうした非特化的な訪花者群と合致する。散布は風散布型で、果実の膜質の翼が抗力面として機能し、高原に特徴的な強風が種子散布体を短距離から中距離運び、斜面での表面流や積雪上での移動も補助的に寄与する。保全に関する文献は、この散布機構の効率の限界を、個体群を分断させたままにする要因の一つとして指摘している。
近縁種と混同
Rheum palmatumとの識別は古典的な問題であり、専門家にとっても依然として困難である。最も信頼できる基準は葉の切れ込みにある。R. tanguticumでは中央の裂片が羽状深裂して細い裂片に分かれるのに対し、R. palmatumの裂片は幅広く三角形で、鋸歯状か浅く切れ込む程度である。両種が同所的に生育する地域では中間形がしばしば見られ、これが浸透交雑の仮説を支え、分類学的な不安定さを説明する一因となっている。
混同または比較されるその他の近縁種は次のとおりである。
- Rheum officinale Baill.:より南方に分布し、葉は5から7の浅く幅広い裂片を持ち、切れ込みははるかに少ない
- Rheum przewalskyi A. Los.:同じく高原産で、草丈がはるかに小さく、特徴的な暗色の斑点を持つ革質の葉を持つ
- Rheum rhabarbarum L.および園芸雑種のRheum × hybridum Murray(ルバーブ):心形で縁が波打つのみで決して裂けることのない葉と、太く赤みを帯びた葉柄によって容易に区別できる
属外では、栄養成長期に根生葉のロゼットがゴボウ(Arctium lappa L.)や頑丈なRumex属の種と似ることが、最も起こりやすい混同である。ゴボウは全縁で心形の葉と、白く綿毛状の裏面によって区別され、スイバ類は葉が小さく、脈と托葉鞘のパターンが異なる点で区別される。同定とは独立した安全上の注意点として、Rheum属の葉身は高濃度の可溶性シュウ酸塩を蓄積し、人だけでなく犬、猫、馬にとっても摂取により有毒であり、消化器の刺激や腎障害を伴う症状を引き起こす点を記しておく。
フィトケミストリー
根茎と根の化学組成は、アントラキノン類とその配糖体誘導体によって支配されている。記載されている遊離アグリコンには、アロエエモジン、クリソファノール、エモジン、フィスシオン、レインがあり、これらに加えてクリソファノール1-O-β-D-グルコシド、クリソファノール8-O-β-D-グルコシド、フィスシオン8-O-β-D-グルコシドなどの抱合型も存在する。これらの分子が、根茎を切断した直後に現れる黄橙色を担っている。
アントラキノン類に加え、液体クロマトグラフィー質量分析法による分析では、本種の材料からセンノシド群のジアントロン類、レスベラトロールおよびラポンチゲニンに由来する配糖化スチルベン類、没食子酸グルコース類やその他の加水分解性タンニン、フラバン類とプロアントシアニジン類、フェニルブタノン類、配糖化ナフタレン類、単純フェノール酸が同定されている。薬局方に収載されるダイオウ属の種について記録された化合物の総数は、100種類を超える。
これらの代謝産物の植物体内での分布は不均一である。アントラキノン類とタンニン類は地下部に濃縮され、葉柄と茎の赤い色素はアントシアニンに由来し、葉身は主に可溶性シュウ酸塩を蓄積する。標高の勾配に沿って個体群を比較した代謝物研究では、プロファイルにかなりの量的なばらつきが記録されており、総アントラキノン含量は材料の採取標高に応じて一貫して変動する。
歴史と民族植物学
アジア産ダイオウの乾燥根茎は、それを産する植物の正体が明らかになる何世紀も前から、大陸を通るルートで流通していた。16世紀から18世紀のヨーロッパの記録は、経由したルートに応じて材料を呼び分けており、「トルコ大黄」や「モスクワ大黄」といった商業名を生んだ。『神農本草経』を含む中国の古い本草書は、すでにこの材料を「大黄」の名で記録しており、後の歴代王朝の薬局方もこの名称を維持した。
18世紀を通じてキャフタの交易拠点から行われたロシアの貿易独占は、植物学的な原産地を意図的な商業上の秘密として保持した。供給業者は葉や花、あるいは同定を可能にするいかなる構造も伴わない、すでに洗浄され切断された根茎のみを引き渡し、ヨーロッパの植物学者たちは何世代にもわたり乾燥した断片から仮説を立てるほかなかった。ヨーロッパやシベリアで栽培しやすい種、Rheum rhaponticum L.やRheum rhabarbarum L.などが、次々とアジア産材料の起源候補として挙げられたが、いずれも誤りであることが判明した。
この問題が解決したのは、ロシアの探検隊がアジア内陸部に到達し、野生個体群にたどり着いてからである。ニコライ・プルジェワルスキーは1870年から1873年にかけて、そしてグリゴリー・ポターニンはその後の10年間に、チベット高原東部で結実した材料を採集し、植物学的な根拠に基づく同定を可能にした。エドゥアルト・レーゲルは1874年、この材料をもとに本タクソンをR. palmatumの変種として記載し、5年後にバルフォアがこれを種に昇格させた。種小名に名を残すタングート族は採集地域に居住しており、現行の中国語名「鸡爪大黄」は葉の形についての民間の解釈を今に伝えている。
保全状況
本種については現在までIUCNレッドリストによる世界規模の評価が公表されておらず、正式には未評価種の位置づけにある。しかし中国の保全文献や集団遺伝学の研究は、本タクソンを繰り返し絶滅危惧種として扱っており、国内および地域レベルの評価に基づく「危急(Vulnerable)」というカテゴリーが、これらの文献にしばしば登場する。本種はCITESのいずれの附属書にも掲載されておらず、国際取引はこの管理の枠組みを通過していない。
記録されている圧力要因は不利な形で積み重なっている。分布域は本来限定的かつ分断的であり、生活環が長く繁殖率が低い。風による散布は限られた距離しか及ばず、失われた地域の再定着を妨げている。この状況に加えて、市場の需要による野生植物の歴史的に集中的な採集があり、これはまさに根茎の最も大きな成熟個体を除去する結果となっている。ヤクや羊による高山草原での放牧が生育地を劣化させ、世界平均を上回る速さで進むチンハイ・チベット高原の温暖化は、気候的に適した帯域をより高標高へと圧縮する傾向にあり、利用可能な面積を減少させている。
現在進行中の対応策には、野生採集の代替として中国政府のプログラムが推進する、標準化された優良農業規範に基づく高地栽培や、保護区の計画を導くための分布モデリング研究が含まれる。分子マーカーに基づく遺伝的多様性の研究は、個体群間に重要な変異があることを示しており、この知見は、ごく一部の地点だけでなく複数の個体群の核を保全する必要性を強めている。
豆知識
- 本種の中国語名「鸡爪大黄」は文字どおり「鶏の爪の大黄」を意味し、鳥の足指を思わせる、細く分かれた葉裂片を直接指し示している。
- 根茎の切断面に見られる放射状の斑点からなる大理石模様は、加工の産物ではなく異常な維管束配置の結果であり、乾燥材料を同定するための解剖学的な指標として用いられる。
- 18世紀を通じて、乾燥根茎は重量あたりでヨーロッパがアジアから輸入した商品の中でも最も高価なものの一つであり、その植物学的な起源についての秘密は商業的価値の一部をなしていた。
- プルジェワルスキーの探検は、ヨーロッパ人が自然生育地で観察した最初の結実個体をもたらすことで、二世紀以上続いた学術的な論争に終止符を打ち、どの種がアジア産ダイオウを産するのかという問いを一挙に解決した。
- Rheum属には、世界で最も特異な高山植物の一つである、ヒマラヤ産のRheum nobile Hook. f. & Thomsonが含まれる。積み重なった半透明の苞葉がミニチュアの温室のような構造を作り、内部の花を暖める。
ご注意:本コンテンツは情報提供を目的としており、医療専門家の助言に代わるものではありません。薬用植物を使用する前に、特に妊娠中、授乳中、または薬を服用中の場合は、医師または専門家にご相談ください。
参考文献と科学研究
引用文献12件をすべて見る
- Balfour, I. B. Protolog of Rheum tanguticum. Transactions of the Botanical Society of Edinburgh, 13 (付録): cxlvi. 1879.
- 2020 Chinese Pharmacopoeia Commission. Pharmacopoeia of the People’s Republic of China. China Medical Science Press, 北京. 2020.
- 1992 Foust, C. M. Rhubarb: The Wondrous Drug. Princeton University Press, Princeton. 1992.
- 2012 Hu, Y. et al. Genetic variation in Rheum palmatum and Rheum tanguticum (Polygonaceae), two medicinally and endemic species in China, using ISSR markers. PLOS ONE, 7 (12): e51667. 2012.
- 2026 IPNI. International Plant Names Index. Royal Botanic Gardens Kew, Harvard University Herbaria および Australian National Botanic Gardens. 登録番号 urn:lsid:ipni.org:names:696803-1. 2026年参照。
- 2026 IUCN. The IUCN Red List of Threatened Species. 国際自然保護連合. 2026年参照。
- 2003 Li, A. J. et al. Polygonaceae. In: Wu, Z. Y.; Raven, P. H.; Hong, D. Y. (eds.). Flora of China, vol. 5, p. 345. Science Press, 北京, and Missouri Botanical Garden Press, Saint Louis. 2003.
- 2026 POWO. Plants of the World Online. Royal Botanic Gardens Kew. 2026年参照。
- 2017 Qin, H. N. et al. Threatened species list of China’s higher plants. Biodiversity Science, 25 (7): 696-744. 2017.
- Regel, E. Protolog of Rheum palmatum var. tanguticum. Gartenflora, 23: 305. 1874.
- 2011 Sanchez, A.; Schuster, T. M.; Kron, K. A. Taxonomy of Polygonoideae (Polygonaceae): a new tribal classification. Taxon, 60 (1). 2011.
- Stapf, O. Protolog of Rheum palmatum subsp. tanguticum. Curtis’s Botanical Magazine, 153: t. 9200. 1930.