Få planter fremstår så bokstavelig som Sanguinaria canadensis. Det er nok å bryte jordstengelen, så strømmer det ut en tykk, oransjerød lateks som farger fingrene og på én gang forklarer slektsnavnet, det engelske folkenavnet og mye av berømmelsen arten har opparbeidet seg gjennom fire århundrer med europeisk observasjon. Dette er en Papaveraceae, nær beslektet med valmuen og svaleurten, og eneste levende representant for slekten Sanguinaria.
Arten er hjemmehørende i den østlige halvdelen av Nord-Amerika, fra det sentrale og østlige Canada til det sentrale og østlige USA, hvor den vokser i bunnen av modne løvskoger. Den overjordiske syklusen er svært kort: planten tilhører den funksjonelle gruppen vårgeofytter, som utnytter lysvinduet mellom snøsmelting og skogens kronesluttning til å spire, blomstre og sette frukt, for deretter å trekke seg tilbake til jordstengelen resten av året. En hel populasjon kan gå fra usynlig til blomstrende og tilbake til usynlig på under tre måneder.
Denne profilen samler det botanisk litteratur dokumenterer om arten: formell taksonomi bekreftet i nomenklaturdatabaser, morfologi med mål, habitatøkologi, dyrkingspraksis for skogbunnshagen, fenologi og pollinering, feltskille fra lignende arter, beskrivende kjemisk sammensetning, historisk og etnografisk dokumentasjon og bevaringsstatus. Ingenting her er bruksanvisning: planten er giftig i alle deler, og teksten beskriver organismen, ikke måter å bruke den på. Se også profilen av Rumex acetosella, en annen urteaktig plante med sin egen overlevelsesstrategi.
Taksonomi
Slekten Sanguinaria er monotypisk, altså inneholder den bare én akseptert art. Navnet ble gyldiggjort av Linné i 1753, i første bind av Species Plantarum, verket som markerer utgangspunktet for moderne botanisk nomenklatur. Den gjeldende klassifiseringen, etter APG-systemet slik det brukes av Plants of the World Online, er som følger:
- Rike: Plantae
- Klade: Angiospermer, ekte tokimbladede
- Orden: Ranunculales
- Familie: Papaveraceae Juss., 1789
- Underfamilie: Papaveroideae
- Slekt: Sanguinaria Dill. ex L., 1753
- Art: Sanguinaria canadensis L., 1753
Binomiet er bekreftet i International Plant Names Index, som registrerer den opprinnelige publikasjonen i Species Plantarum fra 1753 og tilskriver forfatterskapet til Linné, og i Plants of the World Online fra Royal Botanic Gardens, Kew, hvor Sanguinaria canadensis L. står oppført som akseptert navn.
Synonymer
Som ofte skjer med mye innsamlede og variable arter, har blodrot samlet en lang liste navn som i dag er redusert til synonymer. På slektsnivå er Belharnosia Adans. synonym med Sanguinaria. Blant artssynonymene er registrert:
- Belharnosia canadensis (L.) Nieuwl.
- Sanguinaria acaulis Moench
- Sanguinaria canadensis var. rotundifolia (Greene) Fedde
- Sanguinaria canadensis var. stenopetala Pursh
- Sanguinaria grandiflora Raf.
- Sanguinaria vernalis Salisb.
- Sanguinaria virginiana Gaertn.
Flere varieteter beskrevet av Fedde i 1909, som australis, dilleniana og mesochora, og senere former som colbyorum Benke og incarnata Farw., tilsvarer kontinuerlig populasjonsvariasjon og anerkjennes ikke i dag som egne taksa. Unntaket av hagebruksinteresse er formen multiplex (E.H.Wilson) Weath., med fylte blomster, omtalt nedenfor i dyrkingsavsnittet.
Etymologi
Slektsnavnet kommer fra det latinske sanguis, blod, som en direkte henvisning til den røde lateksen planten avgir når den skades. Artsepitetet canadensis betyr ganske enkelt fra Canada og peker på opprinnelsen til materialet som kom til Europa i de første koloniale forsendelsene, selv om arten forekommer i et mye større område enn kanadisk territorium. På norsk er det vanlige navnet blodrot; på engelsk bloodroot, bokstavelig blod-rot.
Morfologisk beskrivelse av Sanguinaria
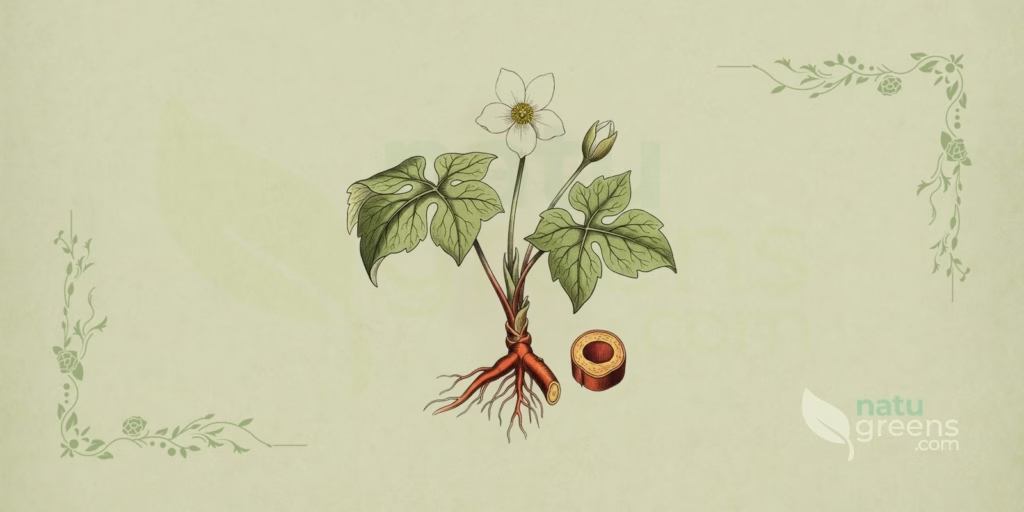
Blodrot er en glatt, flerårig urt med forgrenet jordstengel, som når rundt 40 centimeter i høyden og unntaksvis 60 centimeter. Utseendet under blomstringen er særegent og hjelper til umiddelbar gjenkjenning: hvert skudd danner ett enkelt blad, som kommer opp sammenrullet som en kappe rundt blomsterknoppen, slik at blomsten ser ut til å springe ut av bladet. Først etter at blomsten har åpnet seg og visnet, ruller bladet seg helt ut og når sin endelige størrelse. Hele den overjordiske delen forsvinner om sommeren.
Blader
Bladet er enkeltstående, basalt og langstilket, opptil 15 centimeter langt, kjøttfullt og likeledes fullt av lateks. Bladplaten når 25 centimeter i bredden og har en rundnyreformet til hjerteformet-spydformet omriss, med fem til sju dypt innskårne håndlappede lapper og en tannet til bølgete kant. Oversiden er blågrå-grønn, en tone som skiller den fra nesten alle skogbunnsnaboer, og den håndformede nervaturen tegner seg tydelig gjennom gjennomlysning. Bladutfoldingen fortsetter i flere uker etter blomstringen, og toppunktet i bladareal faller sammen med tidspunktet da skogens kronedekke allerede har lukket seg.
Blomster
Blomstene står enkeltvis, endestilt på en stengel, og er bemerkelsesverdig kortvarige: hver blomst varer bare noen få dager, og en populasjon kan gå fra blomstringens høydepunkt til slutten på under en uke. De to begerbladene måler omkring 1 centimeter og faller av når blomsten åpner seg. Kronbladene er hvite, av og til rosa, avlange til lansettformede, 15 til 30 millimeter lange, og forekommer i et varierende antall, som regel åtte til tolv, der de ytre er lengre enn de indre. Pollenbærerne er tallrike, med gyldne støvbærere som kontrasterer med kronbladenes hvite farge, og fruktknuten er overstilt, med to fruktblader og et tolappet arr. Blomsten produserer ingen nektar, bare pollen.
Frukter og frø
Frukten er en spoleformet, glatt kapsel på 35 til 60 millimeter, som ved modning åpner seg gjennom to klaffer. Frøene er tallrike, nesten kuleformede, 2 til 3 millimeter store, og varierer fra svarte til rødoransje, med en svakt rynket overflate. Hvert frø har et elaiosom, et kjøttfullt og fettrikt vedheng som fungerer som belønning for maur og understøtter spredningsmekanismen beskrevet i fenologiavsnittet. Modningen skjer fire til seks uker etter blomstring, mens kapslene allerede tørker mens bladet fortsatt er fullt utfoldet.
Jordstengel
Jordstengelen er artens mest karakteristiske organ og grunnen til navnet. Den vokser vannrett eller skrått noen centimeter under overflaten, måler 5 til 15 centimeter i lengde og 1 til 2,5 centimeter i diameter, forgrener seg med alderen og danner kompakte klonale kolonier. Den ytre overflaten er rødbrun, og det indre er levende oransjerødt, som mørkner ved eksponering for luft. Ved kutt frigis rikelig lateks i samme farge. Denne lateksen irriterer hud og slimhinner og farger vev varig.
Utbredelse og habitat
Blodrotens naturlige utbredelsesområde dekker det sentrale og østlige Canada og det sentrale og østlige USA. I Canada forekommer den fra Nova Scotia og New Brunswick til Quebec, Ontario og Manitoba. I USA strekker utbredelsen seg fra New England til det nordlige Florida og, mot vest, til North Dakota, South Dakota, Nebraska, Kansas, Oklahoma og østlige Texas. De sentrale Appalachene har de tetteste populasjonene og størst morfologisk variasjon.
Det typiske habitatet er skogbunnen i mesofytiske løvskoger, med dyp, organisk rik og godt drenert jord. Arten opptrer ofte på flomsletter, langs bekkebredder og på nordvendte skråninger, der fuktigheten holder seg mer stabil gjennom sommeren. Den forekommer også, mindre hyppig, i lysninger, enger og stabiliserte sanddyner, og bare sjelden på forstyrret mark, noe som gjør den til en god indikator på moden skog. Det dokumenterte høydeintervallet går fra havnivå til omkring 1300 meter.
Klimaet i utbredelsesområdet er kontinentalt temperert til fuktig temperert, med kalde vintre og godt fordelt nedbør. Jordstengelen krever en langvarig kuldeperiode for å bryte hvilen, noe som sterkt begrenser dyrking i milde klima. Arten forekommer ikke naturlig i Brasil eller andre steder i Sør-Amerika, og det finnes ingen registrert naturalisering utenfor det opprinnelige området.
Dyrking
På den nordlige halvkule er blodrot en klassisk plante for skogbunnshagen, dyrket for den tidlige blomstringen og det blågrå bladverket som fyller bedet etter at blomstene er over. Utenfor soner med streng vinter er dyrking imidlertid vanskelig eller uoppnåelig, og i Brasil gir det bare mening å vurdere det på høytliggende steder med markert kulde, som Serra Gaúcha, Serra Catarinense og området rundt Campos do Jordão. Selv der er resultatet usikkert.
Formering
Deling av jordstengler er den mest pålitelige metoden. Dette gjøres om høsten, etter at bladet har visnet, ved å skille segmenter med minst to knopper og replante dem vannrett, tre til fem centimeter dypt. Formering ved frø er tregere og krever oppmerksomhet: frøene er recalcitrante, mister raskt spireevnen ved tørking og bør sås kort etter innhøsting. Spiringen avhenger av dobbel stratifisering, en varm periode etterfulgt av en kald periode, og skjer som regel først den andre våren. Planter fra frø blomstrer først etter tre til fem år.
Krav
Idealjorden er skogjord: smuldrende, dyp, med høyt humusinnhold og fri drenering, med pH mellom lett sur og nøytral. Vannmettet eller komprimert jord er hovedårsaken til mislykket dyrking. Lysmengden bør etterligne det naturlige regimet, med direkte sol tidlig om våren og skygge om sommeren, noe som oppnås ved planting under løvtrær. Fuktigheten må være konstant i vekstsesongen og kan avta etter at bladet har tørket inn. Et fem til åtte centimeter lag med tørre blader, fornyet hver høst, fungerer både som jorddekke og gjødsel.
Vanlige skadedyr
Arten angripes sjelden, trolig på grunn av alkaloidene som finnes i alt vev. Snegler skader unge blader i regnfulle vårer, og hjortedyr spiser sjelden planten, selv om de kan knekke blomster mens de beveger seg. Blant sykdommene er jordstengelråte forbundet med opportunistiske sopper i vannmettet jord den alvorligste, og gråskimmel forårsaket av Botrytis cinerea opptrer ved overdreven fuktighet kombinert med lite ventilasjon.
Høsting og prydutvalg
I hagen er den eneste formskjøtselen den periodiske delingen av plantetuene, utført hvert fjerde til femte år for å unngå overdreven fortetting. Blant de dyrkede utvalgene er formen multiplex desidert mest utbredt: de fylte blomstene minner om miniatyrpioner, varer lenger enn den enkle formens fordi det ikke finnes pollen som besøkende kan fjerne, og siden den ikke danner spiredyktige frø, formerer planten seg bare ved deling. Det finnes også utvalg med smale kronblader og med rosabaserte kronblader, alle sjeldne i handelen.
Fenologi
Blomstringen skjer tidlig på våren på den nordlige halvkule, mellom mars og mai avhengig av breddegrad og høyde, og plasserer blodrot blant de første artene til å blomstre på skogbunnen. Blomstene åpner seg i morgensol og lukker seg om natten og på overskyede dager. Blomstringen er protogyn: arret blir mottakelig før støvbærerne i samme blomst slipper pollen, en ordning som fremmer krysspollinering mellom individer. Skjer ikke krysspollinering i løpet av de få dagene blomsten varer, bøyer pollenbærerne seg over arret, og det skjer selvpollinering.
Siden blomsten tilbyr pollen og ikke nektar, er de effektive besøkerne først og fremst pollensamlende bier, med vekt på solitærbier av slektene Andrena og Lasioglossum. Fluer, små biller og veps besøker også blomstene, med et mindre bidrag til pollentransporten. Fruktsettingen følger raskt, med modne kapsler mellom mai og juni.
Spredningen er det best studerte kapittelet i artens naturhistorie. Den er myrmekokor: elaiosomet til hvert frø tiltrekker maur, særlig av slektene Aphaenogaster og Formica, som bærer frøet til tuen, spiser vedhenget og etterlater det intakte frøet i avfallskamrene. Resultatet er en beskjeden forflytning, som regel bare noen få meter, men til et fuktig, næringsrikt mikromiljø beskyttet mot frøpredatorer. Denne korte rekkevidden forklarer hvorfor arten koloniserer nye områder langsomt, og hvorfor den sjelden dukker opp igjen i unge sekundærskoger.
Beslektede arter og forvekslinger
Som eneste medlem av sin slekt har blodrot ingen slektninger den kan forveksles med. De relevante sammenligningene gjelder andre Papaveraceae med farget lateks og vårgeofytter som deler samme habitat.
Innenfor familien dukker tre arter ofte opp i sammenligninger. Chelidonium majus L., den eurasiske svaleurten, produserer oransje lateks og isokinolinalkaloider fra samme gruppe, men har forgrenet stengel, sammensatte blader og små gule blomster i skjermer. Macleaya cordata (Willd.) R.Br., asiatisk, hoper også opp sanguinarin, men er en urteaktig busk på to til tre meter med fjærlignende blomsterstander. Stylophorum diphyllum (Michx.) Nutt. deler skogene i det østlige Nord-Amerika med blodrot, men har gul lateks, bladbærende stengel og gule blomster.
Blant naboer med samtidig blomstring skjer skillet ved enkle kjennetegn. Thalictrum thalictroides (L.) A.J.Eames & B.Boivin har lignende hvite eller rosa blomster, men samlet i grupper på to til fem på sammensatte trekoblede blader og uten noe lateks. Hepatica spp. har enkeltstående blomster av lignende størrelse, med blå, lilla eller hvite kronblader, og lærete trelappede blader som holder gjennom vinteren. Podophyllum peltatum L. har et stort håndformet blad med lignende utseende, men hver fruktbare stengel bærer to blader, og blomsten henger i vinkelen mellom dem.
Det avgjørende kjennetegnet i felt er lateksen. Ingen annen plante i floraen i østlige Nord-Amerika produserer et oransjerødt exudat som kan sammenlignes med det fra blodrotens jordstengel, og et overflatisk kutt løser enhver identifikasjonstvil.
Fytokjemi
Artens kjemiske profil domineres av isokinolinalkaloider, konsentrert i to strukturelle grupper. Den første er benzofenantridinalkaloidene, som sanguinarin og keleritrin hører til, jordstengelens to viktigste forbindelser, i tillegg til sanguilutin, kelilutin, kelirubin og sanguirubin i mindre mengder. Den andre gruppen er protopinlignende alkaloider, representert særlig ved protopin og allokryptopin. Sanguinarin står for lateksens farge og utgjør sammen med keleritrin mesteparten av alkaloidfraksjonen.
Fordelingen i planten er ganske ujevn. Jordstengelen inneholder de største mengdene, røttene følger deretter, og blader, blomster og frukter har sammenlignet lave innhold. Det finnes også tidsmessig variasjon: sanguinarinnivåene i jordstengelen når toppen under blomstring og tidlig fruktsetting. Studier av kjemisk økologi i ville populasjoner viser innflytelse fra høyde, jordstengelens vanninnhold, innsamlingssted og genotype på den endelige konsentrasjonen, noe som gjør villvokst materiale kjemisk uensartet.
Fra et sikkerhetsperspektiv er blodrot giftig i alle deler. Sanguinarin er et cytotoksisk alkaloid som forstyrrer cellemembranenes natrium-kalium-pumpe, og lateksen er etsende for hud og slimhinner, i stand til å forårsake kjemiske brannskader og vevsødeleggelse ved direkte kontakt. Inntak av en hvilken som helst plantedel fremkaller forgiftning, med irritasjon av fordøyelseskanalen blant de tidlige symptomene. Giftigheten gjelder også kjæledyr: hunder, katter og mindre planteetere er mottakelige, og derfor frarådes arten i hager med dyr til stede.
Historie og etnobotanikk
Den første detaljerte europeiske registreringen av arten går forut for Linnés beskrivelse med over et århundre. Jacques-Philippe Cornut publiserte i 1635, i Canadensium Plantarum Historia, en illustrasjon av planten i blomst med den blottlagte jordstengelen, et verk som dokumenterer den umiddelbare interessen den røde lateksen vakte hos franske naturforskere. Linné formaliserte binomiet i 1753 på grunnlag av nordamerikansk materiale som sirkulerte i europeiske herbarier.
Urfolk i det østlige Nord-Amerika, deriblant algonkin-, cherokee- og irokesfolk, brukte jordstengelens lateks som pigment. Etnografiske kilder fra det attende og nittende århundre beskriver bruken i kroppsmaling, dekorasjon av gjenstander og farging av kurvarbeid og tekstilfibre, med toner fra oransje til intens rødt avhengig av beisemiddelet som ble brukt. Kilder fra samme periode nevner at europeiske kolonister tok planten i bruk som fargestoff, og roten var blant skogsproduktene som ble samlet inn og handlet i Appalachene.
Artens kjemi kom inn i litteraturen i 1827, da James Freeman Dana isolerte sanguinarin, et av de første plantealkaloidene som ble utvunnet i Nord-Amerika. På 1900-tallet ble sanguinarin tatt i bruk i munnpleieprodukter solgt i USA på 1980- og 1990-tallet. Episoden endte dårlig: undersøkelser knyttet langvarig bruk av disse produktene til utvikling av oral leukoplaki, og de ble trukket fra markedet. Saken siteres i dag i litteraturen som eksempel på et plantestoff hvis kommersielle bruk ble reversert på grunn av bevis for skade.
Bevaring
Blodrot har ingen publisert global vurdering på IUCNs rødliste. Referansen for status i Nord-Amerika er NatureServe, myndigheten for rødlisting av planter i regionen, som gir arten den globale rangeringen G5, tilsvarende trygg. Vurderingen gjenspeiler det brede utbredelsesområdet og det store antallet dokumenterte populasjoner.
Bildet er mindre rolig i lokal skala. Flere jurisdiksjoner gir restriktive delstatsrangeringer, og arten får beskyttelsesstatus i deler av utbredelsesområdets ytterkant, blant annet status som kommersielt utnyttbart sårbar i New York og som art av spesiell bekymring i Rhode Island. Organisasjonen United Plant Savers fører blodrot på sin At-Risk-liste og anbefaler dyrking som alternativ til villhøsting. Arten er ikke oppført på noe CITES-vedlegg.
De dokumenterte truslene kommer fra tre hold. Kommersiell innsamling av jordstengler i ville populasjoner har forårsaket lokale nedganger i Appalachene, forverret av at fjerning av jordstengelen dreper planten og at gjenkolonisering ved frø går sakte. Fragmentering og omdanning av moden skog fjerner habitatet arten er avhengig av, uten erstatning i ung sekundærskog. Og invasive skogbunnsplanter, særlig Alliaria petiolata og Microstegium vimineum, opptar samme sjikt og undertrykker foryngelsen.
Kuriositeter
- Blomsten har ingen nektar å by på i det hele tatt. All investering i belønning gikk til pollen, og biene som besøker den, forlater den lastet med pollen og ingenting annet.
- Bladet fungerer som emballasje. Det kommer sammenrullet opp av jorden rundt blomsterknoppen og folder seg først ut etter at blomsten har åpnet seg, en ordning som beskytter reproduksjonsstrukturen mot sen vårfrost.
- Maur er artens transportmiddel, og ikke et spesielt raskt et: hvert frø reiser bare noen få meter til tuen, noe som bidrar til å forklare hvorfor blodrot finnes i gamle skoger og nesten aldri i ny kratt.
- Cornuts illustrasjon fra 1635 viste planten med den overskårne jordstengelen synlig. Det var et bevisst valg fra kunstnerens side, for uten den detaljen ville navnet arten skulle få et århundre senere, ikke gi noen mening.
- Den fylte blomsterformen er steril, og alle eksemplarer i dyrking stammer, gjennom suksessiv jordstengeldeling, fra en håndfull opprinnelige planter funnet midt i ville populasjoner.
Merk: dette innholdet er informativt og erstatter ikke profesjonell helserådgivning. Rådfør deg med lege eller fytoterapeut før du bruker medisinplanter, spesielt under graviditet, amming eller ved bruk av legemidler.
Referanser og vitenskapelige studier
Se Alle 10 Siterte Kilder
Fagfellevurderte Vitenskapelige Studier (1)
- PEER NatureServe. Sanguinaria canadensis (Bloodroot). NatureServe Explorer. Arlington: NatureServe. ↗
Supplerende Lesning (9)
- Cornut, J.-P. Canadensium Plantarum Historia. Paris: Simon Le Moyne, 1635. ↗
- 1997 Flora of North America Editorial Committee (Ed.). Flora of North America North of Mexico, vol. 3: Magnoliidae and Hamamelidae. New York and Oxford: Oxford University Press, 1997.
- International Plant Names Index. Sanguinaria canadensis L., Sp. Pl. (1753). Royal Botanic Gardens Kew, Harvard University Herbaria and Australian National Herbarium. ↗
- Linnaeus, C. Species Plantarum, vol. 1. Stockholm: Laurentius Salvius, 1753. ↗
- Plants of the World Online. Sanguinaria canadensis L. Royal Botanic Gardens, Kew. ↗
- 2005 Predny, M. L.; Chamberlain, J. L. Bloodroot (Sanguinaria canadensis): An Annotated Bibliography. General Technical Report SRS-86. Asheville: USDA Forest Service, Southern Research Station, 2005.
- 2001 Salmore, A. K.; Hunter, M. D. Elevational trends in defense chemistry, vegetation, and reproduction in Sanguinaria canadensis. Journal of Chemical Ecology, 27(9), 1713-1727, 2001.
- 2001 Salmore, A. K.; Hunter, M. D. Environmental and genotypic influences on isoquinoline alkaloid content in Sanguinaria canadensis. Journal of Chemical Ecology, 27(9), 1729-1747, 2001.
- United Plant Savers. Species At-Risk List: Bloodroot (Sanguinaria canadensis). Rutland: United Plant Savers. ↗