Ligusticum porteri to krzepka, wieloletnia roślina zielna z rodziny Apiaceae, tej samej grupy botanicznej co marchew, seler i koper włoski. Występuje wyłącznie w górach zachodniej Ameryki Północnej, zajmując subalpejskie łąki i otwarte podszycie lasów iglastych oraz osikowych. W hiszpańszczyźnie Nowego Meksyku roślina znana jest jako „oshá” – nazwa ta przeniknęła do angielskiego i do popularnej literatury botanicznej południowego zachodu Stanów Zjednoczonych.
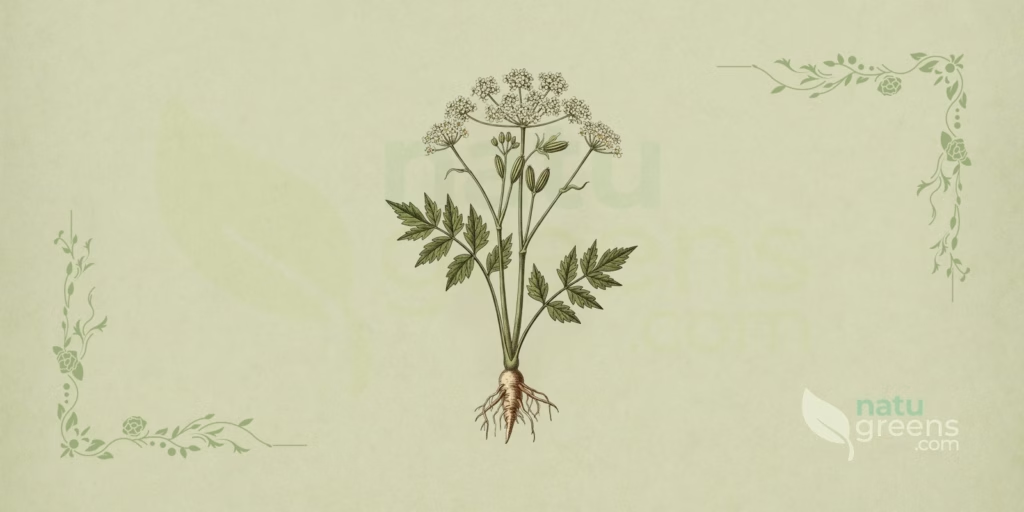
Tym, co przyciąga uwagę w terenie najpierw, nie jest liść, przypominający liście dziesiątek innych baldaszkowatych, lecz zapach. Po zdrapaniu kłącze wydziela przenikliwy aromat, opisywany zwykle jako mieszanka selera z karmelem, na tyle trwały, że utrzymuje się na dłoniach przez wiele godzin. Ta zapachowa sygnatura jest najbardziej wiarygodną cechą diagnostyczną gatunku i, jak zostanie pokazane dalej, także linią odróżniającą Ligusticum porteri od śmiertelnie trujących krewnych rosnących w tych samych górach.
Gatunek jest godny uwagi z trzech wzajemnie wzmacniających się powodów. Jest na tyle wymagający, że opiera się uprawie poza własnym siedliskiem, rośnie na tyle wolno, że zebrana roślina reprezentuje wiele lat akumulacji, i gromadzi w kłączu chemię ftalidów, będącą przedmiotem ciągłych badań fitochemicznych od lat dziewięćdziesiątych. Ten profil opisuje samą roślinę: taksonomię, morfologię, ekologię, fenologię, chemię i ochronę.
Taksonomia
Pozycja Ligusticum porteri nigdy nie była przedmiotem istotnej kontrowersji. Nazwa została opublikowana w 1888 roku przez Johna Merle’a Coultera i Josepha Nelsona Rose’a w rewizji północnoamerykańskich baldaszkowatych i pozostaje akceptowana zarówno w International Plant Names Index, jak i w Plants of the World Online prowadzonym przez Kew.
- Królestwo: Plantae
- Gromada: Tracheophyta (rośliny naczyniowe)
- Klasa: Magnoliopsida (dwuliścienne)
- Rząd: Apiales
- Rodzina: Apiaceae (Umbelliferae)
- Podrodzina: Apioideae
- Rodzaj: Ligusticum L.
- Gatunek: Ligusticum porteri J.M.Coult. & Rose (1888)
Synonimy i taksony infragatunkowe
Synonimika jest krótka. Ligusticum brevilobum Rydb., opublikowany w 1917 roku we florze Gór Skalistych, został później zdegradowany do rangi Ligusticum porteri var. brevilobum (Rydb.) Mathias & Constance w 1941 roku. Współczesne opracowania łączą ten materiał w obrębie gatunku, więc obie nazwy funkcjonują dziś jako synonimy. Odmiana jest nadal cytowana osobno przez niektóre amerykańskie agencje, zwłaszcza w wykazach stanowych, co generuje szum w bazach danych o rozmieszczeniu.
Warto odnotować, że rodzaj Ligusticum, liczący od czterdziestu do sześćdziesięciu gatunków cyrkumborealnych w zależności od przyjętego ujęcia, jest ostatnio dzielony przez badania molekularne. Linie azjatyckie i północnoamerykańskie nie tworzą spójnej grupy, a część gatunków wcześniej zebranych pod tą nazwą przeniesiono do innych rodzajów. Ligusticum porteri pozostaje w rodzaju.
Etymologia
Nazwa rodzajowa nawiązuje do Ligurii, regionu w północno-zachodnich Włoszech, gdzie europejskie gatunki rodzaju znane były od starożytności. Epitet gatunkowy upamiętnia Thomasa Conrada Portera (1822-1901), amerykańskiego botanika i duchownego, który zgromadził jeden z najważniejszych XIX-wiecznych zbiorów roślin z Kolorado.
Nazwy zwyczajowe mają bardziej niejasne pochodzenie. „Oshá” to słowo z hiszpańszczyzny Nowego Meksyku, o nierozstrzygniętej etymologii, prawdopodobnie zapożyczone z języka rdzennego tego regionu. Powracająca w literaturze hipoteza wiąże je z terminem zuni oznaczającym niedźwiedzia, choć brak na to twardego dowodu językowego. „Chuchupate”, używane w północnym Meksyku, przypisuje się zwykle hiszpańskiej adaptacji terminu nahuatl oznaczającego gorzkie zioło.
Opis morfologiczny
Roślina zielna, wieloletnia, krzepka, o wyprostowanych łodygach o zmiennej grubości, od umiarkowanie smukłych do grubych, osiągających od 42 do 150 centymetrów wysokości. Podstawa łodygi otoczona jest włóknistymi resztkami ogonków liściowych z poprzednich sezonów, tworząc charakterystyczną koronę z szarawych włókien na kłączu. Cała część nadziemna zamiera zimą, a roślina odrasta z systemu podziemnego.
Liście
Liście odziomkowe są nieliczne, od zera do dwóch na osobnika, osadzone na długich ogonkach o długości 7 do 24 centymetrów, z rozszerzoną pochwą u nasady. Blaszka jest podzielona trzy do czterech razy, sporadycznie pięć, w układzie pierzastym do pierzasto-trójlistkowego, co nadaje liściom typowy koronkowy wygląd baldaszkowatych. Listki końcowe są jajowate, rzadko lancetowate, mierzą od 1 do 4,6 centymetra i mają brzeg wcinany do ząbkowanego. Liście łodygowe występują w liczbie od jednego do czterech, stopniowo mniejsze i prostsze ku wierzchołkowi. Rozgniecione między palcami wydzielają silny zapach selera.
Kwiaty
Kwiatostanem jest szczytowy baldach złożony, płaski do lekko wypukłego, który w owocowaniu osiąga od 4,5 do 15,4 centymetra średnicy, wyjątkowo schodząc do 3,3 centymetra. Liczba promieni pierwotnych mieści się u większości osobników między dwanaście a dwadzieścia jeden, z zarejestrowanymi skrajnościami od sześciu do trzydziestu czterech, a każdy promień mierzy od 3,8 do 8 centymetrów. Podsadki inwolukralne na ogół są nieobecne lub pojawia się tylko jedna, jajowata do podłużnej. Podsadki inwolukielka są liniowe i mierzą od 1 do 6 milimetrów. Poszczególne kwiaty są małe, z pięcioma białymi lub rzadko różowawymi płatkami i około 2 do 5 milimetrów średnicy w całości; działki kielicha są szczątkowe, jak jest regułą w rodzinie.
Owoce i nasiona
Owocem jest podłużno-eliptyczna rozłupnia, spłaszczona grzbietowo-brzusznie, o długości 5,2 do 7,5 milimetra, z rejestrowanymi skrajnościami od 4,4 do 8 milimetrów. Żebra są dobrze rozwinięte i zmienione, a w przerwach między nimi biegnie od trzech do pięciu kanałów olejkowych, kanałów wydzielniczych magazynujących lotne związki. Dojrzałe rozłupki przybierają odcień brązowawy do czerwonawego. Każda rozłupnia rozpada się na dwie jednonasienne rozłupki podczas rozsiewu.
Kłącze i korzeń
Organ podziemny jest najbardziej charakterystyczną strukturą gatunku. Jest to grube, zdrewniałe, rozgałęzione kłącze, pokryte na zewnątrz pomarszczoną, ciemnobrązową korą i zwieńczone wspomnianą już koroną włókien. Wewnątrz jest żółtawe do jasnobrązowego i wykazuje widoczne gołym okiem kanały żywiczne na przekroju poprzecznym. Aromat jest intensywny i złożony. Świeża tkanka jest ściągająca i wywołuje podrażnienie błony śluzowej jamy ustnej, efekt ten zanika po wysuszeniu.
Rozmieszczenie i siedlisko Ligusticum porteri
Gatunek jest rodzimy w górach zachodniej Ameryki Północnej. Główny zasięg obejmuje Arizonę, Kolorado, Nevadę, Nowy Meksyk, Utah i Wyoming, z dodatkowymi stanowiskami udokumentowanymi w Idaho i Montanie, i rozciąga się na północny Meksyk poprzez stany Chihuahua, Durango i Sonora, w Sierra Madre Occidental.
Odnotowany gradient wysokościowy sięga od 1400 do 3700 metrów, ale większość populacji koncentruje się między 2200 a 3400 metrów. Widoczna jest wyraźna zmienność szerokościowa: na południowym krańcu zasięgu roślina ogranicza się do najwyższych poziomów, podczas gdy w Utah i Wyoming schodzi na znacznie niższe wysokości. Typowe siedlisko obejmuje otwarte łąki subalpejskie, polany i podszyt lasów Abies, Picea, Populus tremuloides i Pseudotsuga, a także brzegi górskich cieków wodnych. Formacje bylicowe należą do częstego sąsiedztwa na suchszych obrzeżach zasięgu.
Co do gleby, wymóg jest spójny na całym obszarze występowania: głębokie podłoże, bogate w materię organiczną, wilgotne, lecz dobrze przepuszczalne. Gatunek toleruje zarówno pełne słońce, jak i głęboki cień, co tłumaczy jego obecność zarówno na łąkach, jak i pod zwartym baldachimem. Nie odnotowano naturalizacji Ligusticum porteri poza jego rodzimym obszarem ani żadnych oznak zachowania inwazyjnego.
Uprawa
Roślina cieszy się ugruntowaną reputacją trudnej w uprawie, a literatura ogrodnicza konsekwentnie odnotowuje niepowodzenia prób uprawy poza górskimi warunkami pochodzenia. Zależność od skojarzeń mikoryzowych w rodzimej glebie wskazywana jest jako jeden z czynników, obok potrzeby przedłużonego zimowego chłodu i wyraźnej amplitudy termicznej między dniem a nocą.
Rozmnażanie z nasion napotyka na głęboki spoczynek. Konieczna jest przedłużona stratyfikacja chłodna, w niektórych przypadkach łączona z wilgotną, a mimo to kiełkowanie pozostaje nieregularne. W naturze rekrutacja z nasion jest zdarzeniem rzadkim, a utrzymanie płatów populacyjnych odbywa się głównie przez wzrost i rozgałęzianie kłącza. Podział kłącza jest technicznie wykonalny, gdy fragmenty niosą żywotne pąki, ale zadomowienie jest powolne i zajmuje lata.
Wzrost jest głównym wąskim gardłem. Aktualne szacunki wskazują, że osobniki o rozwiniętym kłączu mają ponad dziesięć lat, co czyni jakikolwiek cykl produkcyjny niekompatybilnym ze skalami rolnictwa konwencjonalnego. Najbardziej udane doświadczenia nie są właściwą uprawą, lecz wspomaganym rozmnażaniem w obrębie samych populacji naturalnych, z siewem i zarządzaniem w miejscu występowania.
Fitosanitarnie gatunek nie wykazuje poważnych problemów w naturalnym siedlisku. Mszyce kolonizują kwiatostany i młode łodygi, larwy motyli z rodziny paziowatych wykorzystują liście jako roślinę żywicielską, co jest powszechne wśród Apiaceae, a zgnilizna korzeni pojawia się, gdy gleba pozostaje podmokła bez drenażu. Wypasanie przez zwierzęta kopytne i wydeptywanie przez bydło stanowią większą presję niż jakikolwiek szkodnik w ścisłym sensie.
Fenologia
Kwitnienie następuje latem, skoncentrowane w krótkim korzystnym okresie cyklu górskiego, ze szczytem między końcem czerwca a sierpniem, zależnie od wysokości i szerokości geograficznej. Owocowanie następuje od końca lata do początku jesieni, a suche baldachy pozostają wyprostowane na roślinie przez kilka tygodni przed opadnięciem rozłupek.
Jak w całej rodzinie, baldachy przyciągają szerokie spektrum odwiedzających kwiaty, w tym pszczoły, chrząszcze, muchy i osy. Badania nad biologią zapylania u Apiaceae rozróżniają jednak odwiedzających okazjonalnych od skutecznych zapylaczy, a w tej drugiej grupie znajdują się pszczoły z rodzin Andrenidae, Colletidae i Halictidae. Halictydy zaobserwowano odwiedzające kwiaty gatunku w górach Chiricahua w Arizonie we wrześniu 2003 roku.
Rozsiewanie jest najbardziej ograniczającym punktem cyklu. Rozłupki nie są przenoszone przez zwierzęta ani skutecznie przez wiatr, a obserwacje terenowe wskazują, że opadają i pozostają w pobliżu rośliny macierzystej. Ten zasadniczo barochoryczny sposób rozsiewania tłumaczy skupiskowy wzorzec populacji i powolność, z jaką gatunek rekolonizuje obszary, z których został usunięty.
Gatunki pokrewne i pomyłki
W obrębie rodzaju kilka gatunków pojawia się często w porównaniach i kluczach do oznaczania:
- Ligusticum canadense (L.) Britton, ze wschodniej Ameryki Północnej, o grubszym listowiu i siedlisku lasu liściastego.
- Ligusticum chuanxiong S.H.Qiu et al., takson chiński o długiej historii uprawy, dziś często traktowany pod nazwą Ligusticum striatum DC.
- Ligusticum filicinum S.Watson, pokrewny z centralnych Gór Skalistych, o jeszcze drobniej podzielonych liściach i mniej aromatycznym kłączu.
- Ligusticum grayi J.M.Coult. & Rose, z Kaskad i Sierra Nevada, wyraźnie mniejszy pokrojem.
- Ligusticum mutellina (L.) Crantz, europejski gatunek alpejski z Alp i Pirenejów.
- Ligusticum scoticum L., roślina nadmorska północnej Europy i północno-wschodniej Ameryki Północnej, o mięsistych, błyszczących liściach.
Niebezpieczne sobowtóry
To najważniejszy punkt bezpieczeństwa profilu. Ligusticum porteri jest wegetatywnie podobny do dwóch śmiertelnie trujących baldaszkowatych występujących w zachodniej Ameryce Północnej, a pomyłki w identyfikacji już powodowały śmiertelne zatrucia.
- Cicuta douglasii i Cicuta maculata: szalej wodny zawiera cykutoksynę i należy do najbardziej trujących roślin flory północnoamerykańskiej. Spożycie niewielkiej ilości kłącza powoduje drgawki i śmierć. Odróżniają się siedliskiem gleby podmokłej, bagna lub brzegu wody stojącej na ogół na niższych wysokościach, kłączem z poprzecznymi komorami wewnętrznymi wydzielającymi żółtawy płyn po przekrojeniu, nieprzyjemnym zapachem i owocami o odmiennym kształcie.
- Conium maculatum: szczwół plamisty, sprowadzony z Europy i dziś szeroko zadomowiony, zawiera alkaloidy piperydynowe, takie jak koniina, a wszystkie jego części są trujące. Rozpoznaje się go po fioletowawych plamach lub smugach na gładkiej łodydze, po zapachu opisywanym jako zjełczały lub przypominający mocz gryzoni, po białym, mięsistym korzeniu o cienkiej skórce, i po braku włóknistej korony u nasady.
Najbardziej wiarygodne kryterium praktyczne łączy trzy obserwacje: koronę szarawych włókien na szczycie kłącza, ciemnobrązową, pomarszczoną korę zewnętrzną i niepowtarzalny aromat selera z nutą słodkawą. Żaden z dwóch szalejów nie wykazuje tego zestawu. Łodyga z fioletowymi plamami i biały korzeń bez przyjemnego zapachu wskazują na roślinę trującą, a obowiązująca wśród botaników terenowych zasada głosi, że jakakolwiek wątpliwość co do tożsamości dzikiej rośliny baldaszkowatej rozstrzyga sprawę.
Fitochemia
Kłącze Ligusticum porteri gromadzi olejek eteryczny w kanałach wydzielniczych rozmieszczonych w korze, i to w tej frakcji koncentruje się analityczne zainteresowanie gatunkiem. Dotychczas scharakteryzowane klasy związków są następujące.
- Kwasy fenolowe: kwas ferulowy, zidentyfikowany w ekstraktach organicznych kłącza.
- Kumaryny i furanokumaryny: obecne w umiarkowanym stężeniu w porównaniu z innymi Apiaceae.
- Ftalidy dimeryczne: diligustylid, riligustylid i tokinolid B, scharakteryzowane z ekstraktów heksanowych kłącza.
- Ftalidy monomeryczne: Z-ligustylid, Z-butylidenoftalid oraz senkjunolidy F i I.
- Poliacetyleny: falkarinol i falkarindiol, powszechne w rodzinie.
- Terpeny: wśród monoterpenów węglowodorowych przeważają sabinen i p-cymen; octan trans-sabinylu odpowiada za większość frakcji monoterpenów tlenowych. W analizach obecne są też alfa-pinen, beta-felandren i mircen.
W analizach olejku eterycznego korzenia ftalidy stanowiły około 44% całości, a seskwiterpeny około 11%. Oznaczenie ilościowe metodą wysokosprawnej chromatografii cieczowej wykazało zawartość Z-ligustylidu między 0,15% a 2,5% oraz diligustylidu między 0,002% a 1,0%, szerokie zakresy odzwierciedlające zmienność pochodzenia, wieku materiału i warunków suszenia. Rozkład w roślinie jest nierówny: kłącze i korzeń koncentrują frakcję lotną, podczas gdy liście i owoce wykazują profile mniej bogate, choć owoce także posiadają dobrze rozwinięte kanały olejkowe.
Historia i etnobotanika
Gatunek otrzymał formalny opis w 1888 roku, na podstawie materiału z Gór Skalistych Kolorado, ale krążył już od wieków w wiedzy botanicznej ludów regionu. Zapisy etnograficzne zgromadzone w ciągu XX wieku dokumentują wykorzystanie kłącza przez ludy południowego zachodu Stanów Zjednoczonych, w tym Apaczów, Diné, Tarahumara i ludy Pueblo, a także jego późniejsze włączenie do praktyk hiszpańskojęzycznych społeczności Nowego Meksyku, gdzie roślina stała się znana jako oshá de la sierra.
Literatura etnobotaniczna odnotowuje, że kłącze przygotowywano w postaci naparów i nalewek, a puste łodygi były w pewnych kontekstach palone. Źródła z XX wieku opisują ponadto zewnętrzne zastosowanie preparatów z korzenia. Są to historyczne zapisy praktyk udokumentowanych przez etnografów, a nie opisy obowiązujących obecnie procedur.
Nazwa „korzeń niedźwiedzia” ma obserwacyjne pochodzenie. Relacje zebrane wśród ludów Gór Skalistych opisują niedźwiedzie wykopujące i żujące kłącza po przebudzeniu z hibernacji oraz wcierające materiał w futro. Obserwacja ta rozpowszechniła się szeroko i została włączona zarówno do narracji rdzennych, jak i do XIX-wiecznej literatury przyrodniczej, stając się najczęściej cytowaną cechą rośliny poza kręgami botanicznymi.
Ze strony botaniki akademickiej gatunek trafił na amerykański radar handlowy pod koniec XX wieku. Rosnący popyt na suszony korzeń w latach dziewięćdziesiątych skłonił United States Forest Service do nałożenia w 1999 roku trzyletniego moratorium na zbiór w dwóch regionach administracyjnych – epizod ten wyznacza początek traktowania Ligusticum porteri jako kwestii ochrony przyrody.
Ochrona
Globalna ocena Międzynarodowej Unii Ochrony Przyrody sklasyfikowała gatunek w 2020 roku jako Najmniejszej Troski (LC), w oparciu o rozległość zasięgu i względną liczebność znanych populacji. Ta ocena współistnieje z bardziej ostrożnymi odczytami regionalnymi. NatureServe przypisało gatunkowi kategorię G3, wrażliwy w skali globalnej, i klasyfikuje populacje jako S3 w Kolorado i Utah, oraz S4 w Wyoming.
Ligusticum porteri nie figuruje w żadnym załączniku CITES. W 2000 roku zaproponowano rozważenie go, na podstawie raportu przygotowanego przez uniwersytecki program biologii ochrony przyrody, ale propozycja nie postąpiła dalej. Nie figuruje też na federalnych listach gatunków zagrożonych w Stanach Zjednoczonych, i żaden stan zachodniej Ameryki Północnej nie zakazuje zbioru na gruntach stanowych. Organizacja United Plant Savers utrzymuje go na swojej liście gatunków zagrożonych.
Udokumentowane zagrożenia sumują się niekorzystnie:
- Zbiór destrukcyjny: wydobycie kłącza usuwa cały osobnik, a powolny wzrost sprawia, że odbudowa populacji trwa ponad dekadę.
- Wyrąb lasu i pojazdy terenowe: zmieniają baldachim i zagęszczają glebę łąk subalpejskich.
- Zmiany klimatyczne: ocieplenie zmierza do zawężenia odpowiedniego pasa wysokościowego, wypychając odpowiednie siedlisko na coraz węższe poziomy.
- Nadmierny wypas: żerowanie stad zmniejsza i tak już rzadką produkcję nasion.
Dodatkowym obciążeniem jest niedobór danych. Nie istnieją kompleksowe programy monitorowania populacji gatunku, a dostępne informacje nierówno pokrywają jego obszar występowania. Wstępne badania sugerują, że populacje mogą znosić niskie poziomy usuwania kłącza, ale długoterminowe efekty pozostają słabo scharakteryzowane.
Ciekawostki
- Wszystkie północnoamerykańskie nazwy miejscowe zawierające element „Oshá” znajdują się w Nowym Meksyku, niezmiennie w pobliżu historycznych hiszpańskojęzycznych społeczności, co pomogło językoznawcom prześledzić regionalne rozprzestrzenienie nazwy.
- Gatunek jest jedną z nielicznych roślin o znaczeniu handlowym, które konsekwentnie opierały się wszelkim poważnym próbom udomowienia rolniczego, do tego stopnia, że zalecaną strategią zarządzania jest siew w obrębie samych dzikich populacji.
- Aromat kłącza jest na tyle specyficzny, że służy jako bardziej wiarygodne kryterium identyfikacji terenowej niż jakakolwiek cecha liścia, sytuacja niezwykła w botanice opisowej.
- Moratorium na zbiór nałożone w 1999 roku przez amerykańską Służbę Leśną miało trwały efekt handlowy: handel suszonym dzikim korzeniem nigdy nie powrócił nawet do 10% wcześniejszych wolumenów, a materiał uprawiany zyskał na znaczeniu na rynku od 2002 roku.
- Rodzaj Ligusticum, rozprzestrzeniony po całej umiarkowanej strefie półkuli północnej, okazuje się w analizach molekularnych sztuczny, a redystrybucja jego gatunków do innych rodzajów jest jedną z trwających przebudów w systematyce Apiaceae.
- Zainteresowanych innymi profilami botanicznymi na tej platformie odsyłamy również do profilu Curcuma longa, gatunku równie dobrze udokumentowanego, choć o zupełnie innej ekologii.
Uwaga: ta treść ma charakter informacyjny i nie zastępuje porady specjalisty. Przed zastosowaniem roślin leczniczych skonsultuj się z lekarzem lub fitoterapeutą, zwłaszcza w ciąży, w okresie karmienia piersią lub podczas przyjmowania leków.
Referencje i badania naukowe
Zobacz Wszystkie 13 Cytowanych Źródeł
Recenzowane Badania Naukowe (1)
- PEER NatureServe. NatureServe Explorer: Ligusticum porteri. Arlington, Wirginia. ↗
Lektury Uzupełniające (12)
- 2014 Collin, G.; Gagnon, H. Composition of the essential oil and the hydrosol of the roots of Ligusticum porteri. American Journal of Essential Oils and Natural Products. 2014.
- Coulter, J. M.; Rose, J. N. Revision of North American Umbelliferae. Crawfordsville. 1888.
- 1992 Delgado, G. et al. Phthalides and Monoterpenes of the Hexane Extract of the Roots of Ligusticum porteri. Heterocycles. 1992.
- Flora of North America Editorial Committee. Ligusticum porteri. Flora of North America North of Mexico, vol. 13. Oxford University Press, Nowy Jork i Oksford.
- International Plant Names Index (IPNI). Ligusticum porteri J.M.Coult. & Rose. Royal Botanic Gardens, Kew; Harvard University Herbaria; Australian National Herbarium. ↗
- 2020 IUCN. The IUCN Red List of Threatened Species: Ligusticum porteri. Wersja 2020. ↗
- 2011 León, A. et al. Phthalides and other constituents from Ligusticum porteri. Natural Product Research, 25(13). 2011.
- Mathias, M. E.; Constance, L. Studies in the Umbelliferae. Bulletin of the Torrey Botanical Club, 68, 123. 1941.
- Pollinator Partnership. Medicinal Plant Fact Sheet: Ligusticum porteri / Osha. San Francisco, Kalifornia.
- POWO. Plants of the World Online: Ligusticum porteri J.M.Coult. & Rose. Royal Botanic Gardens, Kew. ↗
- Rydberg, P. A. Flora of the Rocky Mountains and Adjacent Plains. Nowy Jork. 1917.
- United Plant Savers. Species At-Risk Assessment: Osha, Ligusticum porteri. Rutland, Ohio. ↗