A Ligusticum porteri é uma herbácea perene de grande porte da família Apiaceae, o mesmo agrupamento botânico da cenoura, do aipo e do funcho. Vive restrita às montanhas do oeste da América do Norte, ocupando prados subalpinos e o sub-bosque aberto de florestas de coníferas e de álamo-tremedor. No espanhol do Novo México a planta atende por “oshá”, nome que atravessou para o inglês e para a literatura botânica popular do sudoeste norte-americano.
O que primeiro chama a atenção em campo não é a folhagem, que se confunde com a de dezenas de outras umbelíferas, mas o cheiro. Ao ser raspado, o rizoma libera um aroma penetrante que costuma ser descrito como uma mistura de aipo com caramelo, persistente o bastante para permanecer nas mãos por horas. Essa assinatura olfativa é o traço diagnóstico mais confiável da espécie e, como se verá adiante, também a linha que separa a Ligusticum porteri de parentes mortalmente tóxicos que crescem nas mesmas serras.
A espécie é notável por três razões que se reforçam. Ela é exigente a ponto de resistir ao cultivo fora do próprio habitat, cresce devagar o suficiente para que uma planta colhida represente muitos anos de acúmulo, e concentra no rizoma uma química de ftalidas que a tornou objeto de estudo fitoquímico contínuo desde a década de 1990. Este perfil descreve a planta em si: taxonomia, morfologia, ecologia, fenologia, química e conservação.
No espanhol do Novo México a planta atende por oshá, nome que passou para o inglês e para a literatura botânica popular do sudoeste norte-americano.
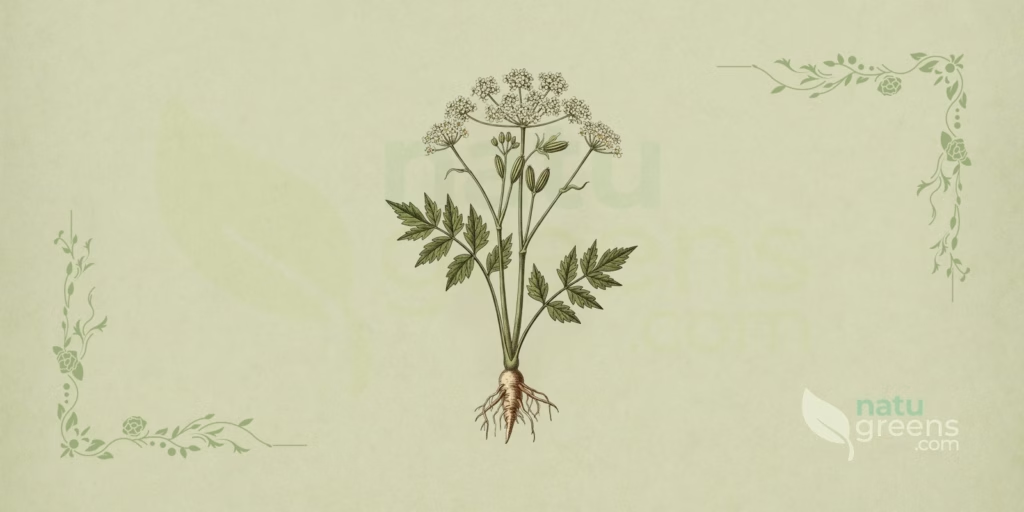
O oshá ocupa prados subalpinos e o sub-bosque aberto de florestas de coníferas e de álamo-tremedor.
Taxonomia
A posição da Ligusticum porteri nunca foi objeto de controvérsia relevante. O nome foi publicado em 1888 por John Merle Coulter e Joseph Nelson Rose na revisão das umbelíferas norte-americanas, e continua aceito tanto no Índice Internacional de Nomes de Plantas quanto no Plants of the World Online, do Kew.
- Reino: Plantae
- Divisão: Tracheophyta (traqueófitas)
- Classe: Magnoliopsida (eudicotiledôneas)
- Ordem: Apiales
- Família: Apiaceae (Umbelliferae)
- Subfamília: Apioideae
- Gênero: Ligusticum L.
- Espécie: Ligusticum porteri J.M.Coult. & Rose (1888)
Sinônimos e Táxons Infraespecíficos
A sinonímia é curta. Ligusticum brevilobum Rydb., publicado em 1917 na flora das Montanhas Rochosas, foi posteriormente rebaixado a Ligusticum porteri var. brevilobum (Rydb.) Mathias & Constance, em 1941. Tratamentos atuais reúnem esse material dentro da espécie, de modo que os dois nomes circulam hoje como sinônimos. A variedade continua a ser citada separadamente por algumas agências norte-americanas, sobretudo em listagens de ocorrência estadual, o que gera ruído em bancos de dados de distribuição.
Vale registrar que o gênero Ligusticum, com algo entre quarenta e sessenta espécies circumboreais dependendo do tratamento adotado, vem sendo desmembrado por estudos moleculares recentes. As linhagens asiáticas e as norte-americanas não formam um grupo coeso, e parte das espécies antes reunidas sob o nome migrou para outros gêneros. A Ligusticum porteri permanece no gênero.
Etimologia
O nome genérico remete à Ligúria, região do noroeste italiano onde as espécies europeias do gênero eram conhecidas desde a Antiguidade. O epíteto específico homenageia Thomas Conrad Porter (1822-1901), botânico e clérigo norte-americano que reuniu um dos mais importantes acervos de plantas do Colorado no século XIX.
Os nomes populares têm origens mais nebulosas. “Oshá” é palavra do espanhol falado no Novo México, de etimologia não resolvida, possivelmente tomada de uma língua indígena da região. Uma hipótese recorrente na literatura a aproxima do termo zuni para urso, sem que exista demonstração linguística firme. Já “chuchupate”, corrente no norte do México, é geralmente atribuído a uma adaptação castelhana de um termo náuatle para erva amarga.
Descrição Morfológica
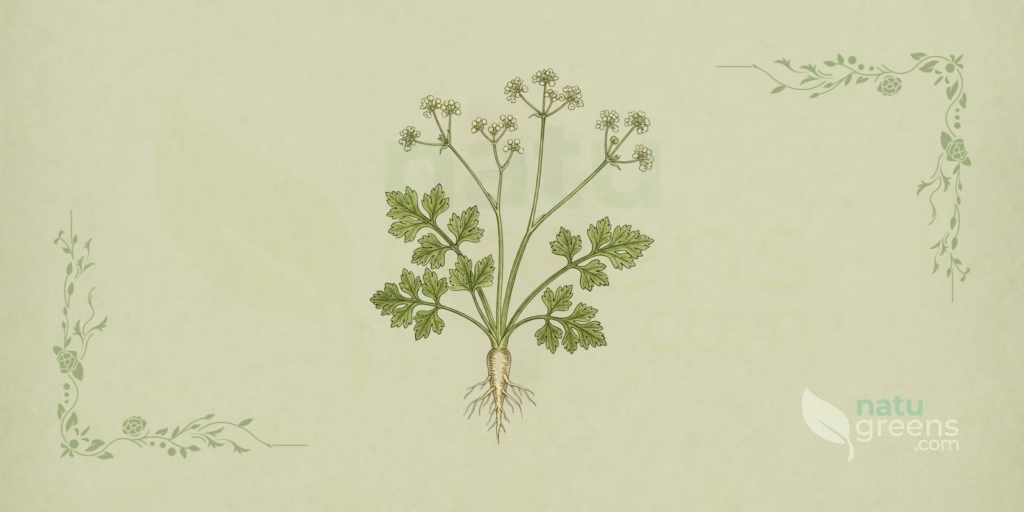
Planta herbácea perene, robusta, com caules eretos que variam de moderadamente delgados a grossos e alcançam de 42 a 150 centímetros de altura. A base do caule é envolvida por restos fibrosos de pecíolos de estações anteriores, formando uma coroa característica de fibras acinzentadas sobre o rizoma. Toda a parte aérea desaparece no inverno, e a planta rebrota a partir do sistema subterrâneo.
Folhas
As folhas basais são poucas, de zero a duas por indivíduo, e sustentadas por pecíolos longos de 7 a 24 centímetros com bainha dilatada na inserção. O limbo é dividido três a quatro vezes, ocasionalmente cinco, em padrão pinado a ternado-pinado, o que confere à folhagem o aspecto rendilhado típico das umbelíferas. Os folíolos terminais são ovados, raramente lanceolados, medem de 1 a 4,6 centímetros e têm margem recortada a denteada. As folhas caulinares são em número de uma a quatro, progressivamente menores e mais simplificadas em direção ao ápice. Amassadas entre os dedos, liberam odor forte de aipo.
Flores
A inflorescência é uma umbela composta terminal, de topo plano a levemente arredondado, que na frutificação atinge de 4,5 a 15,4 centímetros de diâmetro, excepcionalmente descendo a 3,3 centímetros. O número de raios primários fica entre doze e vinte e um na maioria dos indivíduos, com extremos registrados de seis a trinta e quatro, e cada raio mede de 3,8 a 8 centímetros. Brácteas involucrais em geral estão ausentes, ou aparece apenas uma, ovada a oblonga. As bractéolas do involucelo são lineares e medem de 1 a 6 milímetros. As flores individuais são pequenas, com cinco pétalas brancas ou raramente rosadas e cerca de 2 a 5 milímetros de diâmetro no conjunto; as sépalas são obsoletas, como é regra na família.
Frutos e Sementes
O fruto é um esquizocarpo oblongo-elipsoide, comprimido no sentido dorsiventral, medindo de 5,2 a 7,5 milímetros, com registros extremos de 4,4 a 8 milímetros. As costelas são bem desenvolvidas e alteradas, e nos intervalos entre elas correm de três a cinco vitas, os canais secretores que armazenam os compostos voláteis. Maduros, os mericarpos assumem tonalidade acastanhada a avermelhada. Cada esquizocarpo se separa em dois mericarpos monospérmicos na dispersão.
Rizoma e Raiz
O órgão subterrâneo é a estrutura mais distintiva da espécie. Trata-se de um rizoma grosso e lenhoso, ramificado, coberto externamente por casca enrugada de cor castanho-escura e encimado pela coroa de fibras já mencionada. O interior é amarelado a pardo-claro e exibe canais resiníferos visíveis a olho nu no corte transversal. O aroma é intenso e complexo. Fresco, o tecido é adstringente e provoca irritação na mucosa oral, efeito que desaparece com a secagem.
Distribuição e Habitat
A espécie é nativa das montanhas do oeste da América do Norte. A distribuição principal cobre Arizona, Colorado, Nevada, Novo México, Utah e Wyoming, com ocorrências adicionais documentadas em Idaho e Montana, e se estende ao norte do México pelos estados de Chihuahua, Durango e Sonora, na Sierra Madre Occidental.
O gradiente altitudinal registrado vai de 1.400 a 3.700 metros, mas o grosso das populações se concentra entre 2.200 e 3.400 metros. Há variação latitudinal nítida: no extremo sul da distribuição a planta se restringe às cotas mais altas, enquanto em Utah e Wyoming desce a altitudes bem inferiores. O habitat típico compreende prados subalpinos abertos, clareiras e o sub-bosque de florestas de Abies, Picea, Populus tremuloides e Pseudotsuga, além de margens de cursos d’água montanos. Formações de artemísia figuram entre as vizinhanças frequentes nas bordas mais secas da distribuição.
Quanto ao solo, a exigência é consistente em toda a área de ocorrência: substrato profundo, rico em matéria orgânica, úmido mas bem drenado. A espécie tolera desde sol pleno até sombra densa, o que explica sua presença tanto em prados quanto sob dossel fechado. Não há registro de naturalização da Ligusticum porteri fora de sua área nativa, nem qualquer indicação de comportamento invasor.
Cultivo
A Ligusticum porteri tem reputação bem estabelecida de planta difícil, e a literatura hortícola é consistente ao registrar fracassos em tentativas de cultivo fora das condições montanas de origem. A dependência de associações micorrízicas no solo nativo é apontada como um dos fatores, ao lado da necessidade de frio invernal prolongado e de amplitude térmica acentuada entre dia e noite.
A propagação por semente esbarra em dormência profunda. É necessária estratificação fria prolongada, em alguns casos combinada com estratificação úmida, e mesmo assim a germinação é irregular. Na natureza, o recrutamento por semente é evento raro, e a manutenção das manchas populacionais se dá sobretudo por crescimento e ramificação do rizoma. A divisão de rizoma é tecnicamente viável quando os fragmentos carregam gemas viáveis, porém o estabelecimento é lento e leva anos.
O crescimento é o gargalo central. Estimativas correntes apontam que indivíduos de rizoma desenvolvido têm mais de dez anos de idade, o que torna qualquer ciclo produtivo incompatível com escalas agrícolas convencionais. As experiências de maior sucesso não são de cultivo propriamente dito, e sim de propagação assistida dentro das próprias populações naturais, com semeadura e manejo no local de ocorrência.
Em termos fitossanitários, a espécie não apresenta problemas graves em habitat natural. Afídeos colonizam inflorescências e caules jovens, larvas de lepidópteros papilionídeos usam a folhagem como planta hospedeira, o que é comum entre Apiaceae, e podridões radiculares aparecem quando o solo permanece encharcado sem drenagem. Herbivoria por ungulados e pisoteio por gado são pressões mais relevantes que qualquer praga em sentido estrito.
Fenologia
A floração ocorre no verão, concentrada no curto período favorável do ciclo montano, com pico entre o fim de junho e agosto conforme a altitude e a latitude. A frutificação segue do fim do verão ao início do outono, e as umbelas secas permanecem eretas sobre a planta por algumas semanas antes da queda dos mericarpos.
Como acontece em toda a família, as umbelas atraem um espectro amplo de visitantes florais, entre abelhas, besouros, moscas e vespas. Estudos de biologia da polinização em Apiaceae distinguem, porém, visitantes ocasionais de polinizadores efetivos, e neste último grupo figuram abelhas das famílias Andrenidae, Colletidae e Halictidae. Halictídeos foram observados visitando flores da espécie nas montanhas Chiricahua, no Arizona, em setembro de 2003.
A dispersão é o ponto mais limitante do ciclo. Os mericarpos não são carregados por animais nem transportados de forma eficaz pelo vento, e a observação de campo indica que caem e permanecem nas imediações da planta-mãe. Essa dispersão essencialmente barocórica explica o padrão agregado das populações e a lentidão com que a espécie recoloniza áreas onde foi removida.
Espécies Relacionadas e Confusões
Dentro do gênero, algumas espécies aparecem com frequência em comparações e chaves de identificação:
- Ligusticum canadense (L.) Britton, do leste da América do Norte, de folhagem mais grosseira e habitat de floresta decídua.
- Ligusticum chuanxiong S.H.Qiu et al., táxon chinês de longa história agrícola, hoje frequentemente tratado sob o nome Ligusticum striatum DC.
- Ligusticum filicinum S.Watson, congênere das Rochosas centrais, com folhas ainda mais finamente divididas e rizoma menos aromático.
- Ligusticum grayi J.M.Coult. & Rose, da Cordilheira das Cascatas e da Sierra Nevada, de porte visivelmente menor.
- Ligusticum mutellina (L.) Crantz, espécie alpina europeia dos Alpes e Pirineus.
- Ligusticum scoticum L., planta litorânea do norte da Europa e do nordeste norte-americano, com folhas carnosas e brilhantes.
Sósias Perigosos
Este é o ponto de segurança mais importante do perfil. A Ligusticum porteri é vegetativamente parecida com duas umbelíferas letais que ocorrem no oeste norte-americano, e confusões de identificação já resultaram em envenenamentos fatais.
- Cicuta douglasii e Cicuta maculata: as cicutas-aquáticas contêm cicutoxina e estão entre as plantas mais tóxicas da flora norte-americana. A ingestão de pequena quantidade de rizoma provoca convulsões e morte. Distinguem-se pelo habitat de solo encharcado, brejo ou margem de água parada em altitudes geralmente menores, pelo rizoma com câmaras internas transversais que exsudam líquido amarelado ao corte, pelo odor desagradável e pelos frutos de formato distinto.
- Conium maculatum: a cicuta-venenosa, introduzida da Europa e hoje amplamente naturalizada, contém alcaloides piperidínicos como a coniina, e todas as suas partes são tóxicas. Reconhece-se pelas manchas ou estrias arroxeadas no caule glabro, pelo odor descrito como rançoso ou de urina de roedor, pela raiz branca, carnosa e de pele fina, e pela ausência da coroa fibrosa no colo.
O critério prático mais confiável combina três observações: a coroa de fibras acinzentadas no topo do rizoma, a casca externa castanho-escura e enrugada, e o aroma inconfundível de aipo com nota adocicada. Nenhuma das duas cicutas apresenta esse conjunto. Caule com manchas roxas e raiz branca sem aroma agradável indicam planta tóxica, e a regra corrente entre botânicos de campo é que qualquer dúvida sobre a identidade de uma umbelífera silvestre encerra o assunto.
Fitoquímica
O rizoma da Ligusticum porteri acumula óleo essencial em canais secretores distribuídos pelo córtex, e é nessa fração que se concentra o interesse analítico sobre a espécie. As classes de compostos caracterizadas até aqui são as seguintes.
- Ácidos fenólicos: ácido ferúlico, identificado nos extratos orgânicos do rizoma.
- Cumarinas e furanocumarinas: presentes em concentração modesta quando comparada à de outras Apiaceae.
- Ftalidas diméricas: diligustilida, riligustilida e tokinolídeo B, caracterizadas a partir de extratos hexânicos do rizoma.
- Ftalidas monoméricas: Z-ligustilida, Z-butilidenftalida e os senquiunolídeos F e I.
- Poliacetilenos: falcarinol e falcarindiol, ocorrência comum na família.
- Terpenos: entre os monoterpenos hidrocarbonetos predominam sabineno e p-cimeno; o acetato de trans-sabinila responde pela maior parte da fração de monoterpenos oxigenados. Alfa-pineno, beta-felandreno e mirceno também constam nas análises.
Em análises de óleo essencial de raiz, as ftalidas responderam por cerca de 44% do total e os sesquiterpenos por aproximadamente 11%. A quantificação por cromatografia líquida de alta eficiência mostrou teores de Z-ligustilida entre 0,15% e 2,5% e de diligustilida entre 0,002% e 1,0%, faixas amplas que refletem variação de procedência, idade do material e condições de secagem. A distribuição na planta é desigual: rizoma e raiz concentram a fração volátil, enquanto folhas e frutos apresentam perfis menos ricos, ainda que os frutos também possuam vitas bem desenvolvidas.
História e Etnobotânica do Oshá
A espécie recebeu descrição formal em 1888, a partir de material das Montanhas Rochosas do Colorado, mas já circulava havia séculos no conhecimento botânico dos povos da região. Registros etnográficos reunidos ao longo do século XX documentam o emprego do rizoma por nações do sudoeste norte-americano, entre elas Apache, Diné, Tarahumara e povos Pueblo, bem como sua incorporação posterior às práticas das comunidades hispânicas do Novo México, onde a planta ficou conhecida como oshá de la sierra.
A literatura etnobotânica registra que o rizoma era preparado sob a forma de infusões e tinturas, e que os caules ocos foram empregados fumados em determinados contextos. Fontes do século XX descrevem ainda o uso externo de preparações da raiz. Esses são registros históricos de práticas documentadas por etnógrafos, não descrições de procedimentos vigentes.
A designação “raiz-de-urso” tem origem observacional. Relatos recolhidos entre povos das Rochosas descrevem ursos escavando e mastigando os rizomas ao emergir da hibernação, e esfregando o material na pelagem. A observação circulou amplamente e foi incorporada tanto às narrativas indígenas quanto à literatura naturalista do século XIX, tornando-se o traço mais citado sobre a planta fora dos círculos botânicos.
Do lado da botânica acadêmica, a espécie entrou no radar comercial norte-americano no fim do século XX. O crescimento da demanda por raiz seca ao longo dos anos 1990 levou o Serviço Florestal dos Estados Unidos a impor, em 1999, uma moratória de três anos sobre a coleta em duas de suas regiões administrativas, episódio que marca o início do tratamento da Ligusticum porteri como questão de conservação.
Conservação
A avaliação global da União Internacional para a Conservação da Natureza classificou a espécie como Pouco Preocupante (LC) em 2020, com base na amplitude da distribuição e na abundância relativa das populações conhecidas. Essa avaliação convive com leituras regionais mais cautelosas. A NatureServe atribuiu à espécie a categoria G3, vulnerável em escala global, e classifica as populações como S3 no Colorado e em Utah, e S4 no Wyoming.
A Ligusticum porteri não consta de nenhum apêndice da CITES. Chegou a ser proposta para consideração no ano 2000, com base em relatório produzido por um programa universitário de biologia da conservação, mas a proposta não avançou. Também não figura em listas federais de espécies ameaçadas dos Estados Unidos, e nenhum estado do oeste norte-americano proíbe a coleta em terras estaduais. A organização United Plant Savers a mantém em sua lista de espécies em risco.
As ameaças documentadas se somam de forma desfavorável:
- Coleta destrutiva: a extração do rizoma remove o indivíduo inteiro, e a lentidão do crescimento faz com que a reposição populacional leve mais de uma década.
- Exploração madeireira e veículos fora de estrada: alteram o dossel e compactam o solo dos prados subalpinos.
- Mudanças climáticas: o aquecimento tende a comprimir a faixa altitudinal adequada, empurrando o habitat viável para cotas cada vez mais estreitas.
- Pastoreio excessivo: a herbivoria por rebanhos reduz a produção de sementes já naturalmente escassa.
Um agravante de fundo é a escassez de dados. Não existem programas abrangentes de monitoramento de populações da espécie, e a informação disponível cobre desigualmente sua área de ocorrência. Estudos iniciais sugerem que as populações podem suportar níveis baixos de remoção de rizoma, mas os efeitos de longo prazo permanecem mal caracterizados.
Curiosidades
- Todos os topônimos norte-americanos que contêm o elemento “Oshá” se localizam no Novo México, invariavelmente próximos a comunidades hispânicas históricas, o que ajudou linguistas a rastrear a difusão regional do nome.
- A espécie é uma das poucas plantas de interesse comercial que resistiram, de forma consistente, a todas as tentativas sérias de domesticação agrícola, ao ponto de a estratégia de manejo recomendada ser semear dentro das próprias populações silvestres.
- O aroma do rizoma é tão específico que serve como critério de identificação em campo mais confiável que qualquer caractere foliar, situação incomum em botânica descritiva.
- A moratória de coleta imposta em 1999 pelo Serviço Florestal norte-americano teve efeito comercial duradouro: o comércio de raiz silvestre seca nunca voltou a atingir sequer 10% dos volumes anteriores, e material cultivado ganhou peso no mercado a partir de 2002.
- O gênero Ligusticum, distribuído por todo o Hemisfério Norte temperado, vem se revelando artificial nas análises moleculares, e a redistribuição de suas espécies por outros gêneros é um dos rearranjos em curso na sistemática das Apiaceae.
Aviso: este conteúdo é informativo e não substitui orientação de profissional de saúde. Consulte um médico ou fitoterapeuta antes de usar plantas medicinais, especialmente na gravidez, na lactação ou em uso de medicamentos.
Referências e Estudos Científicos
Ver Todas as 13 Referências Citadas
Estudos Científicos Peer-Reviewed (1)
- PEER NatureServe. NatureServe Explorer: Ligusticum porteri. Arlington, Virgínia. ↗
Leituras Complementares (12)
- 2014 Collin, G.; Gagnon, H. Composition of the essential oil and the hydrosol of the roots of Ligusticum porteri. American Journal of Essential Oils and Natural Products. 2014.
- Coulter, J. M.; Rose, J. N. Revision of North American Umbelliferae. Crawfordsville. 1888.
- 1992 Delgado, G. et al. Phthalides and Monoterpenes of the Hexane Extract of the Roots of Ligusticum porteri. Heterocycles. 1992.
- Flora of North America Editorial Committee. Ligusticum porteri. Flora of North America North of Mexico, vol. 13. Oxford University Press, Nova York e Oxford.
- International Plant Names Index (IPNI). Ligusticum porteri J.M.Coult. & Rose. Royal Botanic Gardens, Kew; Harvard University Herbaria; Australian National Herbarium. ↗
- 2020 IUCN. The IUCN Red List of Threatened Species: Ligusticum porteri. Versão 2020. ↗
- 2011 León, A. et al. Phthalides and other constituents from Ligusticum porteri. Natural Product Research, 25(13). 2011.
- Mathias, M. E.; Constance, L. Studies in the Umbelliferae. Bulletin of the Torrey Botanical Club, 68, 123. 1941.
- Pollinator Partnership. Medicinal Plant Fact Sheet: Ligusticum porteri / Osha. São Francisco, Califórnia.
- POWO. Plants of the World Online: Ligusticum porteri J.M.Coult. & Rose. Royal Botanic Gardens, Kew. ↗
- Rydberg, P. A. Flora of the Rocky Mountains and Adjacent Plains. Nova York. 1917.
- United Plant Savers. Species At-Risk Assessment: Osha, Ligusticum porteri. Rutland, Ohio. ↗