Camellia sinensisは、その葉が世界のあらゆる本物の茶の元になる、広葉の常緑低木である。緑茶、白茶、黄茶、烏龍茶、紅茶、プーアル茶は異なる植物ではない。それらは単一の種の産物であり、葉が摘まれる段階とその後に施される酸化の程度によって区別される。この植物はツバキ科に属し、ツツジ目に含まれる木本のグループで、アジアとアメリカ大陸の熱帯および亜熱帯地域に分布する約9属を含む。
本種の原産域は東ヒマラヤ、中国南部、インドシナ北部にまたがり、湿潤な亜熱帯林の帯であり、そこでは林床の樹木として生育する。何世紀にもわたる栽培により、この森林性の低木は、食用イネ科植物に次いで世界で最も広く栽培されている多年生作物へと変貌し、60か国以上で商業栽培が行われ、その内部の形態的変異は非常に顕著であるため、現代の分類学では同じ名前の中に5つの植物学的変種が認められている。
以下の文章は、飲み物ではなく植物そのものを扱う。IPNIおよびPlants of the World Onlineによって検証された正式な分類と異名、野外での識別形質、生態と原産分布、栽培の農学的手法、フェノロジーの暦、庭で混同を引き起こす同属の種、文献に記載された化学組成、植物学的歴史、保全状況をまとめたものである。
この植物の伝統的な用途、特性、調製方法については、記事緑茶(Camellia sinensis):特性と伝統的な用いられ方を参照してください。
分類
承認されている学名はCamellia sinensis (L.) Kuntzeであり、International Plant Names Indexの登録番号828548-1で確認されており、Plants of the World Onlineでも承認された名として認められている。現在の組み合わせは1887年にオットー・クンツェが『Revisio Generum Plantarum』で発表したもので、リンネが1753年にThea sinensisとして記載した基礎異名をCamellia属に移したものである。以下の分類はキューが採用する区分に従う。
- 界: 植物界
- 門: 被子植物門(伝統的な命名法ではMagnoliophyta)
- 綱: Equisetopsida(旧分類ではMagnoliopsida)
- 亜綱: モクレン亜綱(Magnoliidae)
- 目: ツツジ目(Ericales)
- 科: ツバキ科(Theaceae Mirb.)
- 属: Camellia L.
- 種: Camellia sinensis (L.) Kuntze (1887)
異名
古い文献が示唆するのとは異なり、今日承認されている異名は少ない。Plants of the World Onlineは2つの名前のみを認めている。
- Camellia thea Link (1822)、無効かつ余剰な名前
- Thea sinensis L. (1753)、基礎異名
二次資料であまり正しく伝わっていない訂正事項がある。Thea bohea L.やThea viridis L.といった名前は、19世紀の文献でそれぞれ紅茶と緑茶の植物を指すものとして頻繁に引用されてきたが、この区別を裏付けるものではない。この2つの製品の違いは決して植物学的なものではなく、収穫後の加工の問題であり、分類学は最終的にすべてを単一の種名の下にまとめることでこれを確定した。
承認されている変種
Plants of the World Onlineは5つの種内変種を認めており、そのうち2つが世界生産のほぼすべてを占める。
- Camellia sinensis var. assamica (Royle ex Hook.) Steenis: 高木性の樹形、大きく薄い膜質の葉、湿潤な熱帯気候に適応している。アッサム、スリランカ、ケニア、東南アジアで優勢。
- Camellia sinensis var. dehungensis (Hung T.Chang, H.S.Wang & B.H.Chen) T.L.Ming: 雲南省の変種で、分布が限定されている。
- Camellia sinensis var. madoensis T.V.Nguyen, V.D.Luong & N.Trieu Le: ベトナム向けに記載され、少数の個体群からのみ知られている。
- Camellia sinensis var. pubilimba Hung T.Chang: 葉裏、特に主脈に沿った密な毛で識別できる。中国南部に分布する。
- Camellia sinensis var. sinensis: 典型的な変種で、低木性、小型で革質の葉を持ち、耐寒性がある。中国東部、日本、韓国、台湾の茶園を支配する。
農学文献に頻出する古いvar. cambodiensisは承認されたタクソンには含まれず、現在はvar. assamicaの区分内で扱われる材料に相当する。
語源
属名は、1661年から1706年まで生きたモラヴィア出身のイエズス会士、ゲオルク・ヨーゼフ・カメルに敬意を表してリンネが作った名前であり、彼はフィリピンの植物相の研究に従事し、自身の姓をラテン語化してカメルスとした。種小名sinensisは後期ラテン語に由来し、「中国の」を意味し、西洋科学に知られた最初の標本がヨーロッパに到着した地域を指すが、本種の原産域は中国の国境をはるかに超えて広がっている。多くの言語における飲み物の俗称は別の経路をたどっている。「tea」の形は福建省南部のアモイ方言の発音を反映しているのに対し、「cha」系統の形は広東語と北京語における漢字「茶」の発音を反映しており、それぞれの地域がこの産物を受け取った海路を映し出している。
形態的特徴
樹形は変種と管理方法によって大きく異なる。剪定せずに育てるとvar. assamicaは森林内で高さ15メートルに達する単幹の高木を形成するが、var. sinensisは根元から分枝する低木のまま、1.5から5メートルにとどまる。商業栽培ではこの両極端は姿を消し、繰り返される剪定によって植物は高さ1から1.5メートルに保たれ、実際に利用される構造である摘採台と呼ばれる密で水平な新芽の面の形成が誘導される。樹皮は滑らかで灰褐色を帯び、樹冠は丸みを帯びたコンパクトな形になる傾向がある。
葉
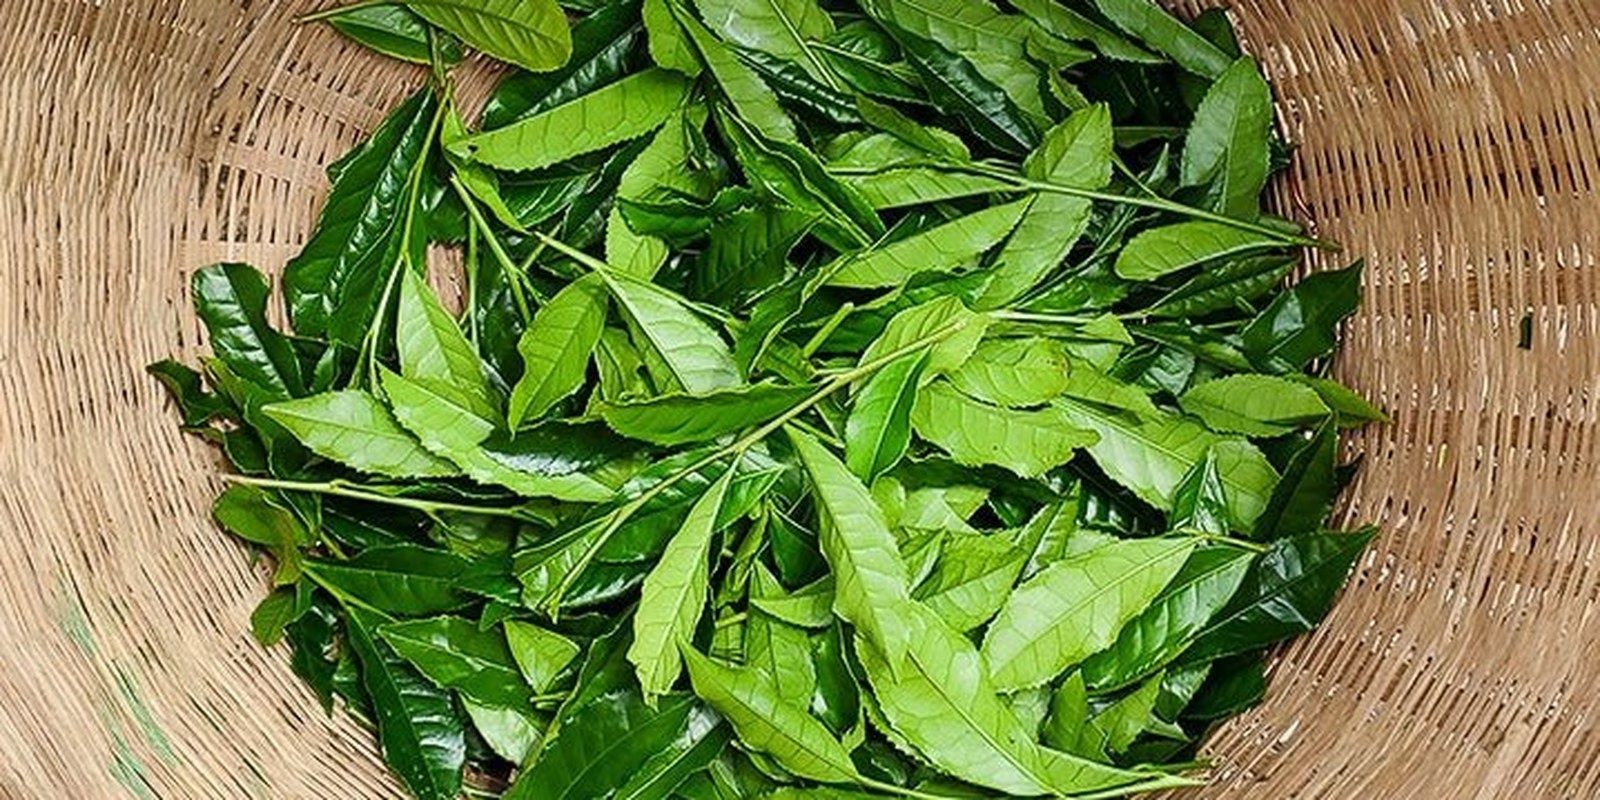
竹かごに入れられたCamellia sinensisの摘みたての葉。楕円状披針形の葉身、細かく鋸歯状の縁、そして縁に達する前に湾曲する側脈が、野外でこの種を識別するために使われる特徴の組み合わせを形成している。
葉は互生し、単葉で常緑、革質の質感を持ち、長楕円状披針形から楕円形の葉身を持つ。長さは2つの主要変種を最もよく区別する形質であり、var. sinensisでは4から8センチメートル、var. assamicaでは10から25センチメートルの範囲で、幅は2から8センチメートルである。上面は濃緑色で光沢があり、下面はより淡く艶消しである。縁は細かく規則的な鋸歯があり、葉脈は羽状で、下面で隆起し縁に達する前に湾曲する7から9対の側脈がある。葉柄は短く、5から10ミリメートルである。まだ閉じている頂芽は銀白色の毛で覆われており、この特徴がシルバーティップ型の商業的名称の由来となっている。
花
花は両性花で、葉腋に単独または2から4個の群れで生じ、短く反曲した花柄に支えられる。直径は2から4センチメートルで、5から8枚、通常は7枚の花弁を持ち、白色からクリーム色で、わずかに芳香があり、繊細な質感を持つ。萼片は5から6枚で緑色を帯び、宿存性である。雄しべ群は多数で、200から300本の黄色い花糸が基部で合着し、橙色の葯を持ち、本属の開花を特徴づける豪華な円盤を形成する。花柱は3裂した柱頭で終わる。送粉は虫媒であり、主にハチ類と小型甲虫に依存する。本種はほぼ自家不和合性であり、この性質が種子から得られた植物の高い変異性と、現代の栽培が栄養繁殖を好む理由を説明している。
果実と種子
果実は木質で滑らかな蒴果で、成熟時には褐色を帯び、直径2から3センチメートル、稔性のある室の数に応じて3裂または4裂した形状を持つ。裂開様式は室背裂開である。各蒴果には直径1から1.5センチメートルの球形の種子が1から4個含まれ、褐色の種皮と脂質に富んだ胚乳を持ち、これは乾燥重量の15から22パーセントを占める。成熟は遅く、開花後9から12か月を要するため、前サイクルの花と果実が同じ枝上で1年の大部分にわたって共存する。
根と茎
実生は明確な主根を発達させるが、成木では側根が豊富で土壌に応じて1から3メートルの有効な深さを持つ複合的な根系にとって代わられる。この深さは短期間の干ばつへの耐性を決定する主な要因である。根系は長期の冠水に敏感で、締め固まった土壌や高い地下水位には反応が悪く、これが排水の良い斜面を好む農学的理由を説明している。茎は木質化しており、豊富な仮軸分枝を示し、収穫時に利用される新芽の密度を支える節が密に配置される。
分布と生育地
Plants of the World Onlineによれば、原産域は東ヒマラヤから中国南部、そして海南島を含むインドシナ北部にまで及ぶ。認められている登録単位は、アルファベット順に、アッサム、中国中南部、中国南東部、海南島、東ヒマラヤ、ラオス、ミャンマー、タイ、ベトナムである。
生育するバイオームは湿潤亜熱帯バイオームである。自然状態では、この植物は酸性で深く有機物に富んだ土壌の上、標高数百メートルから2000メートル以上の常緑斜面林の林床を占める。酸性度の要求は厳格であり、pH4.5から6の範囲が世界の生産地理の多くを決定づけている。本種は部分的な日陰に耐え、この条件は原産地の森林環境を再現するものであり、日本の農学はこれを意図的な栽培技術へと転換した。
原産域外では、栽培は地球上の熱帯・亜熱帯帯全域に広がっている。最大の生産中心地は中国、インド、ケニア、スリランカ、トルコ、ベトナム、インドネシアにあり、日本、台湾、ジョージア、イラン、ルワンダ、マラウイ、アルゼンチン、ブラジルでは小規模な栽培が行われている。ブラジルでの栽培はサンパウロ州のヴァレ・ド・ヒベイラに集中しており、1930年代にイグアペ、パリケラアスー、レジストロの各市町村で日本人移民によって始められ、パラナ州北部にも小規模な拠点がある。
栽培
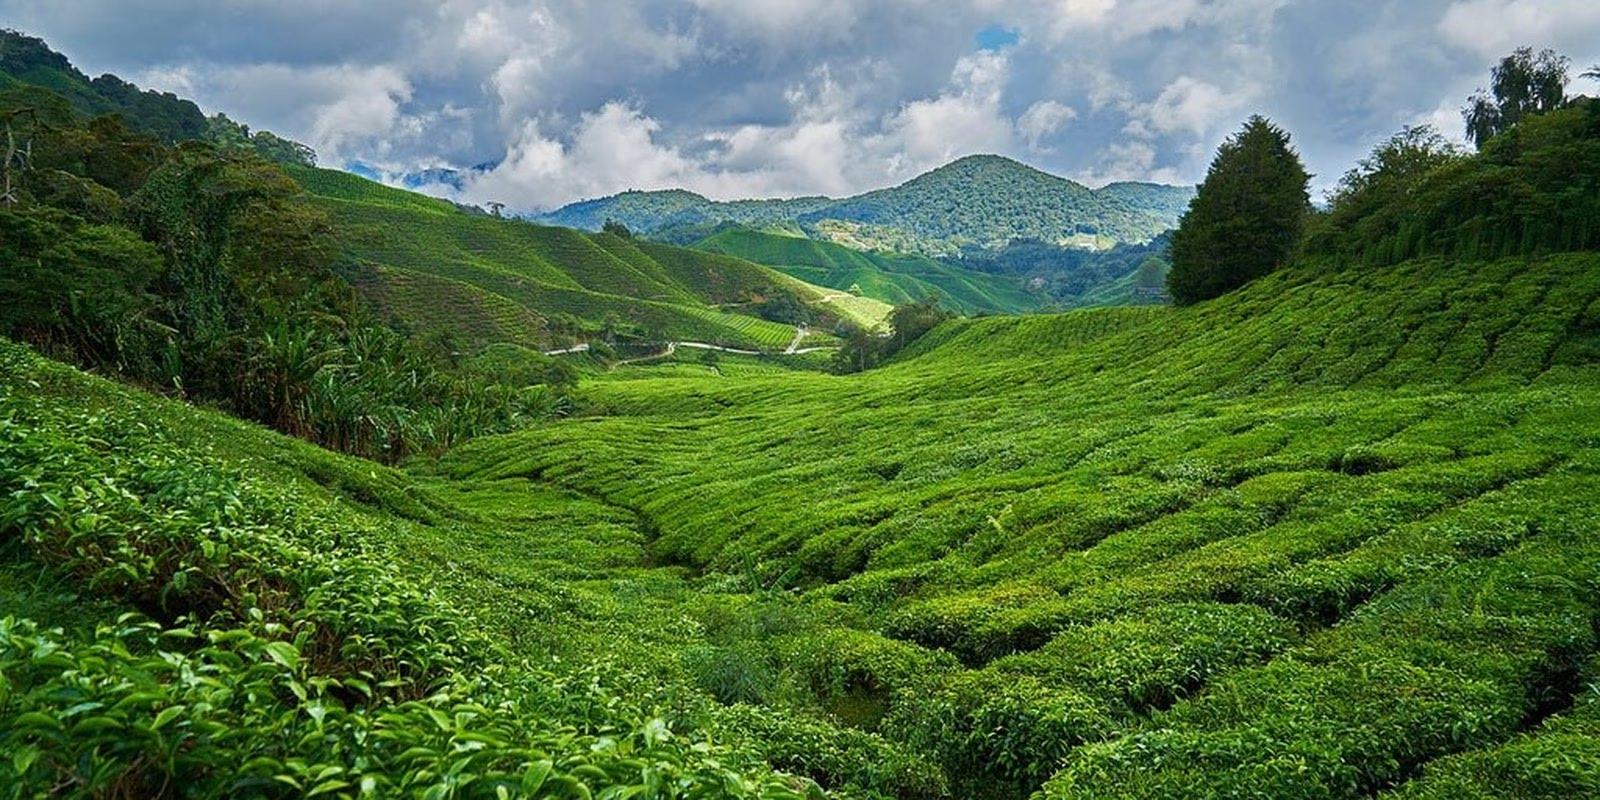
熱帯の丘陵斜面にあるCamellia sinensisの商業的な茶園。維持管理のための剪定が摘採の高さを保ち、酸性で排水の良い土壌の上に、摘採台として知られる連続した新芽の面を作り出している。
商業的な繁殖はほぼ完全に半木質挿し木によって行われ、1枚か2枚の葉を持つ長さ5から8センチメートルの挿し穂をオーキシンで処理し、湿った基質で60から90日かけて発根させる。この選択は本種の自家不和合性によって正当化され、種子由来の子孫は均一な栽培には不均一すぎる。播種は育種プログラムや小規模な家族経営の農場では依然として使われており、発芽には60から120日を要する遅い過程であり、組織培養は選抜された品種の急速な繁殖のために開発が進められている。
土壌気候条件は狭い範囲に限られる。適切な温度範囲は年間を通じて摂氏15度から28度の間にあり、var. sinensisはゼロに近い最低気温に耐えるが、var. assamicaは少なくとも12度を必要とする。厳しい霜は致命的である。必要な年間降水量は1500から3000ミリメートルで、よく分布し、相対湿度は70から90パーセントの間であり、強く持続的な風は商業栽培において防風林を必要とするのに十分な葉の損傷を引き起こす。
通常の株間は、畝間1.2から1.5メートルと株間60から80センチメートルを組み合わせ、1ヘクタールあたり1万から1万4000株の密度をもたらす。窒素は集約栽培において最も要求される養分であり、次いでカリウム、リン、亜鉛が続く。管理は3種類の異なる機能を持つ剪定に依存する。最初の3年間に行われる整枝剪定は側方成長を促し摘採台を築く。毎年または2年ごとに行われる維持剪定は摘採の高さを保ち発芽を刺激する。8年から12年ごとに行われる更新剪定は樹冠を再構築するために植物を30または50センチメートルまで低くする。
収穫は各枝の成長端のみを利用し、単一の新芽から新芽プラス2枚の葉の組み合わせまで、確立された基準に従う。高価値の茶園は手摘みされ、大規模生産では機械化が対応する。植物は3年目頃に商業生産に入り、10年から30年の間にピークを迎え、適切な管理のもとで5から10年代にわたって生産的であり続ける。
フェノロジー
年間サイクルは、長い栄養成長期と季節後半に集中する開花を組み合わせている。新芽の萌芽は、農学文献で「フラッシュ」として知られる連続した波として起こり、成長期を通じて7から14日の間隔で区切られる。熱帯気候では、この過程はほぼ年間を通じて連続的である。温帯または亜熱帯気候では、春から秋にかけて4から6回の波に集中し、明確な冬季休眠を伴う。
開花は秋から初冬にかけて起こり、北半球では9月から1月、南半球では3月から7月に相当する。各花はわずか数日間しか受粉可能でない。結実は遅く、蒴果は9から12か月後に成熟するため、成熟した果実の落下はほぼ次の開花期と一致する。頻繁に剪定される茶園では、先端の絶え間ない除去が成長を栄養的な新芽に振り向け、花芽の形成を制限するため、開花は大幅に減少する。
Camelliaの近縁種と混同されやすい種
Camellia属は東アジアと東南アジアに集中する約250種の承認された種を含む。庭や苗圃では、特に開花期以外に混同が頻繁に起こる。
- Camellia japonica L.:(ヤブツバキ)古典的な観賞用ツバキで、数万に及ぶ登録品種がある。幅広く厚い葉が強い光沢を持ち、5から13センチメートルの大きな花が赤、ピンク、白の色合いで冬の終わりから春にかけて咲くことで区別される。茶生産への応用はない。
- Camellia nitidissima Chi:(キンカチャ)金色の花で知られる中国原産の種で、本属では非常に稀な例である。限られた生育地と強い採取圧により、中国で法的保護を受けている。
- Camellia oleifera Abel:(茶油樹)中国南部で大規模に栽培される油用ツバキで、種子から食用および化粧品用の油が抽出される。樹形と葉はC. sinensisに似ているが、花はより大きく、蒴果ははるかに大型である。
- Camellia reticulata Lindl.:(トウツバキ)雲南省原産で、本属最大の花を持ち、直径15センチメートルに達し、明瞭な網状脈を持つ葉を持つ。専ら観賞用。
- Camellia sasanqua Thunb.:(サザンカ)秋に開花する日本の観賞用植物で、より小さく薄い葉と、白色からピンク色の5から7センチメートルの中型の花を持つ。種子からも油が採れる。
- Camellia taliensis (W.W.Sm.) Melch.: 最も近縁な野生種で、雲南省と北部ミャンマーに自生する。細かな花の形質で区別され、その遺伝的近縁性から栽培茶の起源に関する研究の中心的存在となっている。
最も一般的な2種の観賞用種との実用的な識別基準は一貫している。C. sinensisの花は小さく白色で、目立つ黄色い雄しべを持つのに対し、C. japonicaの花は大きくしばしば八重咲きである。葉は両種よりも細く、鋸歯もより細かい。そして開花時期も助けになる。C. sasanquaは秋に、C. sinensisは秋から初冬に、C. japonicaは冬の終わりから春に開花する。
植物化学
Camellia sinensisの葉は化学的に最も特徴づけられた植物材料の一つであり、以下の記述は厳密に組成に関するものである。文献に記録されているグループは、アルファベット順に以下の通りである。
- 遊離アミノ酸: L-テアニン、すなわちガンマ-グルタミルエチルアミドは、優勢な非タンパク質アミノ酸であり、若葉の可溶性窒素の大部分を占める。その濃度は強い光の下で低下し、遮光下で上昇する関係にあり、日本の農学は覆いを施した茶園でこれを利用している。
- カロテノイドと揮発性誘導体: ルテイン、ベータカロテン、ネオキサンチンであり、それらの酸化分解はイオノン類やテルペノイド類に属する揮発性化合物を生成し、加工された葉の香気プロファイルを構成する。
- フラボノールとフェノール酸: ケンフェロール、ミリセチン、ケルセチンの配糖体、没食子酸、クロロゲン酸、クマロイルキナ酸。
- メチルキサンチン類: カフェインが主要なもので、若葉の乾燥重量の2から4パーセントの濃度で存在し、はるかに少量のテオブロミンとテオフィリンを伴う。これらはプリンアルカロイドであり、生態学の文献では植食に対する防御と関連づけられている。
- フラバン-3-オール型ポリフェノール: 最も豊富なグループで、若葉の乾燥重量の約20から30パーセントに相当する。エピガロカテキンガレート、エピガロカテキン、エピカテキンガレート、エピカテキン、およびそれに対応する非エピマー型カテキンを含む。
- トリテルペンサポニン: 主に種子と根皮に濃縮されているテアサポニン。
感覚的な観点からは、この組成が素材の挙動を説明する。フラバン-3-オール類は渋味と苦味を、テアニンはうま味と表現される感覚を担い、メチルキサンチン類は苦味の下地に寄与する。収穫後の加工はこの様相を根本的に変える。葉が揉まれて空気にさらされると、細胞破壊によって放出されたポリフェノールオキシダーゼがフラバン-3-オール類をテアフラビンとテアルビジンという橙色から赤みを帯びた色素へと変換する。茶の種類を分けるのはこの変換の度合いであり、植物間の何らかの違いではない。
種子から抽出される油は主にオレイン酸で構成され、リノール酸、パルミチン酸、ステアリン酸の少量の画分を伴い、オリーブオイルに近いプロファイルを持つ。
毒性に関する注意事項は、いかなる用途とも関係なく当てはまる。葉と葉の残渣にはカフェインとテオブロミンが含まれており、これらのメチルキサンチン類をゆっくりと代謝する犬、猫、馬、家禽にとって現実的な中毒リスクとなる濃度である。乾燥または湿った植物材料をペットが近づける堆肥に廃棄する場合は注意が必要である。種子由来のテアサポニンも刺激性があり魚毒性があると記載されている。
歴史と民族植物学
中国の伝統では、この浸出液の発見は紀元前2737年頃に位置づけられる伝説上の皇帝、神農に帰せられるが、これは建国神話の領域に属する物語であり、歴史的記録ではない。検証可能な文献記録はずっと後に始まる。陸羽が唐代の760年から780年の間に著した論考『茶経』は、この植物とその加工に完全に捧げられた最古のテキストであり、そこにはすでに栽培、収穫、葉の分類に関する記述が見られる。この植物は同時期の中国の本草書にも登場し、東アジア全域での消費の広がりは仏教の伝播とともに進み、9世紀初頭には僧侶が種子を日本へ持ち込んだ。
ヨーロッパとの接触は遅く、間接的なものだった。ポルトガルとオランダの商人が17世紀にこの産物をヨーロッパにもたらしたが、この植物は数十年にわたって西洋の植物学には知られないままだった。オランダ東インド会社に仕えたドイツ人医師エンゲルベルト・ケンペルは、1690年から1692年にかけて日本での栽培を観察し、直接の観察に基づく最初のヨーロッパの記述を発表した。リンネが1753年の『Species Plantarum』でThea sinensisを確立したのは、この資料と中国から送られた乾燥標本に基づくものだった。1887年にオットー・クンツェによって提案されたCamellia属への最終的な移行は、1世紀以上にわたる命名法上の不安定さに終止符を打った。
農学上最も大きな影響を持つ出来事はインド北東部で起こった。広葉の野生個体群は1823年頃にロバート・ブルースによってアッサムで記録され、植物学的な確認は翌十年に行われ、1839年からイギリス東インド会社のもとでこの地域における商業栽培の確立への道が開かれた。その数年後、1848年から1851年にかけて、スコットランド人の植物学者ロバート・フォーチュンが同じ会社の依頼を受け、中国で入手した数千の挿し木と種子を専門の労働者とともにインドへ運び、この作戦が中国の独占を打ち破り、栽培の世界地理を再編した。
原産地の社会では、この植物は農業の領域を超えた存在となった。16世紀に千利休によって形式化された日本の茶の湯であるchanoyuと、中国南部の淹れ方の慣習は、何世紀にもわたって続く社交の形を確立した。雲南省の古木の葉は塊に押し固められ、この地域をチベットと結ぶ交易路に沿った交換手段として用いられた。
保全状況
IUCNレッドリストはCamellia sinensisを情報不足、カテゴリーDDに分類している。この分類とこの種の農業的な遍在性との間の一見した矛盾には単純な説明がある。評価の対象は、境界が不明瞭で古い野生化した茶園と区別しにくい野生個体群であり、世界で500万ヘクタールを超える栽培面積ではない。本種はCITESの付属書には掲載されていない。
真の保全上の懸念は別の性質のものである。種子由来の伝統的で多様な茶園を、少数の品種に由来するクローン単一栽培に置き換えたことは、栽培の遺伝的基盤を著しく狭めており、中国、インド、日本の遺伝子バンクは古いアクセッションを保存することでこれを補おうとしている。雲南省には数百年の樹齢を持つ大木が生き残っており、生物学的遺産として扱われ一部は保護区域に含まれているが、その葉に付けられた商業的価値のために採取圧にさらされている。気候変動は生産地域に不均等に影響を与えており、ダージリンでは適切な標高帯の移動、スリランカでは季節の不規則性、東アフリカでは極端現象の増加が見られる。
同属の他の種ではさらに深刻な状況にある。C. nitidissimaを含む中国南部とベトナム北部の複数の黄花ツバキ類は、限られた生育地に生息し、激しい違法採取を受け、脅威カテゴリーに分類されており、本属のいくつかの種はすでに野生絶滅とみなされている。
豆知識
- 属名で称えられているイエズス会士ゲオルク・ヨーゼフ・カメルは、1706年にマニラで、茶の植物を一度も見ることなく亡くなった。この献名はリンネによるものであり、種そのものとは関係がなかった。
- 「チャ」と「ティー」という形の世界的な二分法は交易の地理を反映している。陸路で製品を受け取った言語は「チャ」の変種を採用し、アモイ港を通じて海路で受け取った言語は「ティー」の変種を採用した。
- 収穫前の数週間に植物に届く光を減らすことでテアニン含有量が上がり、カテキン含有量が下がる。茶園を覆うこの技術は、宇治の覆下茶の生産を何世紀にもわたって支えてきた。
- ウンカの一種Empoasca onukiiは生産地域のほぼ全域で害虫だが、台湾ではその被害が意図的に許容されている。刺されることへの植物の反応が葉の揮発性プロファイルを変化させ、東方美人として知られる烏龍茶を生み出す。
- 蒴果が成熟するのにほぼ1年かかり、植物が再び開花している間にその終点に達するため、異なるサイクルの花と果実が同じ枝の上で何か月も共存する。
- 1908年に杉山彦三郎によって選抜された日本の品種「やぶきた」だけで、日本の栽培面積の70パーセント以上を占めており、遺伝子バンクを悩ませる遺伝的狭窄の極端な例となっている。
ご注意:本コンテンツは情報提供を目的としており、医療専門家の助言に代わるものではありません。薬用植物を使用する前に、特に妊娠中、授乳中、または薬を服用中の場合は、医師または専門家にご相談ください。
参考文献と科学的研究
引用文献10件をすべて見る
査読済み科学研究 (4)
- DOI2012 Chen, L.; Apostolides, Z.; Chen, Z. M. (eds.). Global Tea Breeding: Achievements, Challenges and Perspectives. Springer, Berlin. 2012. ↗
- DOI2020 Hazra, A.; Saha, P.; Das, A. Genetic Diversity and Breeding of Tea (Camellia sinensis L.). In: Cash Crops. Springer, Cham. 2020. ↗
- DOI2014 Mondal, T. K. Breeding and Biotechnology of Tea and its Wild Species. Springer India, New Delhi. 2014. ↗
- DOI2014 Owuor, P. O.; Kamau, D. M. The Conservation of Tea Genetic Resources. Plant Genetic Resources, 12(S1), S100-S104. 2014. ↗
公的機関の情報源 (1)
- GOV2007 Ming, T. L.; Bartholomew, B. Theaceae. In: Flora of China, vol. 12. Science Press and Missouri Botanical Garden Press, Beijing and Saint Louis. 2007. ↗
補足資料 (5)
- IPNI. International Plant Names Index: Camellia sinensis (L.) Kuntze, registro 828548-1. Royal Botanic Gardens Kew, Harvard University Herbaria and Australian National Botanic Gardens. ↗
- Kuntze, O. Revisio Generum Plantarum, vol. 1. Arthur Felix, Leipzig. 1891. ↗
- Linnaeus, C. Species Plantarum, vol. 1, p. 515. Laurentius Salvius, Stockholm. 1753. ↗
- POWO. Plants of the World Online: Camellia sinensis (L.) Kuntze. Royal Botanic Gardens, Kew. ↗
- Royal Botanic Gardens, Kew. Tea Plant: Camellia sinensis. Kew Science, Plant Profiles. ↗