Cordia luteaは、よく分枝する低木または小高木で、ムラサキ科に属し、一年の大半にわたって樹冠を覆う黄色いラッパ状の花で遠くからでも見分けがつく。この種は南米西部の乾燥した低地、コロンビアからペルーにかけて分布し、ガラパゴス諸島にも達しており、そこでは乾燥した沿岸地帯で最も一般的な在来植物のひとつに数えられる。ペルー北西部の乾燥林では、この植物は景観を構成する要素であり、アルガロボやサポテの木と低木層を分かち合っている。
一般名は地域によって異なる。ムユユはエクアドルとガラパゴスで使われる一般的な呼び名であり、ペルー北部ではオベロおよびフロール・デ・オベロが使われる。英語ではこの植物にイエロー・ガイガーという園芸名が付けられており、Cordia sebestenaに用いられるオレンジ・ガイガーと対をなす。日本語ではこの種の定着した一般名は存在せず、そのため苗木業者や標本館でこの植物を探す際には学名が最も確実な手がかりとなる。
Cordia luteaを特筆すべきものにしているのは観賞価値だけではない。よく文書化された異型花柱性の繁殖システムを持つ数少い新熱帯区のムラサキ科植物のひとつであり、昆虫の少ない海洋島において昼行性と夜行性のポリネーター(送粉者)のネットワークを支え、アンデスや沿岸の共同体が糊として利用したほど粘液質な果肉を持つ果実をつける。本プロフィールは、正式な分類、識別のための形態、乾燥地帯の生態、記述的な植物化学、そして現在の利用を推奨するものではない歴史的な利用の記録をまとめたものである。このサイトのもうひとつの詳しい植物学プロフィールとして、Camellia sinensis(緑茶)もあわせて参照されたい。
Cordiaの分類
Cordia luteaはAPG IVが採用する広義のムラサキ科(Boraginaceae)に属し、ムラサキ亜科(Cordioideae)に含まれる。一部の文献ではCordiaceaeを独立した科として扱うが、この扱いは本種の相対的な位置づけを変えるものではない。Cordia属は数百の汎熱帯性種を含み、新熱帯区で最も多様性が高い。
- 界: 植物界
- 門: 維管束植物門(被子植物)
- 綱: 双子葉植物綱(Magnoliopsida)
- 目: ムラサキ目(Boraginales)
- 科: ムラサキ科(Boraginaceae Juss.)
- 亜科: Cordioideae
- 属: Cordia L.
- 種: Cordia lutea Lam., 1791
原記載はジャン=バティスト・ド・ラマルクによる『Tableau encyclopédique et méthodique des trois règnes de la nature, Botanique』第1巻421ページに1791年に発表された。この登録はInternational Plant Names Indexに識別番号274993-2として記録されており、Plants of the World Onlineはこの学名を承認された名前として維持しており、現在有効な再結合の提案はない。
異名は長く、19世紀から20世紀にかけてムラサキ目が経た度重なる属の再編成を反映している。Plants of the World Onlineは以下を含む約十二の下位名を認めている。
- Calyptracordia rotundifolia(Ruiz & Pav.)Friesen
- Coilanthera rotundifolia(Ruiz & Pav.)Raf.
- Cordia flava(Andersson)Gürke
- Cordia marchionica Drake
- Cordia rotundifolia Ruiz & Pav.
- Ectemis lutea(Lam.)Raf.
- Firensia lutea(Lam.)Raf.
- Gerascanthus luteus(Lam.)Borhidi
- Gerascanthus rotundifolius(Ruiz & Pav.)Friesen
- Lithocardium flavum(Andersson)Kuntze
- Lithocardium rotundifolium(Ruiz & Pav.)Kuntze
- Varronia flava Andersson
- Varronia rotundifolia(Ruiz & Pav.)A. DC.
命名法上の注意点をひとつ記しておく必要がある。専門外の情報源では、ボルヒディによるものとされるVarronia luteaという組み合わせが流布しているが、これはこの植物について有効に発表されたいかなる名前にも該当しない。実際に存在するボルヒディによる再結合はGerascanthus luteusである。
語源については、属名は1515年から1544年まで生きたドイツの植物学者・薬剤師であるヴァレリウス・コルドゥスに敬意を表しており、彼の本草学に関する著作はルネサンス期のヨーロッパ中に広まった。種小名はラテン語のluteus(黄色い)に由来し、この種の野外での最も目立つ特徴である花冠の色を直接指している。
形態的特徴
密に分枝する低木または小高木で、高さは2から8メートル、樹冠は開いており、広がった樹形を持つ。幹の直径が20センチメートルを超えることはまれで、通常は曲がりくねっており、灰色の細かく裂けた樹皮に覆われている。より乾燥した季節には、この植物は葉の一部またはすべてを落とし、この落葉性の挙動は各個体群の降雨パターンによって異なる。
葉
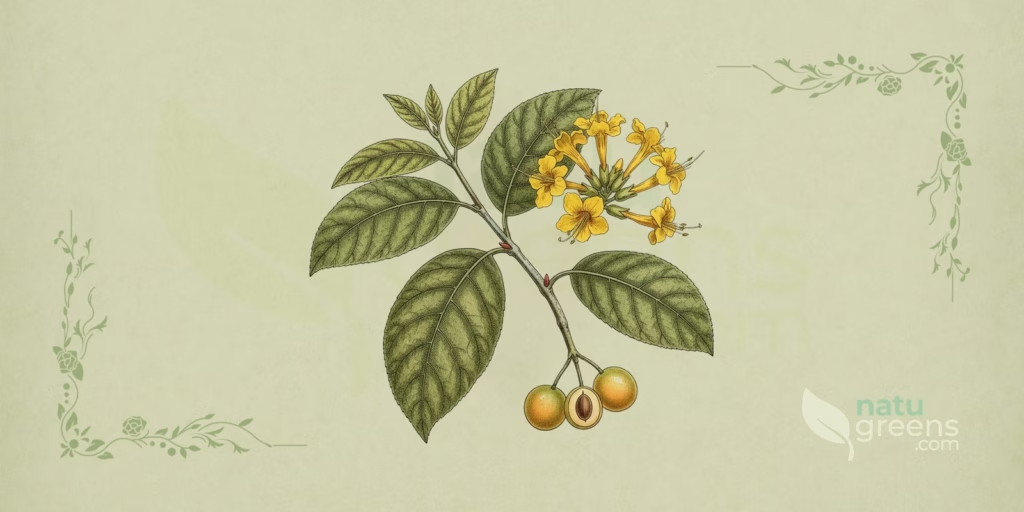
葉は互生し、単葉で托葉を持たず、長さ4から10センチメートルである。輪郭は卵形からほぼ円形までで、先端は丸みを帯びるかやや鈍く、縁は細かい鋸歯からクレナート状である。上面は触ると粗く、ほぼ無毛であるのに対し、下面は主脈と葉身に沿って毛が分布する。葉柄は短く、上から見ると葉のついた枝にコンパクトな印象を与える。
花
花は頂生の集散花序に生じ、この種の診断的価値のすべてを凝縮している。萼は円筒形で、長さ約10ミリメートル、幅5から7ミリメートル、縦に筋が入り宿存性である。花冠は合弁で鮮やかな黄色、ラッパ状で、喉部の直径は2から4センチメートル、五から八の広がった裂片を持つ。雄しべも五から八本で変化し、筒部に挿入されている。香りは甘く、近くで感知できる。
この種は異型花柱性であり、二つの花型が異なる個体に分かれて存在する。一方は長花柱で低い位置に葯を持ち、もう一方は短花柱で高い位置に葯を持つ。この相互的な構造は相補的な花型間の花粉移動を促進し、受粉実験では正当な交配においてより高い結実率が示されている。
果実と種子
果実は直径8から12ミリメートルの球形の核果で、成熟時には白く半透明になり、緑色で筋の入った宿存萼の上に基部で座っている。果肉は豊富に粘液質で表面に容易に付着し、この特性は直接的な生態学的帰結をもたらす。味わいは心地よい甘さから始まり、数秒のうちに苦味に変わる。それぞれの果実は硬い内果皮に保護された1から4個の種子を宿す。
茎と根
茎は長く細く直立しており、若い枝には毛があるが木質化するにつれて毛を失う。灰色の樹皮は古い個体では薄い板状に剥がれ落ちる。この植物は基部から容易に萌芽し、木質化した挿し穂から発根し、この特性はエクアドルとペルーの乾燥地帯で長らく生け垣の造成に利用されてきた。
分布と生育地
在来分布域は南米西部を覆い、コロンビア、エクアドル本土、ガラパゴス諸島のエクアドル島嶼部、そしてペルーを含む。ペルー領内ではこの種は太平洋沿岸帯と乾燥したアンデス山間渓谷に沿って分布し、トゥンベス、ピウラ、ランバイェケの乾燥林の構成種となっている。ガラパゴスでは在来種とみなされ、低地の乾燥帯を占め、海岸線付近に強く存在する。
自然分布域の外では、Cordia luteaはハワイとマルキーズ諸島に導入されている。ハワイ島では帰化種として記録されており、この諸島に適用された侵略性のリスク評価では本種は低いスコアが与えられ、これまでのところ原産分布域外での負の影響は文書化されていない。この結果は太平洋の他の島々における同属の他種の挙動とは対照的であり、継続的なモニタリングの必要性を強調している。
特徴的なバイオームは季節的乾燥熱帯バイオームである。個体群は海抜0メートルから約1500メートルまで分布し、アンデス山間渓谷のより高い標高では散発的な記録がある。この植物は降水量が少ない環境で繁茂し、長期の無降雨期間に耐え、降雨のパルスに素早く反応する条件的乾生植物として振る舞う。基質については、砂質土壌、かつての湿った河床の膨潤性粘土、塩分濃度の高い土地に生育し、目立つ花をつける観賞樹の中では珍しい耐性を示す。
栽培
繁殖は種子と挿し木によって行われ、エクアドルとペルーの再生植林用苗床の両方でこの二つの方法が用いられている。種子は硬い内果皮と果実を包む粘液に関連した休眠を示すため、果肉を丁寧に洗浄することがどのロットにおいても最初の工程となる。機械的傷処理とジベレリン酸処理は、発芽を均一化する手段として文献に記載されており、ペルーでの試験では、自然の散布者の消化管を通過することも種子の発芽反応を変化させることが示されている。
挿し木は大規模生産のための最も直接的な方法である。エクアドル沿岸部のサンタ・エレナ州で行われた試験では、発根促進剤を使用しなくても挿し木の活着率は満足のいくものであり、この結果は飼料用植栽や生け垣におけるこの種の利用を裏づけている。木質化した材料はよく反応し、萌芽密度は概して高い。
野外ではこの植物は完全な日照と水はけの良い土壌を必要とする。長期の干ばつ、塩分、貧栄養な土壌には耐えるが、霜には耐えられないため、栽培は氷点下の気温のリスクがない熱帯および亜熱帯地域に限られる。定着後は間隔をあけた灌水で十分であり、基質の過剰な湿気は苗床で最も頻繁に見られる誤りである。
特定の害虫の記録はわずかである。ハワイではこの種がロバータカイガラムシの代替宿主植物として同定されており、これが諸島の観賞植栽における植物検疫上の注意を喚起した。カイガラムシ類は一般に通気が不十分な場合に枝に現れる。果実の収穫は核果が白く半透明の色になり果肉が軟化した時点で行われ、その時点で種子はすでに成熟しており、抽出がより容易になる。
フェノロジー
年間サイクルは、ランバイェケ州チョンゴヤペのチャパリ私設生態保護区において2004年7月から2005年6月にかけて詳細に追跡された。栄養成長は一年を通じて起こり、2月から4月にかけて60パーセント近い値でピークを迎える。萌芽は1月から6月に集中し、1月と2月に約20パーセントの最大値を示す。開花は12月から6月にかけて優勢であり、これも平均して約20パーセントであるのに対し、結実は一年を通じて分布し、8月に14パーセントの最大値に達し、同じ植物上に青い果実と熟した果実が同時に存在する。気温はこれら三つの段階すべてと相関していた。
送粉は昼行性と夜行性の担い手を組み合わせている。大工バチは最も効果的な昼行性の訪花者であり、ガラパゴスではこの役割を諸島唯一の在来ハチであるXylocopa darwiniが担っており、現地の送粉ネットワークにおける極端な一般化戦略種である。夜には蛾が加わり、異なる植物間の花粉移動においてより効率的であることが示された。交配システムは混合型であり、利用可能な昆虫が少ない環境における自家受粉と他家受粉の組み合わせの結果として、比較的低い結実率をもたらす。
散布は主に動物散布による。ガラパゴスでは鳥類とヨウガントカゲが果実を食べ、粘着性の果肉はゾウガメや海鳥を含む大型動物の体に付着し、これが追加の体外付着散布経路を開いている。ペルー北部では、セチュラギツネLycalopex sechuraeが果実を摂食し、乾燥林におけるこの種の文書化された散布者のひとつに数えられる。
近縁種と混同されやすい種
属内では花冠の色と果実の外観がほとんどの疑問を解決する。三つの近縁種がコレクションや造園における最も一般的な誤りを集めている。
- Cordia sebestena L.: 花冠は黄色ではなく橙赤色で、葉はより大きく革質。これはオレンジ・ガイガーという園芸名を持つ種で、カリブ海に自然分布する。
- Cordia sinensis Lam.: 小さくクリーム色がかった黄色の花をつけ、果実はCordia luteaの半透明の白とは対照的に橙色から赤色の色調で成熟する。アフロ・アジア分布で、乾燥地帯において類似した生態的役割を果たす。
- Cordia subcordata Lam.: 橙色の花冠、より大型の心形の葉、そして海洋散布に適応した浮力を持つ内果皮を伴う木質化した果実を持つ。太平洋とインド洋の島々に分布し、そこでは導入されたCordia luteaの個体群と共存することがある。
ムラサキ科の外では、最も頻繁な混同はノウゼンカズラ科のTecoma stans(L.)Juss. ex Kunthに関するもので、遠目には似た黄色い筒状の花をつける。区別は葉によって即座に可能であり、Tecoma stansは奇数羽状複葉であるのに対しCordia luteaは単葉である。また果実によっても区別でき、細長い線形の蒴果はムラサキ科の白い核果とは全く異なる。
同定に関する注意も記しておくべきである。ムラサキ科にはEchium、Heliotropium、Symphytumなど、肝毒性のあるピロリジジンアルカロイドを蓄積する属が含まれる。ムラサキ科の花や果実のない不稔の栄養体材料は確実に同定することが難しく、花や果実を欠く採集物ではCordia luteaをこれらの近縁植物から確実に区別することはできない。
植物化学
最もよく特徴づけられた化学プロファイルは花のものである。ペルーのオトゥスコ産の材料を用いた予備的な植物化学的評価では、還流によって得られたメタノールおよびエタノール抽出物中の優勢なクラスとしてフェノール化合物、ロイコアントシアニジン、フラボノイドが同定された。高速液体クロマトグラフィーによる定量では、乾燥試料1グラムあたりルチン60.63ミリグラム、ケルセチン0.558ミリグラムが記録され、ルチンが大差をつけて優勢なフラボノイドとなっている。
同じ研究で引用されている以前の化学組成調査では、同程度のパーセンテージのルチンとケルセチンの画分が見出され、成分の中に脂肪酸が記録されており、リノール酸、パルミチン酸、ヘキサデカン酸グリセリルがそれぞれ約0.1パーセントの含量であった。花のエタノール抽出物のガスクロマトグラフィー質量分析による解析では、さらに長鎖脂肪酸のブチルエステルとジベレリン酸が記録された。
同じ研究では、分析された花にピロリジジンアルカロイドは検出されなかった。この発見は注目に値する。というのも、この代謝物群はムラサキ科に頻繁に見られるものであり、一つの試料における不在が他の個体群、他の器官、あるいは他のフェノロジー段階に自動的に及ぶわけではないためである。
果実においては、優勢な成分は粘液であり、果肉の粘稠で粘着性のある性状を担う多糖類複合体である。表面への付着能力を熟した果実に与え、以下で述べる歴史的利用を支えたのはこの画分である。樹皮と葉はフェノール化合物を濃縮しているが、花について利用可能なほど詳細な定量的特徴づけはこれらの部位については存在しない。
歴史と民族植物学
ラマルクは1791年に南米産の材料に基づいてこの種を正式に記載したが、これはルイスとパボンによるペルーの標本コレクションがヨーロッパの標本館に供給されていた時代のことである。この二人のスペイン人植物学者によって発表されたCordia rotundifoliaという名前が、最終的にラマルクの学名の異名に帰着したのは偶然ではない。
この植物の最も特徴的な利用の記録は、医薬的なものとは無縁である。果実の粘液はエクアドルの共同体によって紙糊や整髪料として利用されており、この用途は近年サレジオ工科大学において化粧品原料として再び研究されている。木材は沿岸の集落でボート、カヌー、簡素な構造物の建造に用いられた。エクアドル沿岸では、この種が到達する葉の密度を利用して飼料システムに組み込まれ、分布域全体で農民はこれを生け垣として植え、薪として伐採した。熟した果実は野生果実として生で食されたが、その後に来る苦味が食欲を制限していた。
1990年代から2000年代にかけてペルーで行われた民族植物学調査、その中でもリマ州カンタ郡で実施された研究は、アンデスおよび沿岸の共同体の家庭内レパートリーに存在する植物の中にCordia luteaを記録している。これらの目録はこの種にまつわる文化的記憶を記録するものであり、いかなる推奨も構成しない。ガラパゴスでは、この植物は諸島最初期の集落の有用植物の歴史的な一覧に登場しており、主に果実と木材のためである。
保全状況
Cordia luteaはIUCNレッドリストで評価され、Global Tree Specialist Groupの枠組みで行われた2019年の評価において軽度懸念(低危険種)に分類された。その根拠は、広い分布、多数の個体群、そして分布域全体にわたって特定された著しい脅威の不在に基づいている。CITESのいずれの附属書にも記載されていない。
個体レベルの評価の安心感は、この植物が生育する環境の脆弱性を覆い隠すべきではない。ペルー北西部の乾燥林とエクアドルの乾燥沿岸低木林は南米で最も断片化が進んだ生態系のひとつであり、農業拡大、薪材の採取、ヤギの放牧によって圧迫を受けている。この種は繁殖のしやすさと厳しい土壌への耐性ゆえに、両国の乾燥地帯における劣化した土地の回復プログラムで頻繁に利用されている。
さらに間接的な保全上の側面も存在する。チャパリでは、Cordia luteaはペルー北部固有種でありこの大陸で最も絶滅の危機に瀕している鳥類のひとつである白翼シャチドリ、Penelope albipennisに食物を供給する種のグループに含まれる。この食性のフェノロジー研究は、まさにこの鳥にとっての資源の季節的な利用可能性を理解するために設計されたものであり、これによりこの植物には自らの危険区分を超えた機能的な役割が与えられている。
豆知識
- この種は異型花柱性であり、長花柱で低い位置に葯を持つ個体と、逆の配置を持つ個体が存在し、結実が旺盛になるのは花粉が二つの相補的な型の間を移動するときだけである。
- 異なる植物間の花粉移動において、夜行性の蛾がハチを上回るというのは、昼間に香り立つ黄色く目立つ花にとっては直観に反する結果である。
- 果肉は非常に粘着性が高く、紙糊や整髪料として用いられてきたが、今なお化粧品原料として研究され続けている。
- ガラパゴスでは、葉が蛾Bucculatrix cordiaellaによって食害されており、その種小名は宿主植物を直接示している。
- 英語圏の観賞植物取引ではこの種はイエロー・ガイガーと呼ばれ、Cordia sebestenaに与えられた名前であるオレンジ・ガイガーと対をなしている。
ご注意:本コンテンツは情報提供を目的としており、医療専門家の助言に代わるものではありません。薬用植物を使用する前に、特に妊娠中、授乳中、または薬を服用中の場合は、医師または専門家にご相談ください。
参考文献と科学的研究
引用文献10件をすべて見る
- Charles Darwin Foundation. Galapagos Species Checklist: Cordia lutea Lam. Fundación Charles Darwin, Puerto Ayora, エクアドル.
- 2007 De la Cruz, H.; Vilcapoma, G.; Zevallos, P. A. Ethnobotanical study of medicinal plants used by the Andean people of Canta, Lima, Peru. Journal of Ethnopharmacology, 111(2), 2007.
- International Plant Names Index. Cordia lutea Lam., Tabl. Encycl. 1: 421 (1791), ID 274993-2. Royal Botanic Gardens Kew, Harvard University Herbaria e Australian National Botanic Gardens.
- 2019 IUCN. The IUCN Red List of Threatened Species: Cordia lutea. 2019年評価, Global Tree Specialist Group.
- Lamarck, J.-B. Tableau encyclopédique et méthodique des trois règnes de la nature. Botanique, vol. 1, p. 421. Paris, 1791.
- 2008 Martos, J. R.; Scarpati, M.; Rojas, C.; Delgado, G. E. Fenología de algunas especies que son alimento para la pava aliblanca Penelope albipennis. Revista Peruana de Biología, 15(2), 2008.
- 1999 McMullen, C. K. Flowering Plants of the Galápagos. Cornell University Press, Ithaca, 1999.
- 2011 McMullen, C. K. Pollination of the heterostylous Galápagos native Cordia lutea (Boraginaceae). Plant Systematics and Evolution, 2011.
- Plants of the World Online. Cordia lutea Lam. Royal Botanic Gardens Kew, ロンドン.
- 2019 Venegas Casanova, E. A.; Gómez Alva, A. M.; Chávez León, A. N.; Valdiviezo Campos, J. E.; Ormeño Llanos, M.; Vásquez Corales, E. Evaluación fitoquímica preliminar del extracto metanólico y etanólico de las flores de Cordia lutea Lam. (Boraginaceae) y su capacidad antioxidante. Arnaldoa, 26(1): 359-368, 2019.