Få urteagtige planter bærer en så lang handelsbiografi som Nardostachys jatamansi. Det er en flerårig, rodstoksdannende urt af familien Caprifoliaceae, begrænset til de alpine enge i Himalaya og de tilstødende bjergkæder i det sydvestlige Kina, hvor den danner lave tuer mellem klipper og græsklædte skråninger over tre tusind meter. Organet, der gjorde den berømt, sidder under jorden: en kort, cylindrisk rodstok, beklædt med et sammenfiltret net af rødbrune fibre, som er rester af gamle bladbaser, og som afgiver en træagtig, jordagtig duft, der kan mærkes på afstand, når jorden vendes.
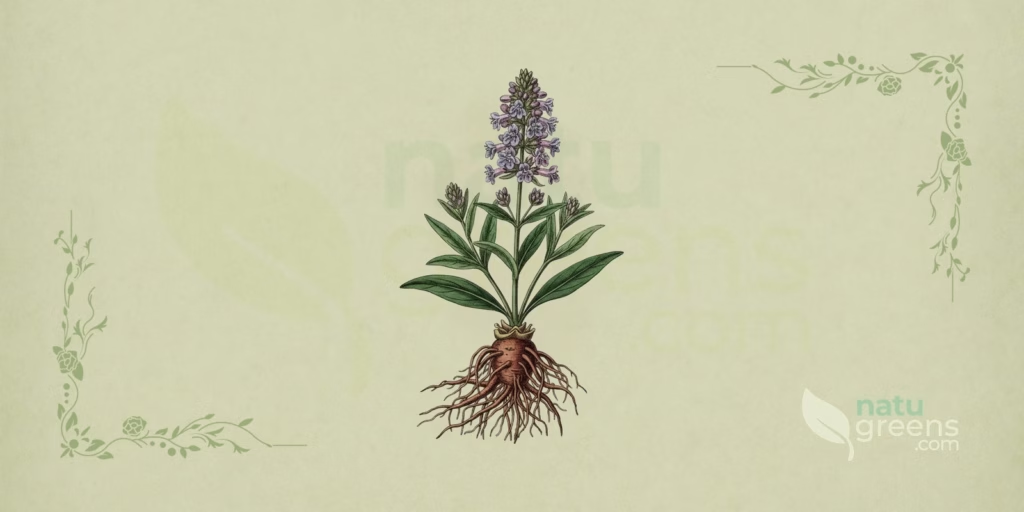
Denne rodstok er de gamles nardus, spikenard fra de engelske bibeloversættelser, råvare til en af de dyreste salver i middelhavsverdenen og en handelsvare, der krydsede det indiske subkontinent mod Egypten og Rom længe før nogen europæisk botaniker så den levende plante. Afstanden mellem indsamlingsstedet og forbrugsmarkederne skabte århundreders forvirring om artens identitet, en forvirring der først blev løst i første halvdel af 1800-tallet, og hvis spor stadig ses i synonymer og handelsnavne, der cirkulerer den dag i dag.
Det følgende beskriver planten og dens historie, ikke dens brug. Taksonomien følger Plants of the World Online fra Royal Botanic Gardens, Kew, med navnet bekræftet i International Plant Names Index; morfologien stammer fra Flora of China og den himalayiske floristiske litteratur; den etnografiske registrering optræder som historie, i datid. Bevaringssituationen er det punkt, denne profil lægger mest vægt på, fordi arten er kritisk truet, og presset på den kommer netop fra indsamlingen af rodstokken.
Taksonomi
Det accepterede navn er Nardostachys jatamansi (D.Don) DC., en kombination udgivet af Augustin Pyramus de Candolle i 1830, i bind 4 af Prodromus Systematis Naturalis Regni Vegetabilis, side 624. Basionymet er Patrinia jatamansi D.Don, fra 1825. Det var i den samme passage af Prodromus, at De Candolle udskilte slægten Nardostachys fra valerianaceerne, idet han erkendte, at den himalayiske plante ikke passede godt ind i nogen af de dengang tilgængelige slægter.
- Rige: Plantae
- Række: Streptophyta
- Klasse: Equisetopsida
- Underklasse: Magnoliidae
- Orden: Dipsacales
- Familie: Caprifoliaceae
- Underfamilie: Valerianoideae
- Slægt: Nardostachys DC.
- Art: Nardostachys jatamansi (D.Don) DC., 1830
Familietilhørsforholdet fortjener en bemærkning. I næsten to århundreder blev arten behandlet under Valerianaceae, og det er under denne familie, den optræder i IPNI, som registrerer familien fra protologen. APG IV-klassifikationen opløste Valerianaceae inden for Caprifoliaceae i bred forstand, så taksonet i dag figurerer i Caprifoliaceae, underfamilie Valerianoideae. De to læsninger beskriver samme organisme, og nyere litteratur veksler stadig mellem dem afhængigt af dato og tidsskriftets tradition.
Synonymer
POWO anerkender ni synonymer, et højt tal for en art med så begrænset udbredelse, hvilket forklares af kombinationen af fragmentarisk materiale, der nåede Europa, og geografisk isolerede populationer beskrevet uafhængigt.
- Fedia grandiflora Wall.
- Fedia jatamansi Wall. ex DC.
- Nardostachys chinensis Batalin (1894)
- Nardostachys gracilis Kitam. (1954)
- Nardostachys grandiflora DC. (1830)
- Nardostachys jatamansi C.B.Clarke (1881), senere ulovligt homonym
- Patrinia jatamansi D.Don (1825)
- Valeriana jatamansi D.Don (1821), ugyldigt navn
- Valeriana jatamansi (D.Don) Wall., ugyldigt navn
To af disse navne cirkulerer stadig, som om de var gyldige arter. Nardostachys grandiflora DC. blev beskrevet af De Candolle på samme side som N. jatamansi og overlevede i den indiske og nepalesiske farmakognostiske litteratur gennem det meste af 1900-tallet, også i officielle handelsdokumenter. Nardostachys chinensis Batalin forbliver i brug i dele af den kinesiske litteratur, der behandler den som et separat takson med en mere nordlig udbredelse, og nogle udbredelsesmodelleringsstudier arbejder stadig med to arter i slægten. Under POWO’s behandling er slægten monospecifik, og det er denne læsning, der følges her.
Der findes desuden et homonym, som ikke er et synonym, og som forårsager mere forvirring end alle de andre tilsammen: Valeriana jatamansi Jones, udgivet i 1790, er en anden art, også himalayisk, også handlet, og problemets oprindelse beskrives nedenfor i afsnittet om beslægtede arter.
Etymologi
Slægtsnavnet kombinerer det græske nardos, en gammel betegnelse for en aromatisk østlig plante, der kom ind i græsk via sprog fra Mellemøsten, med stachys, aks, som henvisning til den tætte, kompakte blomsterstand, der afslutter blomsterstænglen. Samme billede lever videre i det engelske spikenard. Artsepitetet jatamansi kommer fra sanskrit og beskriver præcist rodstokken: jata betegner den sammenfiltrede hårlok, asketernes filtrede hår, der hverken klippes eller redes, og ordet beskriver det filt af mørke fibre, der omslutter det underjordiske organ.
Morfologisk beskrivelse
Nardostachys jatamansi er en flerårig urt af beskeden størrelse, med en robust rodstok og en opret eller skrå caudex, hvorfra der udspringer en rosette af basale blade og én eller få blomsterstængler, der når mellem 5 og 50 centimeter i højden afhængigt af eksponering og højde over havet. Planten er aromatisk i alle dele, men koncentrationen af duften i rodstokken er tydelig, og det vegetative hele er glat eller kun spredt fint håret. Den kompakte vækstform og den mod jorden trykkede rosette er typiske reaktioner på livet i det alpine bælte, hvor vinden er konstant, og vækstsæsonen varer kun få uger.
Blade
- Farve: grøn til mørkegrøn, uden markant forskel mellem siderne
- Placering: basale blade i rosette, stængelblade modsatte i et til to par
- Basale blade: 3 til 25 centimeter lange og 0,5 til 2,5 centimeter brede, smalt spatelformede til linjeformet-lancetformede, med en bladstilk af næsten samme længde som bladpladen
- Stængelblade: siddende eller næsten siddende, aflange til ægformede, tydeligt mindre end de basale
- Nervatur: tre hovednerver, synlige mod lyset
- Basis, rand og spids: tilspidset basis, hel rand, stump spids
Blomster
- Farve: rosa-purpur, lyserød eller magenta
- Krone: klokkeformet, 4,5 til 9 millimeter, med fem bredt ægformede til aflange lapper på 2 til 3,8 millimeter, ydersiden mere eller mindre filtet håret og lejlighedsvis glat
- Bæger: fem halvcirkelformede til trekantet-lancetformede lapper, som regel kantet med hår, der vokser efter blomstringen
- Støvdragere: fire, indsat i kronrøret
- Frugtknude: understændig, med ét frugtbart æg
- Blomsterstand: tætte cymer samlet i et endestillet hoved på 1,5 til 2 centimeter i diameter, med fire til seks lancetformede omsvøbsblade og hver blomst underbygget af sit eget dækblad
Frugter og frø
- Type: nød, med ét frø pr. frugt
- Mål: 3 til 4 millimeter i længden
- Form: omvendt ægformet, kronet af de blivende bægerlapper
- Behåring: hvid, stiv behåring, delvis eller ensartet, undertiden reduceret til næsten intet
- Frugtbæger: deltaformede til ægformede lapper på 1,5 til 2,5 millimeter, med iøjnefaldende netformet nervatur
Det er værd at korrigere en almindelig misforståelse i populærvidenskabelige tekster her. Den blivende bæger på Nardostachys jatamansi danner ikke den fjerformede pappus, der er karakteristisk for Valeriana og så mange Asteraceae. Lapperne forbliver brede, hindeagtige og netformede og fungerer mere som et lille, stift sejl end som en faldskærm af børster.
Rodstok og stængel
Rodstokken er artens diagnostiske organ og den del, der bar hele den historiske handel med nardus. Den måler 2,5 til 7,5 centimeter i længden, er aflang og nogenlunde cylindrisk, mørkegrå til næsten sort udvendigt og lysere i snittet, og er helt beklædt med tætte tuer af rødbrune fibre, som er rådnede bladstilke og bladskeder fra tidligere sæsoner, hvoraf kun ledningsstrengene er tilbage. Denne fibrøse beklædning er det kendetegn, der adskiller det autentiske materiale fra erstatninger i handlen med tørrede rødder. Caudexen, hvorfra blomsterstænglerne udspringer, er kort og opret eller let skrå, og den luftbårne stængel er enkel, uden forgrening under hovedet.
Udbredelse og levested
Artens oprindelige udbredelsesområde følger Himalaya-buen og strækker sig østpå ind i det indre af Kina. POWO registrerer forekomst i den vestlige og østlige Himalaya, Nepal, Bangladesh, Assam, Myanmar, Tibet, Qinghai og de centralnordlige og centralsydlige provinser i Kina. I landetermer svarer det til Bhutan, Kina, Indien, Myanmar og Nepal, hvor de indiske populationer er koncentreret i Arunachal Pradesh, Himachal Pradesh, Sikkim og Uttarakhand, og de nepalesiske er fordelt over mere end tyve distrikter, fra det yderste vest til Solukhumbu.
Levestedet er alpint og subalpint, mellem cirka 3.000 og 5.000 meters højde. Planten optager åbne enge, uforstyrrede græsklædte skråninger, klippefremspring og lysninger i enebær- og rhododendronformationer, med en markant præference for stejle, fugtige arealer og grovsandet, humusrig, veldrænet jord. Klimaregimet er sommermonsuner overlejret af alpin vinter, med nedbør koncentreret i få måneder, langvarig snedække og stor daglig temperaturamplitude i vækstsæsonen.
Der er ingen registrering af artens naturalisering uden for det oprindelige areal og heller ikke af invasiv adfærd nogen steder i verden. Den kombinerede krav om højde, fotoperiode og langvarig kulde gør arten praktisk talt ude af stand til at undslippe dyrkning, og de agronomiske forsøg udført under det naturlige areal bekræfter denne begrænsning ganske drastisk.
Dyrkning
Formeringen sker ved frø eller ved deling af rodstokken, og ingen af metoderne er enkle. Frøene har en lidet tolerant opbevaringsevne: opbevaret ved stuetemperatur mister de spireevnen på under et år, og opbevaring ved lav temperatur mere end fordobler denne periode. Under kontrollerede forhold reagerer spiringen bedre på en temperatur omkring 15 grader Celsius med kontinuerlig belysning, og forsøg har registreret gevinster ved hormonbehandling med gibberellinsyre. En sådybde på omkring en halv centimeter, i et substrat af lige dele jord, sand og omsat organisk materiale, gav de bedste resultater i planteskolen.
Sådningsvinduet varierer med planteskolens højde, hvilket siger meget om plantens økologiske stivhed. Ved middelhøjder viste oktober og februar sig egnede; i det naturlige levested, over tre tusind meter, er sådning i maj den måned, der følger sneafsmeltningen. Rodstoksdeling, udført i hvileperioden, er den mest pålidelige metode, når formeringsmateriale er tilgængeligt, forudsat at hver deling bevarer levedygtige knopper og sit eget rodsystem.
Dyrkningsforsøg, der sammenlignede tre højdebælter, gav et utvetydigt resultat: ved 2.200 meter og ved 3.600 meter viste dyrkningen sig kommercielt levedygtig i de fleste behandlinger, mens der ved 1.800 meter var total dødelighed i alle behandlinger. Uden for det alpine bælte etablerer arten sig altså simpelthen ikke, hvilket forklarer, hvorfor markedsforsyningen fortsat afhang af vild indsamling selv efter årtiers domesticeringsforsøg.
Litteraturen om skadedyr og sygdomme er sparsom, sandsynligvis fordi den kommercielle dyrkning aldrig nåede op i skala. De rapporterede problemer er de forventelige for en geofyt fra fugtig jord: rodstoksforrådnelse under langvarig vandmætning eller utilstrækkelig dræning. Det hyppigst nævnte biotiske pres i det naturlige levested er ikke et landbrugsskadedyr, men græsning, da nedtrampning og fortæring fra flokke af yak, får og geder på alpine enge hører til de formelt anerkendte trusler mod arten. Hvad angår høsten, er det kritiske punkt, at produktet er rodstokken, og udvindingen indebærer, at hele planten rykkes op, med individets død og uden genvækst.
Fænologi
Den reproduktive cyklus er komprimeret i den korte alpine sommer. Blomstringen finder sted mellem slutningen af juni og august, og frugtsætningen strækker sig fra august til begyndelsen af september, så planten kun har få uger mellem sneafsmeltningen og frostens tilbagevenden til at fuldføre hele processen. Uden for dette vindue forsvinder den luftbårne del, og rodstokken forbliver i hvile under sneen.
Bestøvningen er entomofil, udledt af blomstermorfologien: klokkeformet krone med kort rør, rosa til magenta farve, fire støvdragere og en tilgængelig belønning for besøgende med kort tunge, en kombination der er forenelig med det generalistiske mønster, der er almindeligt i Himalayas alpine enge. De effektive bestøveres identitet er dog dårligt dokumenteret, og der findes ikke for arten en blomsterbiologisk undersøgelse sammenlignelig med dem, der findes for europæiske slægtninge af Valeriana. I blomsterbesøgssamfundene på alpine enge i denne højdezone dominerer typisk små tovinger og årevinger, hvilket peger på et lidet specialiseret system, men den direkte tilskrivning af bestøvere til arten forbliver åben.
Spredningen af nødderne er anemokorisk over kort afstand. De blivende, netformede bægerlapper øger frugtens overfladeareal og fremmer transport med vinden, om end uden effektiviteten af en ægte fjerformet pappus, og frugtvæggens hvide behåring kan bidrage til lejlighedsvis vedhæftning til planteæderes pels. Det praktiske resultat er en overvejende lokal spredning, med dannelse af tætte populationskerner, et mønster der hjælper med at forklare, hvorfor koncentreret indsamling på én skråning kan udslette hele underpopulationer.
Beslægtede arter og forvekslinger
Tilfældet med Nardostachys jatamansi er et af de mest lærerige i økonomisk botanik, fordi forvirringen opstod af en dokumenteret fejl og overlevede to hundrede års rettelser.
I 1790 offentliggjorde William Jones i Asiatick Researches et studie dedikeret til at identificere de gamles nardus med en levende plante fra Himalaya. Jones arbejdede ud fra en beskrivelse og tegning sendt af tredjeparter, og det materiale, han modtog fra Bhutan under navnet jatamansi, var ikke den rette art, men den plante, der senere blev kendt som Valeriana wallichii. Navnet Valeriana jatamansi Jones forblev derfor anvendt på det forkerte takson. Forvirringen forværredes, da Roxburgh i 1799 udgav en figur, der kombinerede den ægte nardus’ rodstok med stængel og blade fra den anden art. Da problemet blev opdaget, sendte Nathaniel Wallich autentisk materiale indsamlet i Kumaon og Gosainthan, og David Don beskrev det korrekt, først som Valeriana jatamansi i 1821 og derefter, gyldigt udgivet, som Patrinia jatamansi i 1825. De Candolle overførte dette navn til den nye slægt i 1830.
De praktiske konsekvenser vedvarer i handlen med tørrede rødder, hvor tre planter cirkulerer under delvist overlappende folkelige navne:
- Selinum vaginatum (Edgew.) C.B.Clarke: kendt som bhootkeshi, tilhører en anden familie, Apiaceae, men producerer rødder med et ydre udseende og en duft, der ligner meget, og er den hyppigste erstatning på de indiske markeder. Sikker adskillelse kræver anatomisk undersøgelse eller kemisk profil, da den makroskopiske lighed er betydelig.
- Valeriana jatamansi Jones: kaldet tagar eller mushkbala, er himalayisk ligesom Nardostachys og deler flere folkelige navne med den, herunder selve jatamansi. Det mest praktiske adskillelseskendetegn ligger i rodstokken: hos Nardostachys er den omgivet af filten af snoede fibre fra bladbaser, mens bladstilkene hos Valeriana mangler denne hårede beklædning. Den levende plante adskiller sig også med brede, hjerteformede blade og en åben, panikelformet blomsterstand, ikke et kompakt hoved.
- Valeriana officinalis L.: europæisk art af samme underfamilie, af meget større vækst, med fjersnitdelte blade og brede corymbeforme cymer, uden nogen mulighed for forveksling med hele planten, selvom det formalede tørrede materiale allerede er blevet blandet i handlen.
Analytiske metoder er netop blevet udviklet for at adskille de tre, med kvantificering af markører ved højtydende tyndtlagskromatografi, og de opnåede profiler viser, at de kemiske forskelle mellem dem er store nok til diagnostisk brug.
Fytokemi
Rodstokken og roden koncentrerer en æterisk olie rig på sesquiterpener, og det er denne flygtige fraktion, der er ansvarlig for artens karakteristiske duft. Det udvundne indhold varierer betydeligt afhængigt af geografisk oprindelse, højde og indsamlingstidspunkt, i en sådan grad at oliens sammensætning er blevet brugt til at skelne oprindelser i kemiske profilstudier.
Blandt de sesquiterpener, der er beskrevet i olien, findes jatamansone, også kaldet valeranon, nardostachon, calaren, guaia-6,9-dien, alfa-gurjunen, beta-gurjunen, valencen, alfa-maalien, esprojatamol, seichelen, seichelan, nardostachnol og aristolon. Sesquiterpenalkoholerne beta-eudesmol, elemol og patchoulol indgår i samme fraktion. Det kvantitative profil er variabelt, og forskellige partier analyseret ved gaskromatografi koblet med massespektrometri viser forskellige dominerende komponenter.
Ud over de flygtige stoffer akkumulerer arten terpenkumariner, herunder jatamansin og orosenol, foruden jatamansinol, steroidet beta-sitosterol og furanokumarinen angelicin. Analyser af rod- og rodstoksekstrakter registrerer desuden tanniner, flavonoider, fenolske forbindelser generelt, saponiner, ud over de forventede protein- og kulhydratfraktioner fra et lagerorgan. Valerensyre, den klassiske markør for slægten Valeriana, forekommer også her, og sammenligningen af dens indhold mellem Nardostachys jatamansi, Valeriana jatamansi og Selinum vaginatum var en af de foreslåede parametre til at skelne de tre handelsmaterialer.
Fordelingen af forbindelserne i plantens krop er stærkt asymmetrisk. Transkriptomiske arbejder, der kortlagde genekspressionen i sesquiterpenvejen, fandt koncentreret aktivitet i de underjordiske væv, hvilket er i overensstemmelse med den praktiske observation, at den luftbårne del har nul handelsværdi, og at kun rodstokken har været genstand for udvinding gennem historien.
Historie og etnobotanik
Nardus var et af de dyreste luksusprodukter i middelhavsoldtiden, og den skriftlige registrering er rigelig. Dioskorides behandlede planten i bog I af De Materia Medica, i det første århundrede, og registrerede materialets oprindelse og den måde, det blev indsamlet på i det østlige bjergland. Plinius den Ældre og andre latinske forfattere nævnte stoffet blandt de østlige varer af højeste værdi, og salven cirkulerede under navnene unguentum nardinum og unguentum nardi spicatae. Prisniveauet fremgår tydeligt af en passage hos Horats, der tilbød Vergil en hel amfora vin, omkring seksogtredive liter, i bytte for en lille onykskasse fuld af nardus.
I de religiøse tekster optræder produktet med samme værdiladning. Nardus nævnes i Højsangen og genoptræder i evangelierne, i scenen hvor et alabastkar med salven knuses, en episode hvor den nævnte prisvurdering svarer til lønnen for næsten et års arbejde. Ruterne, der bragte materialet fra Himalaya til Middelhavet, gik gennem den nordvestlige del af det indiske subkontinent og gennem Det Indiske Oceans søhandel, og afstanden mellem oprindelse og forbrug er en stor del af forklaringen på prisen.
I Sydasien optræder rodstokken i Ayurvedas klassiske kompilationer under det sanskritiske navn jatamansi, og også den tibetanske og persiske litteratur registrerede den. Uden for den medicinske kontekst, som denne profil ikke omhandler, blev materialet brændt som røgelse i ritualer og indgik i parfumekompositioner, anvendelser der bestod gennem århundreder, og som står for en betydelig del af den historiske efterspørgsel. I Nepals og det nordvestlige Indiens producerende regioner var indsamling i højden en sæsonbestemt aktivitet for bjergsamfund, der besteg de alpine enge i slutningen af sommeren, og denne organisering af arbejdet er dokumenteret i etnografiske undersøgelser og handelsregistre fra den britiske kolonitid.
Bevaring af Nardostachys
Nardostachys jatamansi er vurderet som Kritisk Truet på IUCN’s rødliste, under kriterium A2cd, i en vurdering udgivet i 2021. Kategorien bygger på mistanken om en populationsnedgang på mindst firs procent gennem de sidste ti år, tilskrevet direkte udnyttelse og forringelse af levestedskvaliteten. Få urteagtige planter med så udstrakt et areal bærer en så høj risikokategori, og årsagen ligger i indsamlingens natur.
Udvindingen er per definition destruktiv. Da produktet er rodstokken, rykkes hele planten op, individet dør, og der er ingen genvækst fra det, der blev tilbage i jorden. Læg dertil den langsomme vækst i alpint miljø, spredningen over kort afstand og frøenes korte levedygtighed, og resultatet er en meget lav genopretningsevne efter hver indsamlingsbegivenhed. Hele underpopulationer er allerede forsvundet fra historisk produktive områder, og arten hører til de mest intensivt handlede planter i den indiske Himalaya. Til dette billede kommer overgræsning, tab af levesteder og skovrydning i de subalpine kontaktzoner.
Arten har stået på CITES’ Bilag II siden 1997, hvilket underlægger den internationale handel eksportlicensering og krav om dokumentation for, at udvindingen ikke skader den vilde populations overlevelse. Nepal, det vigtigste eksportland, opererer med fastsættelse af nationale kvoter drøftet i konventionens stående udvalg, og der er implementeret sporbarhedsprojekter for forsyningskæden med støtte fra organisationer, der overvåger handel med vilde arter. Indien og Nepal opretholder bevaringsprogrammer i beskyttede områder og dyrkningsforsøg i højden, hvis effektivitet støder på de agronomiske begrænsninger beskrevet ovenfor.
Kuriositeter
- Det engelske spikenard er en direkte oversættelse af det græske binomen: nardos plus stachys, nardus i aks, nøjagtig samme konstruktion, der giver den kompakte blomsterstand øverst på stænglen sit navn.
- Artsepitetet jatamansi beskriver hverken blomst eller blad, men det filt af fibre, der beklæder rodstokken. På sanskrit betegner jata den sammenfiltrede hårlok hos asketer, der hverken reder eller klipper deres hår, og billedet er usædvanligt præcist for et botanisk epitet.
- Identitetsforvirringen varede i over tredive år og involverede fire af de største navne i britisk-Indiens naturhistorie. William Jones beskrev den forkerte plante i 1790, Roxburgh udgav i 1799 en figur, der blandede to arter, Wallich sendte autentisk materiale fra Himalaya, og David Don fik det endelig ret i 1825.
- En lille onykskasse fuld af nardussalve var ifølge Horats en hel amfora vin værd, en mængde på næsten seksogtredive liter. Produktet kom fra skråninger over tre tusind meters højde, på den anden side af den dengang kendte verden.
- Slægten Nardostachys er i dag monospecifik ifølge POWO, men en del af den kinesiske litteratur anerkender fortsat N. chinensis som et separat takson, og udbredelsesmodelleringsstudier udgivet i det seneste årti opererer stadig med to arter. Spørgsmålet er ikke afsluttet.
Bemærk: dette indhold er informativt og erstatter ikke professionel sundhedsrådgivning. Kontakt en læge eller fytoterapeut, før du bruger lægeplanter, især under graviditet, amning eller ved brug af medicin.
Referencer og videnskabelige studier
Se Alle 10 Citerede Kilder
- Candolle, A. P. de. Prodromus Systematis Naturalis Regni Vegetabilis, bind 4, side 624. Paris, 1830.
- 2026 CITES. Appendices I, II and III. Convention on International Trade in Endangered Species of Wild Fauna and Flora. Tilgået 2026.
- CITES. National Quota Fixation for Jatamansi (Nardostachys jatamansi) in Nepal. Dokument fra det stående udvalg, SC71 Doc. 12, Bilag 5.
- Dioskorides, P. De Materia Medica, bog I, kapitel 7. Det første århundrede.
- Don, D. Prodromus Florae Nepalensis. London, 1825.
- 2011 Flora of China, bind 19, behandling af Valerianaceae. Science Press og Missouri Botanical Garden Press, Beijing og Saint Louis, 2011.
- 2026 IPNI. The International Plant Names Index. Royal Botanic Gardens Kew, Harvard University Herbaria og Australian National Herbarium. Tilgængelig på www.ipni.org. Tilgået 2026.
- 2021 IUCN. Nardostachys jatamansi. The IUCN Red List of Threatened Species 2021, e.T50126627A88304158. Tilgængelig på www.iucnredlist.org. Tilgået 2026.
- Jones, W. The Spikenard of the Ancients. Asiatick Researches, bind 2. Calcutta, 1790.
- 2026 POWO. Plants of the World Online, Royal Botanic Gardens, Kew. Fiche for Nardostachys jatamansi (D.Don) DC. Tilgængelig på powo.science.kew.org. Tilgået 2026.