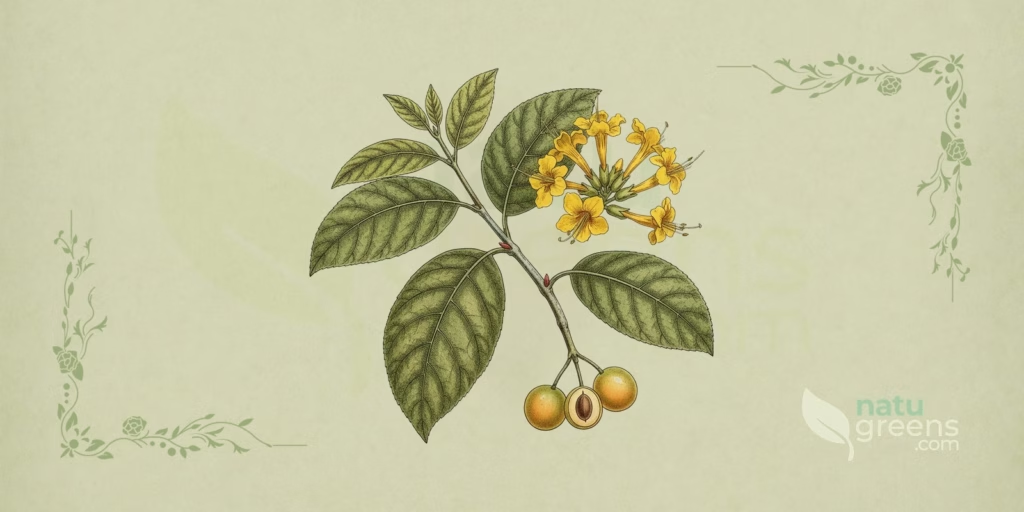
Le Cordia lutea est un arbuste très ramifié ou un petit arbre de la famille des Boraginacées, reconnaissable de loin aux fleurs jaunes en trompette qui couvrent la couronne pendant une bonne partie de l’année. L’espèce occupe les basses terres sèches de l’ouest de l’Amérique du Sud, de la Colombie au Pérou, et atteint également l’archipel des Galápagos, où elle compte parmi les plantes indigènes les plus communes de la zone aride littorale. Dans les forêts sèches du nord-ouest péruvien, elle constitue un élément structurant du paysage et partage la strate arbustive avec les algarrobos et les sapotiers.
Le nom vernaculaire change selon la région. Muyuyo est la forme courante en Équateur et aux Galápagos, tandis que overo et flor de overo circulent dans le nord du Pérou. L’horticulture de langue anglaise a retenu l’étiquette yellow geiger, par contraste délibéré avec l’orange geiger appliqué à Cordia sebestena. Aucun nom vernaculaire consacré n’existe en français, ce qui fait du binôme la référence la plus sûre pour qui cherche l’espèce en pépinière ou en herbier.
Ce qui rend le Cordia lutea remarquable dépasse largement l’attrait ornemental. Il s’agit de l’une des rares Boraginacées néotropicales dont le système reproducteur hétérostyle est bien documenté, elle nourrit un réseau de pollinisateurs diurnes et nocturnes sur des îles océaniques pauvres en insectes, et elle produit des fruits dont la pulpe est si mucilagineuse que les communautés andines et côtières l’ont employée comme colle. Ce profil rassemble la taxonomie formelle, la morphologie diagnostique, l’écologie des zones arides, la phytochimie descriptive et le registre historique des usages, sans la moindre indication d’emploi actuel.
Taxonomie
Le Cordia lutea appartient aux Boraginacées dans la circonscription large adoptée par l’APG IV, au sein de la sous-famille des Cordioideae. Une partie de la littérature traite les Cordiaceae comme une famille indépendante, arrangement qui ne modifie en rien la position relative de l’espèce. Le genre Cordia rassemble plusieurs centaines d’espèces pantropicales, sa plus grande diversité se trouvant dans le Néotropique.
- Règne : Plantae
- Division : Tracheophyta (angiospermes)
- Classe : Magnoliopsida
- Ordre : Boraginales
- Famille : Boraginaceae Juss.
- Sous-famille : Cordioideae
- Genre : Cordia L.
- Espèce : Cordia lutea Lam., 1791
Le protologue a paru dans le premier volume du Tableau encyclopédique et méthodique des trois règnes de la nature, Botanique, de Jean-Baptiste de Lamarck, à la page 421, en 1791. La notice figure dans l’International Plant Names Index sous l’identifiant 274993-2, et Plants of the World Online maintient le binôme comme nom accepté, sans proposition de recombinaison en vigueur.
La synonymie est longue, reflet des remaniements génériques successifs qu’ont connus les Boraginales au cours des XIXe et XXe siècles. Plants of the World Online reconnaît une douzaine de noms subordonnés, parmi lesquels :
- Calyptracordia rotundifolia (Ruiz & Pav.) Friesen
- Coilanthera rotundifolia (Ruiz & Pav.) Raf.
- Cordia flava (Andersson) Gürke
- Cordia marchionica Drake
- Cordia rotundifolia Ruiz & Pav.
- Ectemis lutea (Lam.) Raf.
- Firensia lutea (Lam.) Raf.
- Gerascanthus luteus (Lam.) Borhidi
- Gerascanthus rotundifolius (Ruiz & Pav.) Friesen
- Lithocardium flavum (Andersson) Kuntze
- Lithocardium rotundifolium (Ruiz & Pav.) Kuntze
- Varronia flava Andersson
- Varronia rotundifolia (Ruiz & Pav.) A. DC.
Une mise en garde de nomenclature mérite d’être notée : des sources non spécialisées font circuler la combinaison Varronia lutea attribuée à Borhidi, qui ne correspond à aucun nom validement publié pour cette plante. La recombinaison de Borhidi qui existe réellement est Gerascanthus luteus.
Quant à l’étymologie, le nom générique rend hommage à Valerius Cordus (1515-1544), botaniste et apothicaire allemand dont l’oeuvre sur la matière médicale a circulé dans toute l’Europe de la Renaissance. L’épithète vient du latin luteus, jaune, référence directe à la coloration de la corolle, qui est le caractère le plus évident de l’espèce sur le terrain.
Description Morphologique
Il s’agit d’un arbuste densément ramifié ou d’un petit arbre, de 2 à 8 mètres de hauteur, à couronne ouverte et au port étalé. Le tronc dépasse rarement 20 centimètres de diamètre et se montre souvent tortueux, revêtu d’une écorce grise et finement fissurée. Aux saisons les plus sèches, la plante perd une partie ou la totalité de ses feuilles, comportement caducifolié qui varie selon le régime des pluies de chaque population.
Feuilles
Les feuilles sont alternes, simples et dépourvues de stipules, longues de 4 à 10 centimètres. Le contour va d’ovale à suborbiculaire, avec un apex arrondi à obtus et une marge finement dentée à crénelée. La face supérieure est rugueuse au toucher et pratiquement glabre, tandis que la face inférieure porte des poils répartis sur la nervure principale et sur le limbe. Le pétiole est court, ce qui donne au rameau feuillé un aspect compact lorsqu’on le regarde d’en haut.
Fleurs
Les fleurs naissent en cymes terminales et concentrent toute la valeur diagnostique de l’espèce. Le calice est cylindrique, long d’environ 10 millimètres et large de 5 à 7 millimètres, strié longitudinalement et persistant. La corolle est gamopétale, d’un jaune vif et en forme de trompette, mesurant de 2 à 4 centimètres de diamètre à la gorge, avec cinq à huit lobes étalés. Les étamines varient elles aussi de cinq à huit et restent insérées dans le tube. Le parfum est doucereux et perceptible à courte distance.
L’espèce est hétérostyle, avec deux morphes floraux répartis sur des individus différents. L’un présente un style long et des anthères basses, l’autre associe un style court à des anthères hautes. Cette architecture réciproque favorise le transfert de pollen entre morphes complémentaires, et les expériences de pollinisation montrent une fructification nettement plus forte lors des croisements légitimes.
Fruits et Graines
Le fruit est une drupe globuleuse de 8 à 12 millimètres de diamètre, blanche et translucide à maturité, posée à la base sur le calice persistant qui demeure vert et strié. La pulpe est abondamment mucilagineuse et adhère facilement aux surfaces, caractéristique aux conséquences écologiques directes. La saveur commence agréablement sucrée et devient amère en quelques secondes. Chaque fruit abrite d’une à quatre graines protégées par un endocarpe dur.
Racine et Tige
Les tiges sont longues, grêles et dressées, les rameaux jeunes pubescents perdant leurs poils en se lignifiant. L’écorce grise se détache en plaques minces chez les sujets les plus âgés. La plante rejette facilement depuis la base et s’enracine à partir de boutures ligneuses, atout exploité de longue date dans la formation de haies vives dans les zones sèches de l’Équateur et du Pérou.
Répartition et Habitat
L’aire indigène couvre l’ouest de l’Amérique du Sud et englobe la Colombie, l’Équateur continental, l’Équateur insulaire dans l’archipel des Galápagos et le Pérou. Sur le territoire péruvien, l’espèce suit la frange côtière du Pacifique et les vallées interandines sèches, et elle fait partie des forêts sèches de Tumbes, Piura et Lambayeque. Aux Galápagos, elle est considérée comme indigène et occupe la zone aride des basses terres, avec une forte présence à proximité du trait de côte.
Hors de son aire naturelle, le Cordia lutea a été introduit à Hawaï et aux îles Marquises. Sur l’île d’Hawaï, il est répertorié comme naturalisé, et l’évaluation du risque d’invasivité appliquée dans l’archipel lui a attribué une note faible, sans preuve d’impact négatif documenté hors de la distribution d’origine à ce jour. Ce résultat contraste avec le comportement d’autres espèces du genre sur les îles du Pacifique, ce qui renforce la nécessité d’un suivi continu.
Le biome caractéristique est le tropical saisonnièrement sec. Les populations se répartissent du niveau de la mer jusqu’à environ 1 500 mètres, avec des relevés ponctuels à des altitudes plus élevées dans les vallées interandines. La plante prospère sous de faibles précipitations et supporte de longues périodes sans pluie, se comportant en xérophyte facultative qui répond vite aux impulsions de précipitation. Quant au substrat, elle pousse sur des sols sableux, sur les argiles gonflantes d’anciens lits humides et sur des terrains à salinité élevée, tolérance peu commune chez les arbres ornementaux à floraison spectaculaire.
Culture
La propagation se fait par semis et par boutures, et les deux voies sont utilisées dans les pépinières de restauration en Équateur et au Pérou. Les graines présentent une dormance liée à l’endocarpe dur et au mucilage qui enveloppe le fruit, si bien que le nettoyage soigneux de la pulpe constitue la première étape de tout lot. La scarification mécanique et le traitement à l’acide gibbérellique apparaissent dans la littérature comme des moyens d’uniformiser la germination, et des essais péruviens montrent que le passage par le tube digestif de disséminateurs naturels modifie lui aussi la réponse germinative des graines.
Le bouturage est la voie la plus directe pour une production à grande échelle. Des essais menés dans la province de Santa Elena, sur le littoral équatorien, indiquent une reprise satisfaisante même sans application d’hormone d’enracinement, avec des résultats qui appuient l’usage de l’espèce dans les plantations fourragères et les haies vives. Le matériel ligneux réagit bien et la densité de rejets est en général élevée.
Sur le terrain, la plante exige le plein soleil et un sol bien drainé. Elle tolère la sécheresse prolongée, la salinité et les sols pauvres, mais ne supporte pas le gel, ce qui limite sa culture aux régions tropicales et subtropicales sans risque de températures négatives. Des arrosages espacés suffisent après l’installation, et l’excès d’humidité dans le substrat reste l’erreur la plus fréquente en pépinière.
Les relevés de ravageurs spécifiques sont rares. À Hawaï, l’espèce a été identifiée comme hôte alternatif de la cochenille lobée, ce qui a motivé une attention phytosanitaire dans les plantations ornementales de l’archipel. Les cochenilles en général apparaissent sur les rameaux lorsque la ventilation est insuffisante. La récolte des fruits se fait quand la drupe atteint la coloration blanche translucide et que la pulpe se ramollit, moment où les graines sont déjà mûres et l’extraction plus simple.
Phénologie
Le cycle annuel a été suivi en détail dans la Réserve écologique privée de Chaparrí, à Chongoyape, dans la région de Lambayeque, entre juillet 2004 et juin 2005. Le développement végétatif se produit toute l’année et culmine entre février et avril, avec des valeurs proches de 60 pour cent. L’émission de bourgeons se concentre entre janvier et juin, avec un maximum autour de 20 pour cent en janvier et février. La floraison prédomine de décembre à juin, également de l’ordre de 20 pour cent en moyenne, tandis que la fructification se répartit sur l’année entière et atteint un maximum de 14 pour cent en août, avec des fruits verts et mûrs sur le même pied. La température s’est révélée corrélée aux trois phases.
La pollinisation associe des agents diurnes et nocturnes. Les abeilles charpentières sont les visiteuses diurnes les plus efficaces, et aux Galápagos ce rôle revient à Xylocopa darwini, seule abeille indigène de l’archipel et généraliste extrême dans les réseaux locaux de pollinisation. La nuit, ce sont les papillons nocturnes qui entrent en scène, et ils se sont révélés plus efficaces pour transporter le pollen entre des pieds distincts. Le système de croisement est mixte, avec une production de fruits relativement faible résultant de la combinaison entre autopollinisation et pollinisation croisée dans un milieu où peu d’insectes sont disponibles.
La dissémination est majoritairement zoochore. Oiseaux et lézards de lave consomment les fruits aux Galápagos, et la pulpe collante adhère au corps d’animaux de grande taille, tortues géantes et oiseaux marins compris, ce qui ouvre une voie de transport épizoochore supplémentaire. Dans le nord du Pérou, le renard de Sechura, Lycalopex sechurae, ingère les fruits et figure parmi les disséminateurs documentés de l’espèce en forêt sèche.
Espèces Apparentées et Confusions
Au sein du genre, la coloration de la corolle et l’aspect du fruit résolvent la plupart des doutes. Trois parents concentrent les méprises les plus courantes dans les collections et en aménagement paysager :
- Cordia sebestena L. : corolle orangé rougeâtre et non jaune, feuilles plus grandes et plus coriaces. C’est l’espèce qui répond au nom horticole orange geiger et qui pousse naturellement dans les Caraïbes.
- Cordia sinensis Lam. : petites fleurs d’un jaune crème, fruits mûrissant dans des tons orangés à rouges, face au blanc translucide du Cordia lutea. Sa répartition est afro-asiatique, avec un rôle écologique analogue en zone aride.
- Cordia subcordata Lam. : corolle orangée, feuilles cordées de plus grande taille et fruit ligneux à endocarpe flottant adapté à la dissémination marine. Il pousse dans les îles du Pacifique et de l’océan Indien, où il peut côtoyer des populations introduites de Cordia lutea.
Hors des Boraginacées, la confusion la plus fréquente concerne Tecoma stans (L.) Juss. ex Kunth, de la famille des Bignoniacées, qui présente de loin des fleurs jaunes tubulaires d’apparence semblable. La distinction est immédiate par les feuilles, composées imparipennées chez Tecoma stans et simples chez Cordia lutea, et par le fruit, une capsule linéaire allongée qui n’a rien à voir avec la drupe blanche de la Boraginacée.
Un avertissement d’identification mérite d’être consigné. Les Boraginacées réunissent des genres qui accumulent des alcaloïdes pyrrolizidiniques hépatotoxiques, parmi lesquels Echium, Heliotropium et Symphytum. Le matériel végétatif stérile de Boraginacées est difficile à déterminer avec certitude, et les récoltes sans fleur ni fruit ne permettent pas de séparer avec confiance le Cordia lutea de ces voisins.
Phytochimie du Genre Cordia
Le profil chimique le mieux caractérisé est celui des fleurs. Une évaluation phytochimique préliminaire menée sur du matériel provenant d’Otuzco, au Pérou, a identifié des composés phénoliques, des leucoanthocyanidines et des flavonoïdes comme classes prédominantes dans les extraits méthanolique et éthanolique obtenus par reflux. La quantification par chromatographie liquide haute performance a enregistré 60,63 milligrammes de rutine et 0,558 milligramme de quercétine par gramme d’échantillon sec, ce qui place la rutine comme flavonoïde majoritaire de loin.
Un relevé antérieur de composition chimique, cité dans ce même travail, a trouvé des fractions de rutine et de quercétine du même ordre de grandeur en pourcentage et a enregistré des acides gras parmi les constituants, avec l’acide linoléique, l’acide palmitique et l’hexadécanoate de glycéryle à des teneurs proches de 0,1 pour cent. L’analyse par chromatographie en phase gazeuse couplée à la spectrométrie de masse de l’extrait éthanolique floral a en outre relevé des esters butyliques d’acides gras à longue chaîne et de l’acide gibbérellique.
Ce même relevé n’a détecté aucun alcaloïde pyrrolizidinique dans les fleurs analysées. Le constat mérite d’être signalé, car ce groupe de métabolites est fréquent chez les Boraginacées, et l’absence dans un échantillon ne s’étend pas automatiquement à d’autres populations, à d’autres organes de la plante ni à d’autres phases phénologiques.
Dans les fruits, le composant dominant est le mucilage, un complexe polysaccharidique responsable de la consistance visqueuse et adhésive de la pulpe. C’est cette fraction qui confère au fruit mûr la capacité d’adhérer aux surfaces et qui a soutenu l’exploitation historique décrite plus loin. L’écorce et les feuilles concentrent des composés phénoliques, sans qu’il existe pour elles une caractérisation quantitative aussi détaillée que celle disponible pour les fleurs.
Histoire et Ethnobotanique
Lamarck a décrit formellement l’espèce en 1791 à partir de matériel sud-américain, à une époque où les collections péruviennes de Ruiz et Pavón alimentaient les herbiers européens. Ce n’est pas un hasard si le nom Cordia rotundifolia, publié par ces deux botanistes espagnols, a fini réduit à la synonymie du binôme de Lamarck.
Les usages les plus caractéristiques de la plante n’ont rien de médicinal. Le mucilage du fruit a servi de colle à papier et de fixateur capillaire dans des communautés équatoriennes, application redevenue objet d’étude ces dernières années comme matière première cosmétique à l’Universidad Politécnica Salesiana. Le bois a été employé pour la construction de barques, de pirogues et de structures simples dans les bourgades du littoral. Sur la côte équatorienne, l’espèce a été intégrée à des systèmes fourragers, en profitant de la densité de feuillage qu’elle atteint, et dans toute son aire les agriculteurs l’ont plantée en haie vive et coupée pour le bois de feu. Le fruit mûr a été consommé cru comme fruit sauvage, même si l’amertume tardive en limitait l’attrait.
Les enquêtes ethnobotaniques réalisées au Pérou entre les années 1990 et 2000, dont l’étude menée dans la province de Canta, à Lima, ont recensé le Cordia lutea parmi les plantes présentes dans le répertoire domestique des communautés andines et côtières. Ces inventaires documentent la mémoire culturelle associée à l’espèce et ne constituent aucune recommandation de quelque nature que ce soit. Aux Galápagos, la plante figure dans les listes historiques de végétaux utiles des premiers établissements de l’archipel, surtout pour son fruit et pour son bois.
Conservation
Le Cordia lutea a été évalué sur la Liste rouge de l’UICN et classé en Préoccupation mineure, lors de l’évaluation de 2019 conduite dans le cadre du Global Tree Specialist Group. La justification s’appuie sur la vaste répartition, sur la population nombreuse et sur l’absence de menaces notables identifiées pour l’espèce sur l’ensemble de son aire. Il ne figure dans aucune des annexes de la CITES.
La lecture confortable du statut individuel ne doit pas masquer la fragilité du milieu où vit la plante. Les forêts sèches du nord-ouest péruvien et les fourrés secs côtiers de l’Équateur comptent parmi les écosystèmes les plus fragmentés d’Amérique du Sud, sous la pression de l’expansion agricole et de l’élevage, de l’extraction de bois de feu et du pâturage caprin. L’espèce est fréquemment employée dans les programmes de restauration de terres dégradées en zone aride des deux pays, justement pour sa facilité de multiplication et sa tolérance aux sols difficiles.
Il existe encore une dimension indirecte de conservation. À Chaparrí, le Cordia lutea fait partie de l’ensemble d’espèces qui fournissent de la nourriture au pénélope à ailes blanches, Penelope albipennis, oiseau endémique du nord du Pérou et l’un des plus menacés du continent. Les études de phénologie de ce régime alimentaire ont été conçues précisément pour comprendre la disponibilité saisonnière des ressources pour l’oiseau, ce qui confère à la plante un rôle fonctionnel qui dépasse sa propre catégorie de risque.
Curiosités
- L’espèce est distyle : certains individus portent un style long et des anthères basses, d’autres l’arrangement inverse, et la fructification n’est abondante que lorsque le pollen circule entre les deux types complémentaires.
- Les papillons nocturnes surpassent les abeilles dans le transport du pollen entre pieds distincts, résultat contre-intuitif pour une fleur jaune, voyante et parfumée en plein jour.
- La pulpe du fruit est adhésive au point d’avoir servi de colle à papier et de fixateur capillaire, et elle continue d’être étudiée comme matière première cosmétique.
- Aux Galápagos, les feuilles sont minées par le papillon Bucculatrix cordiaella, dont l’épithète spécifique renvoie directement à la plante hôte.
- Dans le commerce des plantes ornementales de langue anglaise, l’espèce est le yellow geiger et forme paire avec l’orange geiger, nom donné à Cordia sebestena.
Avertissement: ce contenu est informatif et ne remplace pas l’avis d’un professionnel de santé. Consultez un médecin ou un phytothérapeute avant d’utiliser des plantes médicinales, notamment pendant la grossesse, l’allaitement ou en cas de prise de médicaments.
Références et Études Scientifiques
Voir les 10 Références Citées
- Charles Darwin Foundation. Galapagos Species Checklist: Cordia lutea Lam. Fondation Charles Darwin, Puerto Ayora, Équateur.
- 2007 De la Cruz, H.; Vilcapoma, G.; Zevallos, P. A. Ethnobotanical study of medicinal plants used by the Andean people of Canta, Lima, Peru. Journal of Ethnopharmacology, 111(2), 2007.
- International Plant Names Index. Cordia lutea Lam., Tabl. Encycl. 1: 421 (1791), ID 274993-2. Royal Botanic Gardens Kew, Harvard University Herbaria et Australian National Botanic Gardens.
- 2019 IUCN. The IUCN Red List of Threatened Species: Cordia lutea. Évaluation de 2019, Global Tree Specialist Group.
- Lamarck, J.-B. Tableau encyclopédique et méthodique des trois règnes de la nature. Botanique, vol. 1, p. 421. Paris, 1791.
- 2008 Martos, J. R.; Scarpati, M.; Rojas, C.; Delgado, G. E. Fenología de algunas especies que son alimento para la pava aliblanca Penelope albipennis. Revista Peruana de Biología, 15(2), 2008.
- 1999 McMullen, C. K. Flowering Plants of the Galápagos. Cornell University Press, Ithaca, 1999.
- 2011 McMullen, C. K. Pollination of the heterostylous Galápagos native Cordia lutea (Boraginaceae). Plant Systematics and Evolution, 2011.
- Plants of the World Online. Cordia lutea Lam. Royal Botanic Gardens Kew, Londres.
- 2019 Venegas Casanova, E. A.; Gómez Alva, A. M.; Chávez León, A. N.; Valdiviezo Campos, J. E.; Ormeño Llanos, M.; Vásquez Corales, E. Evaluación fitoquímica preliminar del extracto metanólico y etanólico de las flores de Cordia lutea Lam. (Boraginaceae) y su capacidad antioxidante. Arnaldoa, 26(1): 359-368, 2019.