La Cordia lutea es un arbusto muy ramificado o un árbol pequeño de la familia Boraginaceae, reconocible desde lejos por las flores amarillas en forma de trompeta que cubren la copa durante buena parte del año. La especie ocupa las tierras bajas secas del occidente de América del Sur, desde Colombia hasta el Perú, y alcanza también el archipiélago de Galápagos, donde figura entre las plantas nativas más comunes de la zona árida litoral. En los bosques secos del noroeste peruano es un elemento estructural del paisaje y comparte el estrato arbustivo con algarrobos y zapotes.
El nombre popular varía según la región. Muyuyo es la forma corriente en el Ecuador y en Galápagos, mientras que en el norte del Perú circulan overo y flor de overo. En el comercio hortícola de lengua inglesa la planta recibió la etiqueta yellow geiger, en contraste deliberado con el orange geiger que se aplica a Cordia sebestena. Esa dispersión de nombres locales convierte al binomio en la referencia más segura para quien busca la especie en viveros o en herbarios.
Lo que hace notable a la Cordia lutea va bastante más allá del atractivo ornamental. Es una de las pocas Boraginaceae neotropicales con un sistema reproductivo heterostílico bien documentado, sostiene una red de polinizadores diurnos y nocturnos en islas oceánicas pobres en insectos, y produce frutos de pulpa tan mucilaginosa que las comunidades andinas y costeras la emplearon como cola. Este perfil reúne la taxonomía formal, la morfología diagnóstica, la ecología de zonas áridas, la fitoquímica descriptiva y el registro histórico de usos, sin ninguna orientación de empleo actual.
Taxonomía
La Cordia lutea pertenece a las Boraginaceae en la circunscripción amplia que adopta el APG IV, dentro de la subfamilia Cordioideae. Parte de la literatura trata a las Cordiaceae como familia independiente, un arreglo que no altera la posición relativa de la especie. El género Cordia reúne varios cientos de especies pantropicales, con su mayor diversidad en el Neotrópico.
- Reino: Plantae
- División: Tracheophyta (angiospermas)
- Clase: Magnoliopsida
- Orden: Boraginales
- Familia: Boraginaceae Juss.
- Subfamilia: Cordioideae
- Género: Cordia L.
- Especie: Cordia lutea Lam., 1791
El protólogo apareció en el primer volumen del Tableau encyclopédique et méthodique des trois règnes de la nature, Botanique, de Jean-Baptiste de Lamarck, en la página 421, en 1791. El registro consta en el International Plant Names Index bajo el identificador 274993-2, y Plants of the World Online mantiene el binomio como nombre aceptado, sin propuestas de recombinación en vigor.
La sinonimia es larga, reflejo de los sucesivos reordenamientos genéricos que atravesaron las Boraginales a lo largo del siglo XIX y del siglo XX. Plants of the World Online reconoce alrededor de una docena de nombres subordinados, entre ellos:
- Calyptracordia rotundifolia (Ruiz & Pav.) Friesen
- Coilanthera rotundifolia (Ruiz & Pav.) Raf.
- Cordia flava (Andersson) Gürke
- Cordia marchionica Drake
- Cordia rotundifolia Ruiz & Pav.
- Ectemis lutea (Lam.) Raf.
- Firensia lutea (Lam.) Raf.
- Gerascanthus luteus (Lam.) Borhidi
- Gerascanthus rotundifolius (Ruiz & Pav.) Friesen
- Lithocardium flavum (Andersson) Kuntze
- Lithocardium rotundifolium (Ruiz & Pav.) Kuntze
- Varronia flava Andersson
- Varronia rotundifolia (Ruiz & Pav.) A. DC.
Conviene registrar una advertencia de nomenclatura: en fuentes no especializadas circula la combinación Varronia lutea atribuida a Borhidi, que no corresponde a ningún nombre válidamente publicado para esta planta. La recombinación de Borhidi que sí existe es Gerascanthus luteus.
En cuanto a la etimología, el nombre genérico honra a Valerius Cordus (1515-1544), botánico y farmacéutico alemán cuya obra sobre materia médica circuló por toda la Europa renacentista. El epíteto proviene del latín luteus, amarillo, en referencia directa a la coloración de la corola, que es el carácter más evidente de la especie en el campo.
Descripción Morfológica
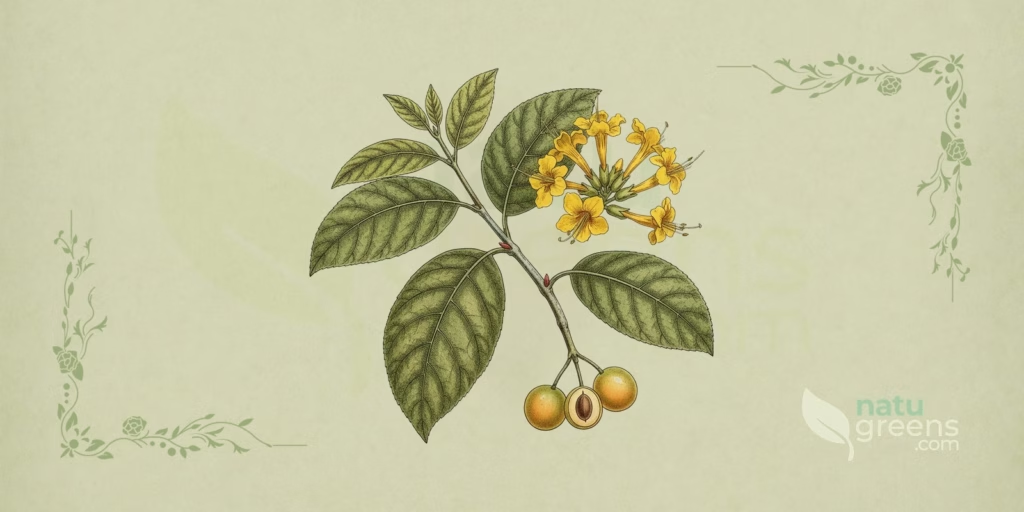
Se trata de un arbusto densamente ramificado o de un árbol pequeño, de entre 2 y 8 metros de altura, con copa abierta y porte extendido. El tronco rara vez supera los 20 centímetros de diámetro y suele ser tortuoso, revestido por una corteza gris y finamente fisurada. En las estaciones más secas la planta pierde parte o la totalidad de las hojas, un comportamiento caducifolio que varía según el régimen de lluvias de cada población.
Hojas
Las hojas son alternas, simples y sin estípulas, y miden de 4 a 10 centímetros de largo. El contorno va de ovado a suborbicular, con ápice redondeado a obtuso y margen finamente dentado a crenado. La cara superior es áspera al tacto y prácticamente glabra, mientras que la inferior lleva pelos repartidos sobre el nervio principal y el limbo. El pecíolo es corto, lo que da a la rama foliada un aspecto compacto cuando se la mira desde arriba.
Flores
Las flores nacen en cimas terminales y concentran todo el valor diagnóstico de la especie. El cáliz es cilíndrico, de unos 10 milímetros de largo y de 5 a 7 milímetros de ancho, estriado longitudinalmente y persistente. La corola es gamopétala, de un amarillo vivo y en forma de trompeta, y mide de 2 a 4 centímetros de diámetro en la garganta, con cinco a ocho lóbulos expandidos. Los estambres también varían de cinco a ocho y quedan insertos en el tubo. El perfume es dulzón y se percibe a corta distancia.
La especie es heterostílica, con dos morfos florales repartidos en individuos diferentes. Uno presenta estilo largo y anteras bajas, el otro combina estilo corto con anteras altas. Esa arquitectura recíproca favorece la transferencia de polen entre morfos complementarios, y los experimentos de polinización muestran una fructificación bastante mayor en los cruzamientos legítimos.
Frutos y Semillas
El fruto es una drupa globosa de 8 a 12 milímetros de diámetro, blanca y translúcida cuando madura, asentada en la base sobre el cáliz persistente, que permanece verde y estriado. La pulpa es abundantemente mucilaginosa y se adhiere con facilidad a las superficies, una característica con consecuencias ecológicas directas. El sabor empieza agradablemente dulce y deriva hacia el amargo en pocos segundos. Cada fruto alberga de una a cuatro semillas protegidas por un endocarpo duro.
Raíz y Tallo
Los tallos son largos, delgados y erectos, con ramas jóvenes pubescentes que pierden los pelos al lignificarse. La corteza gris se desprende en placas finas en los ejemplares más viejos. La planta rebrota con facilidad desde la base y enraíza a partir de estacas leñosas, un atributo aprovechado desde hace mucho en la formación de cercos vivos en las zonas secas del Ecuador y del Perú.
Distribución y Hábitat
El área nativa cubre el occidente de América del Sur y abarca Colombia, el Ecuador continental, el Ecuador insular en el archipiélago de Galápagos y el Perú. En territorio peruano la especie acompaña la franja costera del Pacífico y los valles interandinos secos, e integra los bosques secos de Tumbes, Piura y Lambayeque. En Galápagos se la considera nativa y ocupa la zona árida de las tierras bajas, con fuerte presencia en las proximidades de la línea de costa.
Fuera de su área natural, la Cordia lutea fue introducida en Hawái y en las islas Marquesas. En la isla de Hawái consta como naturalizada, y la evaluación de riesgo de invasividad aplicada en el archipiélago le atribuyó una puntuación baja, sin evidencia de impacto negativo documentado fuera de la distribución original hasta el momento. Ese resultado contrasta con el comportamiento de otras especies del género en islas del Pacífico, lo que refuerza la necesidad de un monitoreo continuado.
El bioma característico es el tropical estacionalmente seco. Las poblaciones se distribuyen desde el nivel del mar hasta unos 1.500 metros, con registros puntuales en cotas más altas de los valles interandinos. La planta prospera con pluviosidad baja y soporta largos períodos sin lluvia, y se comporta como una xerófita facultativa que responde con rapidez a los pulsos de precipitación. En cuanto al sustrato, aparece en suelos arenosos, en arcillas expansivas de antiguos lechos húmedos y en terrenos de salinidad elevada, una tolerancia poco común entre los árboles ornamentales de flor vistosa.
Cultivo
La propagación se hace por semillas y por estacas, y las dos vías se emplean en viveros de restauración del Ecuador y del Perú. Las semillas presentan una latencia asociada al endocarpo duro y al mucílago que envuelve al fruto, de modo que la limpieza cuidadosa de la pulpa es la primera etapa de cualquier lote. La escarificación mecánica y el tratamiento con ácido giberélico aparecen en la literatura como recursos para uniformar la germinación, y los ensayos peruanos muestran que el paso por el tracto digestivo de dispersores naturales también modifica la respuesta germinativa de las semillas.
La estaquilla es la vía más directa para la producción a escala. Los ensayos realizados en la provincia de Santa Elena, en el litoral ecuatoriano, indican un prendimiento satisfactorio incluso sin aplicación de enraizante, con resultados que respaldan el uso de la especie en plantaciones forrajeras y en cercos vivos. El material leñoso responde bien y la densidad de rebrote suele ser alta.
En campo, la planta exige sol pleno y suelo bien drenado. Tolera la sequía prolongada, la salinidad y los suelos pobres, pero no soporta la helada, lo que limita el cultivo a regiones tropicales y subtropicales sin riesgo de temperaturas bajo cero. Los riegos espaciados bastan después del establecimiento, y el exceso de humedad en el sustrato es el error más frecuente en vivero.
Los registros de plagas específicas son escasos. En Hawái la especie fue identificada como hospedera alternativa de la cochinilla lobata, lo que motivó atención fitosanitaria en las plantaciones ornamentales del archipiélago. Las cochinillas en general aparecen en las ramas cuando la ventilación es deficiente. La cosecha de frutos se hace cuando la drupa alcanza la coloración blanca translúcida y la pulpa se ablanda, momento en que las semillas ya están maduras y la extracción resulta más sencilla.
Fenología
El ciclo anual se siguió en detalle en la Reserva Ecológica Privada Chaparrí, en Chongoyape, Lambayeque, entre julio de 2004 y junio de 2005. El desarrollo vegetativo ocurre a lo largo de todo el año y alcanza su pico entre febrero y abril, con valores próximos al 60 por ciento. La emisión de brotes se concentra entre enero y junio, con un máximo en torno al 20 por ciento en enero y febrero. La floración predomina de diciembre a junio, también en el orden del 20 por ciento en promedio, mientras que la fructificación se reparte por el año entero y alcanza un máximo del 14 por ciento en agosto, con frutos verdes y maduros en la misma planta. La temperatura mostró correlación con las tres fases.
La polinización combina agentes diurnos y nocturnos. Las abejas carpinteras son las visitantes diurnas más efectivas, y en Galápagos ese papel le corresponde a Xylocopa darwini, única abeja nativa del archipiélago y generalista extrema en las redes locales de polinización. De noche entran las polillas, que resultaron más eficientes en el transporte de polen entre plantas distintas. El sistema de cruzamiento es mixto, con una producción relativamente baja de frutos derivada de la combinación entre autopolinización y polinización cruzada en un ambiente con pocos insectos disponibles.
La dispersión es predominantemente zoocórica. Aves y lagartijas de lava consumen los frutos en Galápagos, y la pulpa pegajosa se adhiere al cuerpo de animales de gran porte, tortugas gigantes y aves marinas incluidas, lo que abre una vía adicional de transporte epizoocórico. En el norte del Perú, el zorro de Sechura, Lycalopex sechurae, ingiere los frutos y figura entre los dispersores documentados de la especie en bosque seco.
Especies Relacionadas y Confusiones
Dentro del género, la coloración de la corola y el aspecto del fruto resuelven la mayor parte de las dudas. Tres parientes concentran los equívocos más comunes en colecciones y paisajismo:
- Cordia sebestena L.: corola anaranjada rojiza, no amarilla, y hojas mayores y más coriáceas. Es la especie que responde al nombre hortícola orange geiger y crece de manera natural en el Caribe.
- Cordia sinensis Lam.: flores pequeñas y de un amarillo cremoso, con frutos que maduran en tonos anaranjados a rojos, frente al blanco translúcido de la Cordia lutea. Su distribución es afroasiática, con un papel ecológico análogo en zonas áridas.
- Cordia subcordata Lam.: corola anaranjada, hojas cordadas de mayor porte y fruto leñoso con endocarpo flotante adaptado a la dispersión marina. Crece en las islas del Pacífico y del Índico, donde puede convivir con poblaciones introducidas de Cordia lutea.
Fuera de las Boraginaceae, la confusión más frecuente involucra a Tecoma stans (L.) Juss. ex Kunth, de la familia Bignoniaceae, que exhibe flores amarillas tubulares de apariencia semejante a la distancia. La separación es inmediata por las hojas, compuestas imparipinnadas en Tecoma stans y simples en Cordia lutea, y por el fruto, una cápsula lineal alargada que nada tiene que ver con la drupa blanca de la Boraginaceae.
Una advertencia de identificación merece registro. Las Boraginaceae reúnen géneros que acumulan alcaloides pirrolizidínicos hepatotóxicos, entre ellos Echium, Heliotropium y Symphytum. El material vegetativo estéril de Boraginaceae es difícil de determinar con seguridad, y las colectas sin flor ni fruto no permiten separar con confianza a la Cordia lutea de esos vecinos.
Fitoquímica de Cordia lutea
El perfil químico mejor caracterizado es el de las flores. Una evaluación fitoquímica preliminar realizada con material procedente de Otuzco, en el Perú, identificó compuestos fenólicos, leucoantocianidinas y flavonoides como las clases predominantes en los extractos metanólico y etanólico obtenidos por reflujo. La cuantificación por cromatografía líquida de alta eficiencia registró 60,63 miligramos de rutina y 0,558 miligramos de quercetina por gramo de muestra seca, lo que sitúa a la rutina como flavonoide mayoritario por amplio margen.
Un relevamiento anterior de composición química, citado en ese mismo trabajo, encontró fracciones de rutina y quercetina del mismo orden de magnitud porcentual y registró ácidos grasos entre los constituyentes, con ácido linoleico, ácido palmítico y hexadecanoato de glicerilo en contenidos próximos al 0,1 por ciento. El análisis por cromatografía de gases acoplada a espectrometría de masas del extracto etanólico floral registró además ésteres butílicos de ácidos grasos de cadena larga y ácido giberélico.
Ese mismo relevamiento no detectó alcaloides pirrolizidínicos en las flores analizadas. El hallazgo es digno de nota porque ese grupo de metabolitos es frecuente en las Boraginaceae, y la ausencia en una muestra no se extiende automáticamente a otras poblaciones, a otros órganos de la planta ni a otras fases fenológicas.
En los frutos, el componente dominante es el mucílago, un complejo polisacárido responsable de la consistencia viscosa y adhesiva de la pulpa. Es esa fracción la que confiere al fruto maduro la capacidad de adherirse a las superficies y la que sostuvo el aprovechamiento histórico descrito más adelante. La corteza y las hojas concentran compuestos fenólicos, sin que exista para ellas una caracterización cuantitativa tan detallada como la disponible para las flores.
Historia y Etnobotánica
Lamarck describió formalmente la especie en 1791 a partir de material sudamericano, en una época en que las colecciones peruanas de Ruiz y Pavón alimentaban los herbarios europeos. No por casualidad, el nombre Cordia rotundifolia, publicado por esos dos botánicos españoles, terminó reducido a la sinonimia del binomio de Lamarck.
Los registros de uso más característicos de la planta nada tienen de medicinal. El mucílago del fruto se empleó como cola de papel y como fijador del cabello en comunidades ecuatorianas, una aplicación que volvió a estudiarse en años recientes como materia prima cosmética en la Universidad Politécnica Salesiana. La madera sirvió en la construcción de barcos, canoas y estructuras sencillas en las poblaciones litorales. En el litoral del Ecuador la especie se incorporó a sistemas forrajeros, aprovechando la densidad de follaje que alcanza, y en toda su área de ocurrencia los agricultores la plantaron como cerco vivo y la cortaron para leña. El fruto maduro se consumió crudo como fruta silvestre, aunque el amargor tardío limitaba el apetito por él.
Los relevamientos etnobotánicos realizados en el Perú entre las décadas de 1990 y 2000, entre ellos el estudio conducido en la provincia de Canta, en Lima, registraron a la Cordia lutea entre las plantas presentes en el repertorio doméstico de las comunidades andinas y costeras. Esos inventarios documentan la memoria cultural asociada a la especie y no constituyen recomendación de ninguna naturaleza. En Galápagos, la planta aparece en los listados históricos de vegetales útiles de las primeras poblaciones del archipiélago, sobre todo por el fruto y por la madera.
Conservación
La Cordia lutea fue evaluada en la Lista Roja de la UICN y clasificada como Preocupación Menor, en la evaluación de 2019 conducida en el ámbito del Global Tree Specialist Group. La justificación se apoya en la distribución amplia, en la población numerosa y en la ausencia de amenazas relevantes identificadas para la especie en el conjunto de su área de ocurrencia. No consta en ninguno de los apéndices de la CITES.
La lectura cómoda del estatus individual no debe ocultar la fragilidad del ambiente donde vive la planta. Los bosques secos del noroeste peruano y los matorrales secos costeros del Ecuador se cuentan entre los ecosistemas más fragmentados de América del Sur, presionados por la expansión agropecuaria, por la extracción de leña y por el pastoreo de caprinos. La especie se emplea con frecuencia en programas de recuperación de áreas degradadas en zonas áridas de los dos países, justamente por la facilidad de propagación y por la tolerancia a suelos difíciles.
Existe además una dimensión indirecta de conservación. En Chaparrí, la Cordia lutea integra el conjunto de especies que proveen alimento a la pava aliblanca, Penelope albipennis, ave endémica del norte del Perú y una de las más amenazadas del continente. Los estudios de fenología de esa dieta se diseñaron precisamente para entender la disponibilidad estacional de recursos para el ave, lo que otorga a la planta un papel funcional que sobrepasa su propia categoría de riesgo.
Curiosidades
- La especie es distílica: hay individuos con estilo largo y anteras bajas e individuos con la disposición inversa, y la fructificación solo es robusta cuando el polen viaja entre los dos tipos complementarios.
- Las polillas nocturnas superan a las abejas en el transporte de polen entre plantas distintas, un resultado contraintuitivo para una flor amarilla, vistosa y perfumada durante el día.
- La pulpa del fruto es adhesiva hasta el punto de haber servido como cola de papel y como fijador del cabello, y sigue siendo investigada como materia prima cosmética.
- En Galápagos las hojas son minadas por la polilla Bucculatrix cordiaella, cuyo epíteto específico remite directamente a la planta hospedera.
- En el comercio de plantas ornamentales de lengua inglesa la especie es el yellow geiger, y forma par con el orange geiger, nombre dado a Cordia sebestena.
Aviso: este contenido es informativo y no sustituye la orientación de un profesional de la salud. Consulte a un médico o fitoterapeuta antes de usar plantas medicinales, especialmente durante el embarazo, la lactancia o si toma medicamentos.
Referencias y Estudios Científicos
Ver Todas las 10 Referencias Citadas
- Charles Darwin Foundation. Galapagos Species Checklist: Cordia lutea Lam. Fundación Charles Darwin, Puerto Ayora, Ecuador.
- 2007 De la Cruz, H.; Vilcapoma, G.; Zevallos, P. A. Ethnobotanical study of medicinal plants used by the Andean people of Canta, Lima, Peru. Journal of Ethnopharmacology, 111(2), 2007.
- International Plant Names Index. Cordia lutea Lam., Tabl. Encycl. 1: 421 (1791), ID 274993-2. Royal Botanic Gardens Kew, Harvard University Herbaria y Australian National Botanic Gardens.
- 2019 IUCN. The IUCN Red List of Threatened Species: Cordia lutea. Evaluación de 2019, Global Tree Specialist Group.
- Lamarck, J.-B. Tableau encyclopédique et méthodique des trois règnes de la nature. Botanique, vol. 1, p. 421. París, 1791.
- 2008 Martos, J. R.; Scarpati, M.; Rojas, C.; Delgado, G. E. Fenología de algunas especies que son alimento para la pava aliblanca Penelope albipennis. Revista Peruana de Biología, 15(2), 2008.
- 1999 McMullen, C. K. Flowering Plants of the Galápagos. Cornell University Press, Ithaca, 1999.
- 2011 McMullen, C. K. Pollination of the heterostylous Galápagos native Cordia lutea (Boraginaceae). Plant Systematics and Evolution, 2011.
- Plants of the World Online. Cordia lutea Lam. Royal Botanic Gardens Kew, Londres.
- 2019 Venegas Casanova, E. A.; Gómez Alva, A. M.; Chávez León, A. N.; Valdiviezo Campos, J. E.; Ormeño Llanos, M.; Vásquez Corales, E. Evaluación fitoquímica preliminar del extracto metanólico y etanólico de las flores de Cordia lutea Lam. (Boraginaceae) y su capacidad antioxidante. Arnaldoa, 26(1): 359-368, 2019.