La Cordia lutea è un arbusto molto ramificato o un piccolo albero della famiglia delle Boraginaceae, riconoscibile da lontano per i fiori gialli a forma di tromba che ricoprono la chioma per buona parte dell’anno. La specie occupa le terre basse aride del versante occidentale del Sud America, dalla Colombia al Perù, e raggiunge anche l’arcipelago delle Galápagos, dove figura tra le piante native più comuni della fascia arida costiera. Nelle foreste secche del nord-ovest peruviano rappresenta un elemento strutturale del paesaggio e divide lo strato arbustivo con algarrobo e zapote.
Il nome popolare cambia da regione a regione. Muyuyo è la forma corrente in Ecuador e alle Galápagos, mentre nel nord del Perù circolano overo e flor de overo. L’orticoltura di lingua inglese ha adottato l’etichetta yellow geiger, in deliberato contrasto con l’orange geiger riferito a Cordia sebestena. In italiano non esiste alcun nome volgare consolidato, il che rende il binomio il riferimento più sicuro per chi cerca la specie in vivaio o in erbario.
Ciò che rende notevole la Cordia lutea va ben oltre il richiamo ornamentale. È una delle poche Boraginaceae neotropicali con un sistema riproduttivo eterostile ben documentato, sostiene una rete di impollinatori diurni e notturni su isole oceaniche povere di insetti e produce frutti con polpa tanto mucillaginosa che le comunità andine e costiere la impiegarono come colla. Questo profilo raccoglie la tassonomia formale, la morfologia diagnostica, l’ecologia delle zone aride, la fitochimica descrittiva e la documentazione storica degli usi, senza alcuna indicazione di impiego attuale.
Tassonomia
La Cordia lutea appartiene alle Boraginaceae nella circoscrizione ampia adottata dall’APG IV, all’interno della sottofamiglia Cordioideae. Una parte della letteratura tratta le Cordiaceae come famiglia autonoma, sistemazione che non altera la posizione relativa della specie. Il genere Cordia riunisce alcune centinaia di specie pantropicali, con la massima diversità nel Neotropico.
- Regno: Plantae
- Divisione: Tracheophyta (angiosperme)
- Classe: Magnoliopsida
- Ordine: Boraginales
- Famiglia: Boraginaceae Juss.
- Sottofamiglia: Cordioideae
- Genere: Cordia L.
- Specie: Cordia lutea Lam., 1791
Il protologo comparve nel primo volume del Tableau encyclopédique et méthodique des trois règnes de la nature, Botanique, di Jean-Baptiste de Lamarck, a pagina 421, nel 1791. La registrazione compare nell’International Plant Names Index con l’identificativo 274993-2, e Plants of the World Online mantiene il binomio come nome accettato, senza proposte di ricombinazione in vigore.
La sinonimia è lunga, riflesso dei successivi riassetti generici che le Boraginales hanno attraversato nel corso dell’Ottocento e del Novecento. Plants of the World Online riconosce circa una dozzina di nomi subordinati, tra cui:
- Calyptracordia rotundifolia (Ruiz & Pav.) Friesen
- Coilanthera rotundifolia (Ruiz & Pav.) Raf.
- Cordia flava (Andersson) Gürke
- Cordia marchionica Drake
- Cordia rotundifolia Ruiz & Pav.
- Ectemis lutea (Lam.) Raf.
- Firensia lutea (Lam.) Raf.
- Gerascanthus luteus (Lam.) Borhidi
- Gerascanthus rotundifolius (Ruiz & Pav.) Friesen
- Lithocardium flavum (Andersson) Kuntze
- Lithocardium rotundifolium (Ruiz & Pav.) Kuntze
- Varronia flava Andersson
- Varronia rotundifolia (Ruiz & Pav.) A. DC.
Vale la pena segnalare una cautela di nomenclatura: in fonti non specialistiche circola la combinazione Varronia lutea attribuita a Borhidi, che non corrisponde ad alcun nome validamente pubblicato per questa pianta. La ricombinazione di Borhidi realmente esistente è Gerascanthus luteus.
Quanto all’etimologia, il nome generico rende omaggio a Valerius Cordus (1515-1544), botanico e farmacista tedesco la cui opera sulla materia medica circolò in tutta l’Europa rinascimentale. L’epiteto deriva dal latino luteus, giallo, riferimento diretto alla colorazione della corolla, che è il carattere più evidente della specie sul campo.
Descrizione Morfologica
Si tratta di un arbusto fittamente ramificato o di un piccolo albero, alto tra 2 e 8 metri, con chioma aperta e portamento espanso. Il tronco supera di rado i 20 centimetri di diametro ed è spesso contorto, rivestito da corteccia grigia e finemente fessurata. Nelle stagioni più secche la pianta perde parte o la totalità delle foglie, un comportamento caducifoglio che varia con il regime delle piogge di ciascuna popolazione.
Foglie
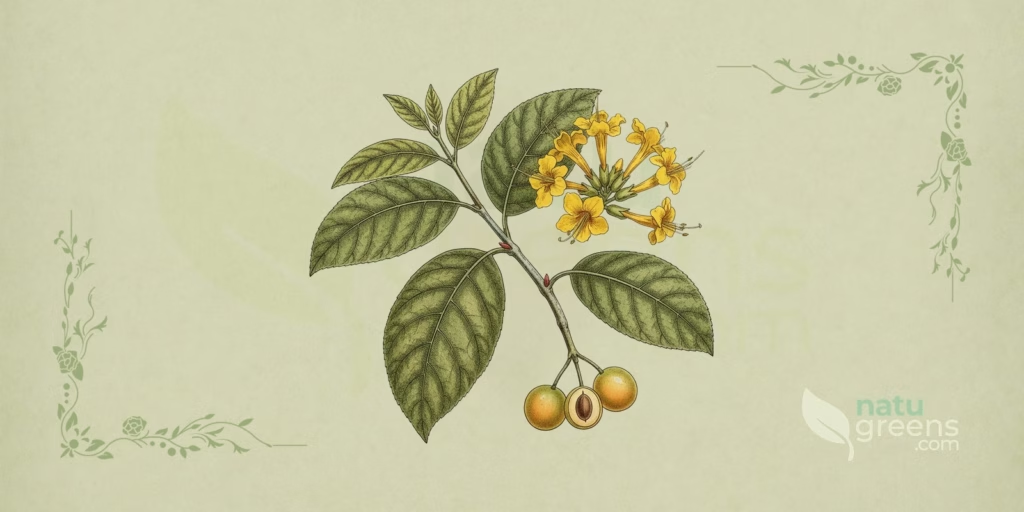
Le foglie sono alterne, semplici e prive di stipole, lunghe da 4 a 10 centimetri. Il contorno va da ovato a suborbicolare, con apice arrotondato oppure ottuso e margine finemente dentato o crenato. La pagina superiore è ruvida al tatto e quasi glabra, mentre quella inferiore porta peli distribuiti sulla nervatura principale e sul lembo. Il picciolo è corto, il che conferisce al ramo fogliato un aspetto compatto quando lo si osserva dall’alto.
Fiori
I fiori nascono in cime terminali e concentrano tutto il valore diagnostico della specie. Il calice è cilindrico, lungo circa 10 millimetri e largo da 5 a 7 millimetri, striato longitudinalmente e persistente. La corolla è gamopetala, di un giallo vivo e a forma di tromba, con diametro alla fauce da 2 a 4 centimetri e cinque-otto lobi espansi. Anche gli stami variano da cinque a otto e restano inseriti nel tubo. Il profumo è dolciastro e percepibile a breve distanza.
La specie è eterostile, con due morfi florali distribuiti su individui diversi. Uno presenta stilo lungo e antere basse, l’altro combina stilo corto e antere alte. L’architettura reciproca favorisce il trasferimento di polline tra morfi complementari, e gli esperimenti di impollinazione mostrano una fruttificazione decisamente maggiore negli incroci legittimi.
Frutti e Semi
Il frutto è una drupa globosa di 8-12 millimetri di diametro, bianca e traslucida a maturità, appoggiata alla base sul calice persistente che rimane verde e striato. La polpa è abbondantemente mucillaginosa e aderisce con facilità alle superfici, caratteristica dalle conseguenze ecologiche dirette. Il sapore comincia piacevolmente dolce e vira all’amaro in pochi secondi. Ogni frutto ospita da uno a quattro semi protetti da un endocarpo duro.
Radice e Fusto
I fusti sono lunghi, sottili ed eretti, con rami giovani pubescenti che perdono i peli al lignificare. La corteccia grigia si stacca in placche sottili negli esemplari più vecchi. La pianta ricaccia con facilità dalla base e radica da talee legnose, attributo sfruttato da tempo nella formazione di siepi vive nelle zone secche di Ecuador e Perù.
Distribuzione e Habitat della Cordia
L’areale nativo copre il versante occidentale del Sud America e comprende Colombia, Ecuador continentale, Ecuador insulare nell’arcipelago delle Galápagos e Perù. In territorio peruviano la specie accompagna la fascia costiera del Pacifico e le valli interandine aride, ed entra nella composizione delle foreste secche di Tumbes, Piura e Lambayeque. Alle Galápagos è considerata nativa e occupa la zona arida delle terre basse, con forte presenza nelle vicinanze della linea di costa.
Fuori dall’areale naturale, la Cordia lutea è stata introdotta alle Hawaii e alle isole Marchesi. Sull’isola di Hawaii risulta naturalizzata, e la valutazione del rischio di invasività applicata nell’arcipelago le ha attribuito un punteggio basso, senza evidenze di impatto negativo documentato fuori dalla distribuzione originaria fino a oggi. Il risultato contrasta con il comportamento di altre specie del genere sulle isole del Pacifico, il che rafforza la necessità di un monitoraggio continuo.
Il bioma caratteristico è il tropicale stagionalmente secco. Le popolazioni si distribuiscono dal livello del mare fino a circa 1.500 metri, con segnalazioni puntuali a quote superiori nelle valli interandine. La pianta prospera con piovosità scarsa e sopporta lunghi periodi senza pioggia, comportandosi da xerofita facoltativa che risponde rapidamente agli impulsi di precipitazione. Quanto al substrato, cresce su suoli sabbiosi, sulle argille espansive di antichi letti umidi e su terreni a salinità elevata, tolleranza poco comune tra gli alberi ornamentali dalla fioritura vistosa.
Coltivazione
La propagazione avviene per seme e per talea, e in Ecuador e in Perù entrambe le vie vengono impiegate nei vivai di restauro ambientale. I semi presentano una dormienza legata all’endocarpo duro e alla mucillagine che avvolge il frutto, per cui la pulizia accurata della polpa è la prima fase di qualunque lotto. La scarificazione meccanica e il trattamento con acido gibberellico compaiono in letteratura come strumenti per uniformare la germinazione, e prove peruviane mostrano che anche il passaggio attraverso il tratto digerente dei disseminatori naturali modifica la risposta germinativa dei semi.
La talea è la via più diretta per la produzione su scala. Prove condotte nella provincia di Santa Elena, sul litorale ecuadoriano, indicano un attecchimento soddisfacente perfino senza applicazione di ormone radicante, con risultati che sostengono l’uso della specie in impianti foraggeri e in siepi vive. Il materiale legnoso risponde bene e la densità di ricaccio è in genere elevata.
In campo la pianta richiede pieno sole e suolo ben drenato. Tollera la siccità prolungata, la salinità e i suoli poveri, ma non sopporta la gelata, il che limita la coltivazione alle regioni tropicali e subtropicali prive di rischio di temperature sotto zero. Dopo l’attecchimento bastano irrigazioni diradate, e l’eccesso di umidità nel substrato resta l’errore più frequente in vivaio.
Le segnalazioni di parassiti specifici sono scarse. Alle Hawaii la specie è stata identificata come ospite alternativo della cocciniglia lobata, circostanza che ha richiamato l’attenzione fitosanitaria sugli impianti ornamentali dell’arcipelago. Le cocciniglie in generale compaiono sui rami quando la ventilazione è insufficiente. La raccolta dei frutti si effettua quando la drupa raggiunge la colorazione bianca traslucida e la polpa si ammorbidisce, momento in cui i semi sono già maturi e l’estrazione risulta più semplice.
Fenologia
Il ciclo annuale è stato seguito in dettaglio nella Riserva Ecologica Privata di Chaparrí, a Chongoyape, nel dipartimento di Lambayeque, tra il luglio 2004 e il giugno 2005. Lo sviluppo vegetativo si osserva lungo tutto l’anno e raggiunge il picco tra febbraio e aprile, con valori prossimi al 60 per cento. L’emissione di germogli si concentra tra gennaio e giugno, con un massimo intorno al 20 per cento in gennaio e febbraio. La fioritura predomina da dicembre a giugno, anch’essa attorno al 20 per cento in media, mentre la fruttificazione si distribuisce sull’intero anno e tocca il massimo del 14 per cento in agosto, con frutti verdi e maturi sulla stessa pianta. La temperatura ha mostrato correlazione con tutte e tre le fasi.
L’impollinazione combina agenti diurni e notturni. Le api carpentiere sono le visitatrici diurne più efficaci, e alle Galápagos quel ruolo spetta a Xylocopa darwini, unica ape nativa dell’arcipelago e generalista estrema nelle reti locali di impollinazione. Di notte entrano in scena le falene, che si sono rivelate più efficienti nel trasporto di polline tra piante distinte. Il sistema riproduttivo è misto, con una produzione di frutti relativamente bassa che deriva dalla combinazione tra autoimpollinazione e impollinazione incrociata in un ambiente con pochi insetti disponibili.
La disseminazione è prevalentemente zoocora. Uccelli e lucertole di lava consumano i frutti alle Galápagos, e la polpa appiccicosa aderisce al corpo di animali di grande taglia, tartarughe giganti e uccelli marini compresi, il che apre una via di trasporto epizoocora aggiuntiva. Nel nord del Perù la volpe di Sechura, Lycalopex sechurae, ingerisce i frutti e figura tra i disseminatori documentati della specie nella foresta secca.
Specie Affini e Confusioni
All’interno del genere, la colorazione della corolla e l’aspetto del frutto risolvono la maggior parte dei dubbi. Tre parenti concentrano gli equivoci più comuni nelle collezioni e nel verde ornamentale:
- Cordia sebestena L.: corolla arancio rossastra e non gialla, foglie più grandi e più coriacee. È la specie che risponde al nome orticolo orange geiger e cresce naturalmente nei Caraibi.
- Cordia sinensis Lam.: fiori piccoli e di un giallo crema, con frutti che maturano in toni dall’arancio al rosso, contro il bianco traslucido della Cordia lutea. La distribuzione è afroasiatica, con un ruolo ecologico analogo nelle zone aride.
- Cordia subcordata Lam.: corolla arancione, foglie cordate di dimensioni maggiori e frutto legnoso con endocarpo galleggiante adattato alla disseminazione marina. Cresce nelle isole del Pacifico e dell’Oceano Indiano, dove può convivere con popolazioni introdotte di Cordia lutea.
Fuori dalle Boraginaceae, la confusione più frequente riguarda Tecoma stans (L.) Juss. ex Kunth, della famiglia Bignoniaceae, che da lontano mostra fiori gialli tubolari di aspetto simile. La distinzione è immediata dalle foglie, composte imparipennate in Tecoma stans e semplici in Cordia lutea, e dal frutto, una capsula lineare allungata che nulla ha a che vedere con la drupa bianca della Boraginacea.
Un avvertimento di identificazione merita di essere annotato. Le Boraginaceae riuniscono generi che accumulano alcaloidi pirrolizidinici epatotossici, tra cui Echium, Heliotropium e Symphytum. Il materiale vegetativo sterile di Boraginaceae è difficile da determinare con sicurezza, e le raccolte prive di fiore o frutto non consentono di separare con affidabilità la Cordia lutea da quei generi vicini.
Fitochimica
Il profilo chimico meglio caratterizzato è quello dei fiori. Una valutazione fitochimica preliminare condotta su materiale proveniente da Otuzco, in Perù, ha identificato composti fenolici, leucoantocianidine e flavonoidi come classi predominanti negli estratti metanolico ed etanolico ottenuti per riflusso. La quantificazione mediante cromatografia liquida ad alta prestazione ha registrato 60,63 milligrammi di rutina e 0,558 milligrammi di quercetina per grammo di campione secco, il che colloca la rutina come flavonoide maggioritario con ampio margine.
Un’indagine precedente sulla composizione chimica, citata nello stesso lavoro, ha trovato frazioni di rutina e quercetina dello stesso ordine di grandezza percentuale e ha registrato acidi grassi tra i costituenti, con acido linoleico, acido palmitico ed esadecanoato di glicerile in tenori prossimi allo 0,1 per cento. L’analisi in gascromatografia accoppiata a spettrometria di massa dell’estratto etanolico florale ha inoltre rilevato esteri butilici di acidi grassi a catena lunga e acido gibberellico.
La stessa indagine non ha rilevato alcaloidi pirrolizidinici nei fiori analizzati. Il dato merita attenzione perché questo gruppo di metaboliti è frequente nelle Boraginaceae, e l’assenza in un campione non si estende automaticamente ad altre popolazioni, ad altri organi della pianta o ad altre fasi fenologiche.
Nei frutti il componente dominante è la mucillagine, un complesso polisaccaridico responsabile della consistenza viscosa e adesiva della polpa. È questa frazione a conferire al frutto maturo la capacità di aderire alle superfici e ad avere sostenuto lo sfruttamento storico descritto più avanti. Corteccia e foglie concentrano composti fenolici, senza che per esse esista una caratterizzazione quantitativa altrettanto dettagliata di quella disponibile per i fiori.
Storia ed Etnobotanica
Lamarck descrisse formalmente la specie nel 1791 a partire da materiale sudamericano, in un’epoca in cui le collezioni peruviane di Ruiz e Pavón alimentavano gli erbari europei. Non a caso il nome Cordia rotundifolia, pubblicato da quei due botanici spagnoli, finì ridotto a sinonimo del binomio di Lamarck.
Gli usi più caratteristici della pianta non hanno nulla di medicinale. La mucillagine del frutto fu impiegata come colla per carta e come fissante per capelli da comunità ecuadoriane, applicazione tornata allo studio negli anni recenti come materia prima cosmetica presso l’Universidad Politécnica Salesiana. Il legno servì nella costruzione di barche, canoe e strutture semplici negli abitati costieri. Sul litorale dell’Ecuador la specie fu inserita in sistemi foraggeri, sfruttando la densità di fogliame che raggiunge, e in tutta l’area di distribuzione gli agricoltori la piantarono come siepe viva e la tagliarono per legna da ardere. Il frutto maturo fu consumato crudo come frutto selvatico, benché l’amaro tardivo ne limitasse l’appetibilità.
Le indagini etnobotaniche svolte in Perù tra gli anni novanta e i primi anni duemila, tra cui lo studio condotto nella provincia di Canta, a Lima, registrarono la Cordia lutea tra le piante presenti nel repertorio domestico delle comunità andine e costiere. Quegli inventari documentano la memoria culturale legata alla specie e non costituiscono raccomandazione di alcun genere. Alle Galápagos la pianta compare negli elenchi storici dei vegetali utili dei primi insediamenti dell’arcipelago, soprattutto per il frutto e per il legno.
Conservazione
La Cordia lutea è stata valutata nella Lista Rossa IUCN e classificata come a Minor Preoccupazione, nella valutazione del 2019 condotta nell’ambito del Global Tree Specialist Group. La motivazione poggia sulla distribuzione ampia, sulla popolazione numerosa e sull’assenza di minacce rilevanti individuate per la specie nell’insieme del suo areale. Non compare in nessuna delle appendici CITES.
La lettura rassicurante dello status individuale non deve nascondere la fragilità dell’ambiente in cui la pianta vive. Le foreste secche del nord-ovest peruviano e le boscaglie secche costiere dell’Ecuador sono tra gli ecosistemi più frammentati del Sud America, sotto la pressione dell’espansione agricola e zootecnica, del prelievo di legna da ardere e del pascolo caprino. La specie è impiegata di frequente in programmi di recupero di aree degradate nelle zone aride dei due paesi, proprio per la facilità di propagazione e per la tolleranza ai suoli difficili.
Esiste inoltre una dimensione indiretta di conservazione. A Chaparrí la Cordia lutea rientra nell’insieme di specie che forniscono alimento alla penelope alibianche, Penelope albipennis, uccello endemico del nord del Perù e uno dei più minacciati del continente. Gli studi di fenologia di quella dieta sono stati progettati proprio per capire la disponibilità stagionale di risorse per l’uccello, il che assegna alla pianta un ruolo funzionale che oltrepassa la sua stessa categoria di rischio.
Curiosità
- La specie è distilica: esistono individui con stilo lungo e antere basse e individui con la disposizione inversa, e la fruttificazione è abbondante solo quando il polline viaggia tra i due tipi complementari.
- Le falene notturne superano le api nel trasporto di polline tra piante distinte, risultato controintuitivo per un fiore giallo, vistoso e profumato di giorno.
- La polpa del frutto è adesiva al punto di avere servito da colla per carta e da fissante per capelli, e continua a essere studiata come materia prima cosmetica.
- Alle Galápagos le foglie sono minate dalla falena Bucculatrix cordiaella, il cui epiteto specifico rimanda direttamente alla pianta ospite.
- Nel commercio delle piante ornamentali di lingua inglese la specie è lo yellow geiger e fa coppia con l’orange geiger, nome dato a Cordia sebestena.
Avviso: questo contenuto è informativo e non sostituisce il parere di un professionista sanitario. Consultare un medico o un fitoterapeuta prima di usare piante medicinali, soprattutto in gravidanza, durante l’allattamento o in caso di assunzione di farmaci.
Riferimenti e Studi Scientifici
Vedi Tutti i 10 Riferimenti Citati
- Charles Darwin Foundation. Galapagos Species Checklist: Cordia lutea Lam. Fondazione Charles Darwin, Puerto Ayora, Ecuador.
- 2007 De la Cruz, H.; Vilcapoma, G.; Zevallos, P. A. Ethnobotanical study of medicinal plants used by the Andean people of Canta, Lima, Peru. Journal of Ethnopharmacology, 111(2), 2007.
- International Plant Names Index. Cordia lutea Lam., Tabl. Encycl. 1: 421 (1791), ID 274993-2. Royal Botanic Gardens Kew, Harvard University Herbaria e Australian National Botanic Gardens.
- 2019 IUCN. The IUCN Red List of Threatened Species: Cordia lutea. Valutazione del 2019, Global Tree Specialist Group.
- Lamarck, J.-B. Tableau encyclopédique et méthodique des trois règnes de la nature. Botanique, vol. 1, p. 421. Parigi, 1791.
- 2008 Martos, J. R.; Scarpati, M.; Rojas, C.; Delgado, G. E. Fenología de algunas especies que son alimento para la pava aliblanca Penelope albipennis. Revista Peruana de Biología, 15(2), 2008.
- 1999 McMullen, C. K. Flowering Plants of the Galápagos. Cornell University Press, Ithaca, 1999.
- 2011 McMullen, C. K. Pollination of the heterostylous Galápagos native Cordia lutea (Boraginaceae). Plant Systematics and Evolution, 2011.
- Plants of the World Online. Cordia lutea Lam. Royal Botanic Gardens Kew, Londra.
- 2019 Venegas Casanova, E. A.; Gómez Alva, A. M.; Chávez León, A. N.; Valdiviezo Campos, J. E.; Ormeño Llanos, M.; Vásquez Corales, E. Evaluación fitoquímica preliminar del extracto metanólico y etanólico de las flores de Cordia lutea Lam. (Boraginaceae) y su capacidad antioxidante. Arnaldoa, 26(1): 359-368, 2019.