Zea mays indtager en enestående position blandt kulturplanter, fordi intet andet græs er blevet så dybt omformet af menneskelig selektion, at det mistede evnen til at formere sig på egen hånd. Der er tale om en oprejst, énårig urteagtig plante af stor størrelse, énbo, tilhørende familien Poaceae og hjemmehørende i Mesoamerika, hvis kolbe, omsluttet af dækblade, er fuldstændig afhængig af nogen, der tærsker og sår den igen, for at arten kan fortsætte med at eksistere.
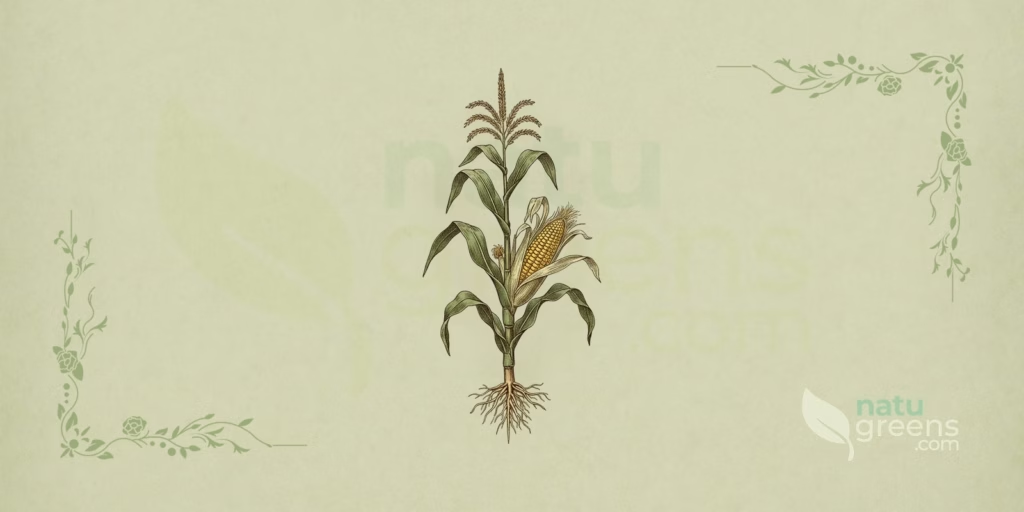
Familien Poaceae omfatter omkring 780 slægter og over elleve tusind arter, heriblandt ris, sukkerrør og hvede. Inden for denne enorme mangfoldighed skiller majs sig ud ved en reproduktiv arkitektur uden sidestykke: hanblomsterne sidder øverst på stænglen, samlet i en åben top, som landmændene kalder majstoppen, mens hunblomsterne koncentreres i sidestillede kolber beskyttet af lag af avnerblade. De lange, silkeagtige arvenskår, der stikker frem fra kolbens spids, fuldender et sæt kendetegn, der gør identifikationen umiddelbar, selv for den, der aldrig har åbnet en botanisk bestemmelsesnøgle.
Følgende profil handler om planten i sig selv. Den samler den taksonomiske placering, som bekræftet i internationale databaser, morfologien der adskiller den fra lignende græsser, den fænologiske adfærd på marken, den kemiske sammensætning beskrevet i litteraturen og den lange domesticeringshistorie, der forvandlede et mexicansk græs med små aks til den landbrugsafgrøde med størst volumen på planeten.
Taksonomi for Zea mays
Det accepterede navn er Zea mays L., udgivet af Carl von Linné i Species Plantarum (bind 2, side 971), i 1753. Opslag i International Plant Names Index bekræfter binomiet, forfatterskabet og referencen til den oprindelige udgivelse, og Plants of the World Online bevarer samme navn som accepteret, uden nogen igangværende forslag om omplacering. Den fulde hierarkiske klassifikation er opsummeret nedenfor.
- Rige: Plantae
- Række: Magnoliophyta (dækfrøede planter)
- Klasse: Liliopsida (enkimbladede)
- Orden: Poales
- Familie: Poaceae Barnhart
- Underfamilie: Panicoideae
- Tribus: Andropogoneae
- Slægt: Zea L., 1753
- Art: Zea mays L., 1753
Accepterede synonymer
Artens synonymi er kort, hvilket var forventeligt for en plante, der blev beskrevet tidligt og altid genkendt under samme navn. Plants of the World Online registrerer fem heterotypiske og homotypiske synonymer.
- Mays americana Baumg.
- Mays zea Gaertn.
- Mayzea cerealis Raf.
- Thalysia mays (L.) Kuntze
- Zea segetalis Salisb.
Accepterede underarter
Tre underarter anerkendes for nuværende, og kun én af dem svarer til dyrket majs. De to andre er teosinter, vilde mexicanske græsser med hårdnede småaks, der længe blev behandlet som planter af en anden slægt.
- Zea mays subsp. huehuetenangensis (Iltis & Doebley) Doebley, fra det nordvestlige Guatemala
- Zea mays subsp. mays, den dyrkede majs
- Zea mays subsp. parviglumis Iltis & Doebley, fra Balsas-flodens dal i Mexico
Det er værd at nævne en aktiv afgrænsningsuenighed: teosinten fra det centrale mexicanske højland optræder i store dele af den agronomiske litteratur som Zea mays subsp. mexicana, men Plants of the World Online ophøjer den til egen art, Zea mexicana (Schrad.) Kuntze. Den, der konsulterer kilder fra forskellige perioder, vil finde begge stavemåder, og ingen af dem er forkert inden for det system, der anvender den.
Etymologi
Slægtsnavnet Zea stammer fra det græske zeiá, en betegnelse for et kornslag dyrket i middelhavsoldtiden, formentlig en art nøgen hvede. Linné genbrugte ordet til den amerikanske plante, en gestus almindelig i 1700-tallets botanik, der greb til klassisk ordforråd for at navngive arter, som de græske forfattere aldrig havde set. Artsepitetet mays har en helt anden oprindelse: det stammer fra mahiz, navnet som Caribiens taino-folk gav planten, overført til castiliansk som maíz og derfra til de øvrige europæiske sprog.
Endospermgrupper
Inden for den dyrkede underart understøtter variationen i endospermen en havebrugsnomenklatur parallelt med den formelle taksonomi. Grupperne er praktiske kategorier, ikke accepterede taksoner, og forbliver i brug i forædling og frøhandel.
- Melet majs: melet og blødt endosperm, traditionel i andinske sorter
- Voksmajs: stivelse sammensat næsten udelukkende af amylopektin, grundlag for industriel stivelse
- Tandmajs: karakteristisk fordybning på kernens top, dominerende i den kommercielle produktion
- Sukkermajs: mutationer der blokerer omdannelsen af sukker til stivelse, spises endnu grøn
- Hård majs (flint): glasagtigt og hårdt endosperm, fremherskende i Brasilien og Argentina
- Popcorn: lille, glasagtig kerne med en indre fugtighed, der forårsager ekspansion ved varme
- Klædt majs (pod corn): hver kerne omsluttet af egne avner, primitiv form uden kommerciel dyrkning
Morfologisk beskrivelse
Majs er en oprejst, énårig urteagtig plante, der når 1,5 til 4 meter i højden, med tropiske langcyklussorter der overstiger 5 meter. Den robuste vækstform hviler på en cylindrisk, massiv stængel, fyldt med marvparenkym, hvilket modsiger det gængse billede af en hul stængel, der forbindes med græsser generelt. Planten er énbo og udviser enkønnede blomster adskilt i særskilte blomsterstande, en tilstand der adskiller den fra langt de fleste græsser.
Blade
Bladene sidder skruestillet og tostillet, det vil sige fordelt i to modstående planer langs stænglen, hvilket giver den unge plante en flad silhuet set oppefra. Hvert blad måler 50 til 120 centimeter i længden og 5 til 12 centimeter i bredden, med en lancetformet bladplade, en langt tilspidset spids og en hel til let bølget rand. Nervaturen er parallel, med en hvidlig, fremtrædende midtnerve, der tjener som feltkendetegn. Bladskeden omslutter stænglen helt, med overlappende rande, og sliden er tynd og kort, 2 til 5 millimeter. En voksen plante bærer 12 til 22 blade, et antal der varierer efter sort og cyklusens varighed.
Blomster
Den rumlige adskillelse af kønnene er artens mest markante træk. Toppen er en endestillet top med 10 til 25 sidegrene, dannet af småaks der bærer to hanblomster med tre støvknapper hver, og en enkelt plante frigiver snesevis af millioner pollenkorn i løbet af blomstringsperioden. Kolben er til gengæld en aksilstillet blomsterstand indsat i stænglens midterste tredjedel, omsluttet af bladagtige dækblade og bærende mellem 200 og 1.000 hunblomster ordnet i konsekvent lige rækker, som regel 8 til 24. Arvenskårene danner de 10 til 30 centimeter lange tråde, folkeligt kendt som majssilke, og hver af dem tilhører en individuel blomst, sådan at manglende opsamling af pollen af en enkelt tråd resulterer i en kerne, der ikke dannes.
Frugter og frø
Frugten er en kariopse, en type karakteristisk for Poaceae, hvor frugtvæggen vokser sammen med frøskallen, og det hele opfører sig som en ikke-opsprækkende enhed. Kernerne måler 5 til 15 millimeter og ordner sig i lige rækker på kolbestokken, den forveddede centrale akse der bærer kolben. Farven strækker sig over et bemærkelsesværdigt spektrum, fra hvid og gul til orange, rød, lilla, blå og næsten sort, afhængigt af pigmenteringen i frugtvæggen og aleuronlaget. Vægten af tusind kerner ligger typisk mellem 250 og 400 gram i tand- og flinttyperne, og en gennemsnitlig kommerciel kolbe leverer 400 til 600 kerner.
Rod og stængel
Rodsystemet er trævlet og organiserer sig i tre på hinanden følgende funktionelle grupper. Kimrødderne er de første, af embryonal oprindelse, og opretholder kimplanten indtil omkring det sjette bladstadium, hvor de mister betydning. Knuderødderne spirer fra de underjordiske knuder fra det tredje bladstadium, spreder sig sideværts op til 1 meter og går ned omkring 1,5 meter, og står for stort set hele det voksne rodsystem. Endelig opstår støtterødderne, kaldet luftrødder, fra de blotlagte nederste knuder og forankrer planten i jorden, en funktion der langt fra er triviel for en afgrøde, der skal holde flere meter biomasse oprejst under vind og regn. Stænglen har tydeligt markerede knuder og internodier, der forlænges ujævnt, kortere ved basis og gradvist længere mod toppen.
Udbredelse og levested
Artens oprindelse er begrænset til Balsas-flodens bassin, i den nuværende mexicanske delstat Guerrero, en region med sæsonbestemt tørt klima, hvor den forfædrende teosinte stadig forekommer i naturlige populationer. Den dyrkede underart har imidlertid intet naturligt udbredelsesområde i ordets sædvanlige betydning, fordi den er en kultigen: den findes kun, hvor den er plantet. Fra Mesoamerika bredte planten sig ud over hele det amerikanske kontinent før europæernes ankomst og nåede efter 1493 Europa, Afrika og Asien i løbet af få årtier.
I dag dyrkes majs fra havoverfladen til omkring 3.800 meters højde i Andesbjergene, med sorter tilpasset hvert højdebælte. Arten kræver fuld sol, reagerer godt på temperaturer mellem 25 og 30 grader Celsius under den vegetative vækst og har brug for mindst 10 grader i jorden for at spire. Den tåler ikke frost på noget stadium af cyklussen. De foretrukne jorde er dybe, frugtbare og veldrænede, med god vandholdende evne og pH mellem 5,5 og 7,0, og kvælstofbehovet er blandt de højeste for alle etårige afgrøder. Den nødvendige nedbør i løbet af cyklussen, der varer 90 til 150 dage, ligger omkring 500 til 800 millimeter, koncentreret især i den kritiske periode fra to uger før til to uger efter blomstringen.
Et punkt der ofte overses i udbredelsesbeskrivelser: majs forvildes stort set ikke. Frivillige planter dukker op ved markens kant og på ubebyggede grunde, men populationerne holder ikke gennem generationer, fordi kolben lukket i avnerblade forhindrer kernerne i at løsne sig og sprede sig. Hvor der findes majs uden for dyrkning, er der næsten altid en tilsået mark i nærheden, og tilstedeværelsen er forbigående.
Dyrkning
Formeringen sker udelukkende ved frø, uden nogen praktisk anvendelig vegetativ vej. Såning foregår i 3 til 5 centimeters dybde, med tætheder fra 55.000 til 80.000 planter pr. hektar i kornproduktion og fra 60.000 til 70.000 i den bestemt til ensilage, og rækkeafstanden ligger typisk mellem 0,45 og 0,90 meter. Spiring tager 5 til 10 dage i jord ved 25 grader Celsius.
Afgrøden er næsten aggressivt krævende med hensyn til næringsstoffer. Kvælstof er den mest afgørende faktor, og markanbefalingerne varierer fra 150 til 250 kilo pr. hektar, fordelt mellem grundgødskningen ved såning og to overgødskninger, én mellem det fjerde og sjette bladstadium og en anden mellem det ottende og tiende. Fosfor og kalium fuldender programmet i betydeligt mindre mængder. I områder med vandmangel bliver kunstvanding uundværlig, og i det centrale Brasilien er den centrale pivotvanding det dominerende system. Rotationen med soja har struktureret hele Cerradoens landbrugskalender, hvor andenafgrødens majs indtager arealet lige efter bælgplantens høst.
Blandt skadedyrene har efterårsugle-larven (Spodoptera frugiperda) størst økonomisk vægt i Amerika og angriber først hjertebladene og derefter kolben. Majscikaden (Dalbulus maidis) har for nylig fået en fremtrædende rolle i Brasilien ved at overføre de mollicutes, der forårsager gulsotssygdomme, og kolbeuglen (Helicoverpa zea) skader kernerne i spidsen. Blandt svampesygdommene fremhæves den grå bladplet (Cercospora zeae-maydis), polysora-rust (Puccinia polysora) og turcicum-bladplet (Exserohilum turcicum), alle bladsygdomme og alle i stand til at skade kernefyldningen, når de skrider frem før modningen.
Kornhøsten finder sted, når fugtigheden falder til intervallet 18 til 23 procent, et tidspunkt der falder sammen med dannelsen af det sorte lag ved kernens basis, et synligt tegn på, at den fysiologiske modning er fuldført, og at planten har afsluttet translokationen af fotosyntheseprodukter til frøet.
Fænologi
Blomstringen sker mellem 50 og 100 dage efter såning, med stor variation afhængigt af sortens cyklus og regionens varmesum. Arten udviser udpræget protandri, det vil sige at toppen frigiver pollen, før samme plantes arvenskår er modtagelige, og denne forskydning på nogle dage skubber forplantningssystemet mod krydsbestøvning. Bestøvningen er vindbåren, og pollenet er, selvom det er rigeligt, tungt og tilbagelægger korte afstande, hvilket gør hver mark til en rimeligt lukket reproduktiv population.
Efter befrugtningen tager kernefyldningen 45 til 65 dage og gennemgår de successive stadier mælkemoden, dejmoden og melmoden frem til fysiologisk modenhed. Den naturlige spredning findes derimod simpelthen ikke. Avnerbladene, der beskytter kolben mod fugle og insekter, fanger også kernerne på kolbestokken, og uden menneskelig indgriben rådner hele kolben på stedet, hvor den faldt. Denne gensidige afhængighed mellem plante og landmand er resultatet af årtusinders selektion og artens mest radikale biologiske træk.
Beslægtede arter og forvekslinger
Slægten Zea rummer, ud over majs, en gruppe vilde mesoamerikanske græsser samlet kendt som teosinter. De vigtigste er Zea diploperennis Iltis, Doebley & R.Guzmán, diploid flerårig teosinte fra Jalisco, først beskrevet i 1979, Zea luxurians (Durieu & Asch.) R.M.Bird, énårig fra Guatemala og Honduras, Zea nicaraguensis Iltis & B.F.Benz, begrænset til Nicaraguas kystslette og oversvømmelsestolerant, og Zea perennis (Hitchc.) Reeves & Mangelsd., tetraploid flerårig teosinte ligeledes fra Jalisco. Alle skelnes let fra majs på den hunlige blomsterstand, som hos teosinterne er et skørt aks med få hårdnede småaks, uden omsluttende avner og uden kødfuld kolbestok.
I marken opstår den reelle forveksling i ungdomsstadiet, når majsen endnu ikke har dannet top eller kolbe, og andre store græsser ligner den. Tre tilfælde fortjener opmærksomhed.
- Sukkerrør (Saccharum officinarum): flerårig, med stængler fyldt med saccharoserigt væv, smallere blade og uden majsens brede, hvide midtnerve. Danner aldrig en sidestillet kolbe.
- Johnsongræs (Sorghum halepense): flerårigt rodstokgræs med blade der ligner ung majs. Denne arts blade og genvækst indeholder cyanogene glykosider, og indtagelse af kvæg og heste, især genvækst efter tørke eller frost, forårsager cyanidforgiftning. Den sikre skelnen sker på de tykke jordstængler, som majs mangler.
- Durra (Sorghum bicolor): lignende størrelse, men ender i en kompakt endestillet top og ikke en åben top, danner ingen aksilstillet kolbe og udviser ofte et hvidligt vokslag på blade og stængel.
Det absolutte diagnostiske kendetegn forbliver kombinationen af endestillet hanlig top med aksilstillet hunlig kolbe med lange arvenskår. Intet andet græs forener begge strukturer.
Fytokemi
Sammensætningen varierer betydeligt afhængigt af det analyserede organ. Den modne kerne domineres af stivelse, som udgør 60 til 72 procent af tørvægten og fordeler sig mellem amylose og amylopektin i et forhold på cirka én til tre i de konventionelle typer, et forhold der forskydes næsten helt mod amylopektin i voksmajs. Proteinfraktionen ligger mellem 6 og 12 procent, med zein som det dominerende reserveprotein, notorisk fattigt på aminosyrerne lysin og tryptofan. Olien, koncentreret i kimen, udgør 3 til 5 procent og er rig på linolsyre.
Pigmenterne følger kernens farve. Carotenoider som lutein og zeaxanthin ophobes i endospermen hos gul og orange majs, mens antocyaniner af typen cyanidin-3-glucosid og pelargonidin aflejres i frugtvæggen og aleuronlaget hos lilla, røde og blå sorter. I frugtvæggens cellevægge findes ferulinsyre bundet til arabinoxylaner i en koncentration, der er høj for et kornslag.
Arvenskårene ophober en særskilt profil, med flavonoider som apigenin, luteolin og maysin, samt polysaccharidslim, høj kaliumkoncentration, lavt indhold af saponiner og tanniner i intervallet 1 til 3 procent af det tørre materiale. Kimplanterne syntetiserer til gengæld benzoxazinoider, heriblandt DIMBOA, forbindelser der i den kemiske økologis litteratur forbindes med plantens forsvar mod planteædende insekter, og hvis koncentration falder, efterhånden som vævet ældes.
To sammensætningsfakta har direkte praktisk betydning og fortjener at blive nævnt eksplicit. Det første er, at niacin i kernen for det meste forekommer i bundet form, som niacytin, hvilket kogning i vand ikke frigør. Det andet er, at kerner opbevaret med høj fugtighed eller under mangelfuld ventilation koloniseres af svampe af slægterne Aspergillus og Fusarium, som producerer mykotoksiner som aflatoksiner og fumonisiner. Disse toksiner modstår varmen fra almindelig forarbejdning, og forureningen kan ikke mærkes på smag eller lugt, hvorfor fugtighedskontrol under opbevaring er genstand for sundhedslovgivning i praktisk talt alle producerende lande.
Historie og etnobotanik
De ældste beviser for domesticeret majs kommer fra arkæologiske lokaliteter i Balsas-flodens dal og er dateret til omkring 8.700 år før nutiden, ud fra stivelseskorn og fytolitter genfundet på maleredskaber. Den vilde forfader er teosinten Zea mays subsp. parviglumis, en plante hvis aks bærer fem til tolv kerner beklædt med hårde avner. Den morfologiske afstand mellem dette græs og den moderne kolbe er enorm, men populationsgenetiske undersøgelser har vist, at forvandlingen indebar mutationer i en lille håndfuld regulatoriske gener, med teosinte branched1 som det mest fremtrædende, der undertrykte den sideværts forgrening og koncentrerede plantens energi i få store kolber, og teosinte glume architecture1, der reducerede den hårdnede avne og blotlagde kernen.
Blandt de mesoamerikanske folk var majs ikke blot mad. Popol Vuh, quiché-mayaernes hellige bog nedskrevet i 1500-tallet, fortæller, at den endelige menneskehed blev formet af majsdej, efter at tidligere forsøg med ler og træ mislykkedes, og fremstillinger af majsguddommen optræder i den klassiske maya-ikonografi gennem århundreder. Aztekerne organiserede kalenderritual og landbrugscyklus omkring den samme plante.
Set fra et teknisk synspunkt var det mest vidtrækkende mesoamerikanske bidrag nixtamaliseringen, en proces hvor kernerne blev kogt og lagt i blød i en alkalisk opløsning fremstillet af kalk eller bålaske, før de blev malet. Den alkaliske behandling løsnede frugtvæggen, ændrede dejens tekstur og frigjorde den hidtil utilgængelige niacin. De folkeslag, der tog teknikken i brug, opretholdt majsbaserede kostvaner i årtusinder uden at der blandt dem blev registreret de epidemier, som ville ramme Europa århundreder senere.
Denne historie fik en dyster modpol i Europa. Majsen nåede kontinentet efter Columbus’ rejse i 1493 og bredte sig hurtigt over Middelhavsområdet, Afrika og Asien i 1500- og 1600-tallet, men den alkaliske forarbejdning rejste ikke med sammen med frøet. Befolkninger i Norditalien, Sydfrankrig, Balkan og senere det sydlige USA begyndte at være afhængige af majs tilberedt kun ved formaling og kogning i vand, og mellem 1700- og 1900-tallet mødte de ødelæggende pellagra-epidemier, en mangelsygdom hvis ernæringsmæssige årsag først blev fastslået i 1930’erne gennem Joseph Goldbergers og hans efterfølgeres arbejde. Episoden er i dag et klassisk eksempel på, hvordan en madkultur kan overføres ufuldstændigt.
Carl von Linné beskrev formelt arten i 1753, med materiale dyrket i europæiske haver, næsten tre århundreder efter at planten havde krydset Atlanten og mere end otte årtusinder efter dens domesticering i Guerrero.
Bevaring
Dyrket majs har ingen individuel vurdering på IUCN’s Rødliste, en normal situation for kultigener, der kun findes under landbrugsdrift, og hvis fortsatte eksistens ikke afhænger af naturlige populationer. Arten optræder heller ikke på nogen CITES-liste. Bevaringsbekymringen falder derfor på to helt forskellige fronter.
Den første er de vilde slægtninges situation. Zea diploperennis er opført som truet på Rødlisten og overlever på få kvadratkilometer i Sierra de Manantlán i Mexico, hvor området netop på grund af denne forekomst blev omdannet til biosfærereservat. Zea nicaraguensis befinder sig i en endnu mere prekær situation, med en population anslået til få tusind individer koncentreret i et minimalt bælte af Nicaraguas kystslette, udsat for dræning af lavvandede områder og byudvidelse. De øvrige teosint-populationer lider under levestedsfragmentering, græsning og fremrykning af landbrugsgrænsen.
Den anden front er den genetiske erosion inden for selve den dyrkede art. Udskiftningen af lokale sorter med ensartede kommercielle hybrider har indsnævret det genetiske grundlag, der er tilgængeligt for forædling på global skala. Svaret kom via ex situ-bevaring, med CIMMYT’s genbank i Mexico, der forvalter verdens største samling af majs- og teosint-accessioner, og via bevaring på landbrug, understøttet i Brasilien af Embrapa-programmer og af netværk af landmænd, der vogter oprindelige frø i syd og nordøst.
Kuriositeter
- Antallet af kernerækker på en kolbe er altid lige, et resultat af et udviklingsmønster hvor hvert hunligt småaks danner to naboblomster. Kolber med et ulige antal rækker forekommer stort set aldrig.
- Hver majssilketråd svarer til en enkelt blomst og skal opfange mindst ét pollenkorn for at en kerne kan dannes. De uregelmæssige huller, der optræder på dårligt bestøvede kolber, er det nøjagtige billede af hvilke arvenskår der stod uden pollen.
- Majs udfører fotosyntese via C4-vejen, en mekanisme der koncentrerer kuldioxid og reducerer fotorespiration. Det forklarer afgrødens produktivitet ved høj temperatur og intens lysstyrke, forhold hvor C3-kornsorter som hvede taber effektivitet.
- Barbara McClintock opdagede de bevægelige genetiske elementer, de såkaldte transposoner, ved at studere den uregelmæssige nedarvning af kernefarve i majs, et arbejde der gav hende Nobelprisen i fysiologi eller medicin i 1983, mere end tre årtier efter de oprindelige publikationer.
- Teosinten blev betragtet som en selvstændig slægt så længe, at sammenlægningen med Zea stadig skaber uenighed blandt forfattere, og hypotesen om at majs nedstammede fra den, blev afvist af store dele af det videnskabelige samfund, indtil de molekylære analyser i 1990’erne bekræftede den.
Bemærk: dette indhold er informativt og erstatter ikke professionel sundhedsrådgivning. Kontakt en læge eller fytoterapeut, før du bruger lægeplanter, især under graviditet, amning eller ved brug af medicin.
Referencer og videnskabelige studier
Peer-Reviewed Videnskabelige Studier (2)
- DOI2004 Doebley, J. F. The genetics of maize evolution. Annual Review of Genetics, 38, 37-59. 2004. ↗
- DOI2009 Piperno, D. R., Ranere, A. J., Holst, I., Iriarte, J., Dickau, R. Starch grain and phytolith evidence for early ninth millennium B.P. maize from the Central Balsas River Valley, Mexico. Proceedings of the National Academy of Sciences, 106(13), 5019-5024. 2009. ↗
Supplerende Læsning (5)
- CIMMYT. Maize Germplasm Bank. Centro Internacional de Mejoramiento de Maíz y Trigo, El Batán, Mexico. ↗
- International Plant Names Index (IPNI). Zea mays L. Royal Botanic Gardens, Kew; Harvard University Herbaria; Australian National Botanic Gardens. ↗
- IUCN. The IUCN Red List of Threatened Species. International Union for Conservation of Nature. ↗
- Linnaeus, C. Species Plantarum, vol. 2, p. 971. Stockholm. 1753. ↗
- POWO. Plants of the World Online. Zea mays L. Royal Botanic Gardens, Kew. ↗