Le jasmin du Cap (Gardenia jasminoides J.Ellis) est un arbuste à feuillage persistant de la famille des Rubiacées, la lignée qui rassemble aussi le caféier, le quinquina et l’ipéca, et sans doute le cas le plus connu d’une plante ayant conquis l’Occident par son parfum bien avant que la botanique ne la comprenne. Les fleurs blanches et cireuses, solitaires à l’extrémité des rameaux, dégagent un arôme dense qui s’intensifie en fin d’après-midi et envahit à lui seul un jardin entier. C’est cette odeur, et non la feuille ni le fruit, qui a valu à l’espèce une place durable dans le jardinage de climat tempéré sur presque tous les continents.
L’aire d’origine se trouve à l’opposé du monde par rapport au nom vernaculaire que l’espèce a reçu en français comme en anglais. Selon Plants of the World Online, du Royal Botanic Gardens de Kew, la répartition originelle s’étend de l’Himalaya oriental au centre et au sud de la Chine, atteint l’Indochine et gagne le sud du Japon, toujours à l’intérieur du biome subtropical. Le surnom de jasmin du Cap, calqué sur l’anglais cape jasmine, garde la mémoire de la route commerciale qui a porté les premiers plants en Europe, avec escale au cap de Bonne-Espérance, et non celle d’une quelconque origine africaine.
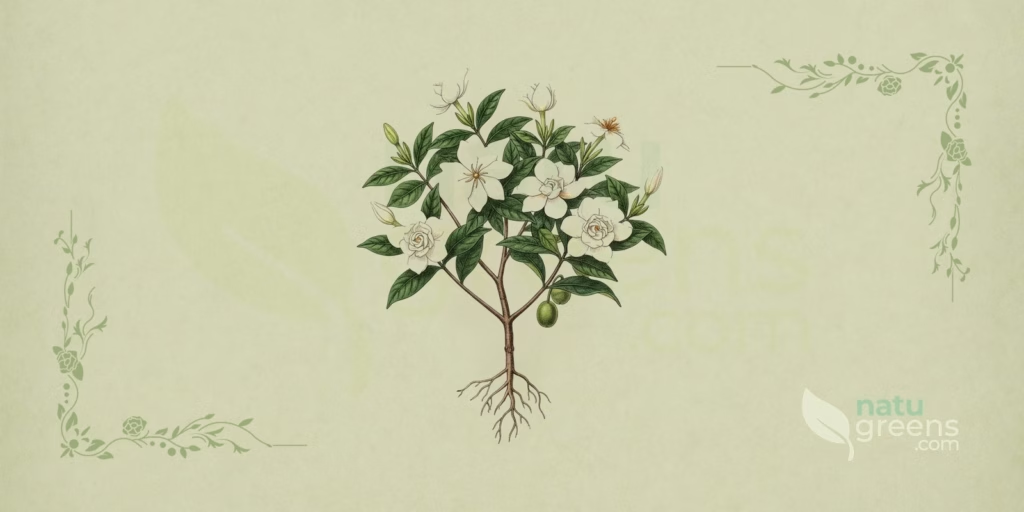
Sur le plan morphologique, l’intérêt de l’espèce tient moins à la fleur spectaculaire qu’au fruit. Alors que la corolle ne dure que quelques jours avant de se défaire en un crème jaunâtre, la baie côtelée mûrit lentement, prend un orange soutenu et reste accrochée à l’arbuste pendant des mois, le calice persistant en couronnant encore la pointe. C’est ce fruit qui soutient la longue histoire économique de la plante en Asie orientale, où les pigments qu’il accumule alimentent teintureries et cuisines depuis des siècles.
Taxonomie
Le nom accepté est Gardenia jasminoides J.Ellis, publié dans les Philosophical Transactions of the Royal Society of London, volume 51, partie 2, page 935, en 1761. L’enregistrement figure à l’International Plant Names Index sous l’identifiant 751073-1, et Plants of the World Online confirme le binôme comme accepté, avec pas moins de cinquante-six synonymes associés, héritage de deux siècles et demi de descriptions parallèles dues à des auteurs européens, japonais et taïwanais travaillant sur des plantes de culture.
La classification complète, dans l’ossature taxonomique adoptée par Kew, est la suivante :
- Règne : Plantae
- Embranchement : Streptophyta
- Classe : Equisetopsida
- Sous-classe : Magnoliidae
- Ordre : Gentianales
- Famille : Rubiaceae
- Tribu : Gardenieae
- Genre : Gardenia J.Ellis, 1761
- Espèce : Gardenia jasminoides J.Ellis, 1761
Le genre Gardenia réunit plus d’une centaine d’espèces acceptées, réparties dans les régions tropicales et subtropicales d’Afrique, d’Asie, d’Australasie et des îles du Pacifique. La tribu des Gardenieae, à laquelle il appartient, est traditionnellement placée dans la sous-famille des Ixoroideae, même si la délimitation interne des Rubiacées fait l’objet d’une réorganisation par les études phylogénétiques moléculaires depuis les années 2000.
Synonymes Homotypiques
Fondés sur le même type nomenclatural que le nom d’Ellis, tous publiés comme noms superflus et donc illégitimes :
- Gardenia augusta Merr., Interpr. Herb. Amboin.: 485 (1917), nom. illeg. superfl.
- Gardenia florida L., Sp. Pl., ed. 2: 305 (1762), nom. illeg. superfl.
- Genipa florida Baill., Hist. Pl. 7: 307, 379 (1880), nom. illeg. superfl.
Synonymes Hétérotypiques Principaux
Parmi les cinquante-trois synonymes hétérotypiques reconnus, ceux qui circulent le plus largement dans la littérature horticole et floristique sont :
- Gardenia grandiflora Lour., Fl. Cochinch.: 147 (1790)
- Gardenia maruba Siebold ex Blume, Bijdr. Fl. Ned. Ind.: 1015 (1826)
- Gardenia pictorum Hassk., Flora 28: 234 (1845)
- Gardenia radicans Thunb., Gardenia: 11 (1780)
- Jasminum capense Mill., Gard. Dict., ed. 8: n° 7 (1768)
- Mussaenda chinensis Lour., Fl. Cochinch.: 152 (1790)
- Varneria augusta L., Amoen. Acad. 4: 136, 138 (1759), genre non validement publié
Il faut noter que Gardenia augusta a circulé pendant des décennies comme s’il s’agissait du nom correct de l’espèce, surtout dans la littérature australienne et nord-américaine de la seconde moitié du XXe siècle, et qu’il figure encore sur des étiquettes de pépinière et dans des catalogues commerciaux. Il s’agit d’un nom superflu, sans priorité sur celui d’Ellis, et son emploi est aujourd’hui considéré comme incorrect.
Étymologie du Binôme
Le nom générique rend hommage à Alexander Garden (1730-1791), médecin et naturaliste écossais installé à Charleston, en Caroline du Sud, correspondant assidu de Linné et de John Ellis. Ce fut pourtant un second choix. Ellis entendait nommer le genre Warneria, en l’honneur de Richard Warner, l’horticulteur anglais dans le jardin duquel avait fleuri l’exemplaire étudié, mais Warner refusa cet honneur. Linné, de son côté, avait déjà employé la graphie Varneria en 1759, sans publication générique valide, et opposa son veto à la proposition d’Ellis pour le nom Augusta. L’épithète jasminoides signifie semblable au jasmin, référence directe au parfum et à l’aspect de la corolle, bien que les deux plantes appartiennent à des familles distinctes et ne soient pas proches parentes.
Description Morphologique du Gardenia
Arbuste à feuillage persistant de taille variable, entre 0,3 et 3 mètres de haut selon la forme et les conditions de culture, à ramification dense dès la base et à houppier arrondi et compact. Les jeunes rameaux sont cylindriques et pubérulents, puis deviennent glabres et grisâtres en se lignifiant. Les formes rampantes, correspondant à l’ancien Gardenia radicans Thunb., ne dépassent pas le demi-mètre et s’étalent latéralement, tandis que les sujets vigoureux de forme typique dépassent largement la hauteur d’une personne.
Feuilles
- Disposition : opposées ou réunies en verticilles de trois
- Domaties : touffes de poils fréquentes à l’aisselle des nervures, à la face inférieure
- Forme : oblongue-lancéolée, obovale, oblancéolée ou elliptique, à sommet aigu ou acuminé et base cunéiforme
- Limbe : de 3 à 25 centimètres de long sur 1,5 à 8 centimètres de large
- Marge : entière
- Nervures secondaires : 8 à 15 paires, saillantes à la face inférieure
- Pétiole : court, jusqu’à 0,5 centimètre, rarement 1 centimètre
- Stipules : calyptrées, soudées en une gaine cylindrique de 4 à 13 millimètres, fendue sur environ les trois quarts de sa longueur, caractère diagnostique des Rubiacées
- Texture et couleur : cartacée à subcoriace, vert foncé et luisante dessus, plus claire et mate dessous
Fleurs
Les fleurs naissent solitaires à l’extrémité des rameaux, rarement à l’aisselle des feuilles supérieures, et s’ouvrent en succession sur plusieurs semaines. Chacune dure de deux à quatre jours, et le passage du blanc pur au crème jaunâtre marque la fin de l’anthèse avec une précision presque chronométrique.
- Calice : tubuleux et côtelé, à 5 à 8 lobes linéaires atteignant 40 millimètres et persistant sur le fruit
- Corolle : blanche à l’ouverture, hypocratériforme, à tube cylindrique de 30 à 50 millimètres de long sur 4 à 6 millimètres de diamètre, à gorge poilue
- Étamines : insérées à la gorge du tube, à anthères linéaires subsessiles
- Lobes de la corolle : en général 6, de 5 à 8 chez les formes sauvages, obovales, de 15 à 40 millimètres sur 6 à 28 millimètres, très nombreux chez les formes doubles de culture
- Ovaire : infère, uniloculaire, à placentation pariétale
- Parfum : intense et sucré, à son maximum en fin d’après-midi et la nuit
Fruits et Graines
- Calice persistant : lobes linéaires restant dressés au sommet du fruit mûr
- Chair : orangée et colorante, tachant facilement les doigts et les tissus
- Côtes : 5 à 9 crêtes longitudinales saillantes, parfois ailées
- Couleur : jaune à orangé jaunâtre à maturité, fonçant à la dessiccation
- Graines : nombreuses, aplaties et anguleuses, noyées dans la chair
- Type et taille : baie ovoïde, subglobuleuse ou ellipsoïde, de 1,5 à 7 centimètres de long sur 1,2 à 2 centimètres de large
Racine et Tige
Le système racinaire est fasciculé et superficiel, l’essentiel des racines absorbantes se concentrant dans les vingt premiers centimètres de sol, une disposition qui explique la sensibilité de l’espèce à l’engorgement comme au dessèchement rapide du substrat. La tige est ligneuse, à écorce lisse et brune, et rejette facilement de la souche après une taille, ce qui explique la longévité des sujets cultivés. Les formes prostrées s’enracinent aux nœuds en contact avec le sol, port qui a donné naissance à l’épithète radicans.
Répartition et Habitat
La répartition indigène reconnue par Plants of the World Online couvre le Cambodge, la Chine centre-nord, la Chine centre-sud, la Chine du Sud-Est, Hainan, l’Himalaya oriental, le Japon, le Laos, Taïwan, la Thaïlande et le Viêt Nam. Il s’agit donc d’une espèce à large éventail asiatique, dont le centre de diversité génétique se situe dans le sud de la Chine, où les populations sauvages occupent la bande au sud du Yangtsé et présentent une variation morphologique notable dans la taille de la feuille et du fruit.
Hors de cette aire, Kew enregistre une introduction consolidée au Bangladesh, aux Comores, en Corée, aux îles Carolines, aux îles de la Société, aux îles Mariannes, aux îles Marshall et aux îles Tubuaï. Le schéma est parlant : l’espèce s’installe surtout dans les archipels tropicaux et subtropicaux humides, où la culture ornementale a précédé l’échappement. Aucun comportement envahissant agressif n’est signalé sur ces territoires, et l’expansion locale reste en général cantonnée aux abords des zones habitées. Au Brésil, où elle compte parmi les plantes ornementales les plus répandues dans les jardins et sur les trottoirs, aucune naturalisation n’est documentée.
L’habitat d’origine se compose de versants forestiers humides, de lisières, de bosquets de bambous, de berges de ruisseaux et de terrains ouverts à sol constamment humide, à des altitudes allant du niveau de la mer à environ 1 500 mètres. Le climat de prédilection est subtropical humide, à étés chauds, hivers doux et précipitations bien réparties, entre 1 000 et 2 000 millimètres par an. Le trait édaphique le plus rigide de l’espèce est l’acidité : elle prospère sur des sols acides, riches en matière organique et bien drainés, et supporte mal les substrats calcaires ou dont le pH dépasse 7.
Culture
La multiplication commerciale se fait presque entièrement par bouturage semi-ligneux, avec des boutures de dix à quinze centimètres prélevées à la fin du printemps et en été, maintenues sous brumisation avec chaleur de fond. L’enracinement demande six à huit semaines et gagne en régularité avec une hormone de bouturage. Le marcottage aérien convient bien pour multiplier de grands sujets adultes sans attendre la croissance de jeunes plants, et le semis, quoique possible, reste lent et irrégulier, la germination s’étalant sur trente à soixante jours, raison pour laquelle il demeure réservé aux programmes de sélection. Dans les régions à sol alcalin, le greffage sur Gardenia thunbergia est une pratique ancienne de pépiniériste, adoptée précisément pour contourner l’intolérance du porte-greffe d’origine au pH élevé.
Les exigences culturales sont bien connues et peu souples. La plante demande le plein soleil sous climat doux et de l’ombre aux heures les plus chaudes de l’après-midi sous climat tropical, un substrat acide entre pH 5,0 et 6,5, une humidité constante sans engorgement et une protection contre les vents secs. Les nuits fraîches favorisent la formation des boutons, ce qui explique la floraison plus généreuse observée dans le sud et le sud-est du Brésil que dans les régions à nuits chaudes. La chute des boutons avant l’ouverture est le désagrément le plus courant chez les jardiniers et découle le plus souvent d’un écart thermique brutal, d’un arrosage irrégulier ou d’un changement d’emplacement pendant la formation florale.
Le bilan sanitaire se concentre sur quelques problèmes récurrents :
- Acariens : fréquents en atmosphère sèche et abritée, ils provoquent un bronzage et une chute précoce des feuilles
- Aleurode : infeste la face inférieure des feuilles en culture abritée et dans les plantations serrées
- Chlorose ferrique : jaunissement internervaire des jeunes feuilles en sol alcalin, le trouble physiologique le plus fréquent de l’espèce
- Cochenilles : elles colonisent le dessous des feuilles et l’aisselle des rameaux, et leur excrétion sucrée ouvre la voie aux champignons
- Fumagine : revêtement noir superficiel associé à la présence de cochenilles, de pucerons et d’aleurodes
- Pourriture racinaire : due à des champignons du sol du genre Phytophthora dans les substrats tassés ou engorgés
Parmi les formes horticoles les plus répandues figurent ‘August Beauty’, à floraison prolongée et de taille moyenne, ‘Chuck Hayes’, sélectionnée pour sa rusticité au froid, ‘Kleim’s Hardy’, compacte et à fleur simple, ‘Mystery’, à grandes fleurs doubles, ‘Radicans’, naine et rampante, et ‘Veitchii’, la plus courante en production de pot. La récolte des fruits, lorsqu’elle vise l’extraction de pigment, a lieu à la fin de l’automne et en hiver, les fruits étant alors pleinement orangés et encore fermes sur le rameau.
Phénologie
Dans l’aire d’origine, la floraison va de mars à juillet, avec un pic entre avril et juin, et la fructification s’étend de mai jusqu’en février de l’année suivante, ce qui signifie que fleurs et fruits de récoltes successives cohabitent sur le même arbuste une bonne partie de l’année. Dans l’hémisphère sud, le calendrier se déplace vers le printemps et l’été, l’ouverture se concentrant entre octobre et mars et les fruits mûrissant au fil de l’automne et de l’hiver.
La biologie florale plaide pour une pollinisation nocturne. La corolle blanche à tube étroit et long, l’anthèse en fin de journée et l’émission d’un parfum qui s’intensifie à la tombée du soir composent le tableau classique des fleurs adaptées aux papillons de nuit à longue trompe, sphingidés en tête, même si abeilles et autres insectes diurnes visitent les fleurs fraîchement ouvertes en quête de pollen. La dissémination naturelle est attribuée aux oiseaux frugivores, ce qui s’accorde avec un fruit charnu, coloré et persistant sur le rameau tout l’hiver, même si les observations de terrain restent rares pour une plante que les horticulteurs multiplient de leurs mains depuis fort longtemps. Les formes doubles de culture, dont les étamines se sont converties en pétales, sont en grande partie stériles et fructifient rarement.
Espèces Apparentées et Confusions
Au sein du genre, trois espèces accompagnent souvent le jasmin du Cap dans les collections et les pépinières. Gardenia thunbergia Thunb., d’Afrique du Sud, se distingue d’emblée par son port arborescent, qui peut atteindre cinq mètres, par son tube floral bien plus long et étroit et par son fruit ligneux et dur, qui persiste des années sur la plante. Gardenia taitensis DC., le tiaré du Pacifique Sud et fleur emblématique de Tahiti, a des feuilles plus grandes et plus membraneuses et une corolle à lobes larges et plats, toujours simple. Gardenia volkensii K.Schum., des savanes africaines, présente un port ramifié et tortueux et des fruits à écorce rigide, et nul ne la confond avec l’espèce asiatique après avoir vu les deux côte à côte.
Hors du genre, les confusions sont plus fréquentes et plus lourdes de conséquences :
- Camellia japonica L. (Theaceae) : les cultivars blancs à fleur double évoquent de loin un gardénia, mais le camélia n’a pas de parfum perceptible, ses feuilles ont une marge dentée et son ovaire est supère
- Jasminum sambac (L.) Aiton (Oleaceae) : fleurs blanches tout aussi parfumées, mais disposées en cymes et non solitaires, feuilles minces et non coriaces, port grimpant ou sarmenteux
- Tabernaemontana divaricata (L.) R.Br. ex Roem. & Schult. (Apocynaceae) : la variété à fleurs doubles est le sosie le plus trompeur dans les jardins brésiliens, où elle porte les noms de jasmim-café et de jasmim-leiteiro
La distinction décisive avec Tabernaemontana est simple et immédiate : tout rameau ou toute feuille brisée laisse couler un latex blanc et laiteux, totalement absent chez les Rubiacées. Ce latex, caractéristique des Apocynacées, contient des alcaloïdes et irrite la peau et les muqueuses, raison pour laquelle la distinction n’a rien d’une simple curiosité d’identification. Les pétales de Tabernaemontana sont en outre légèrement vrillés, d’allure de moulinet, tandis que ceux du gardénia se recouvrent en spirale régulière.
Phytochimie
Le profil chimique de Gardenia jasminoides est dominé par deux groupes de composés concentrés dans le fruit : les iridoïdes glycosidiques et les caroténoïdes hydrosolubles. Parmi les iridoïdes, le géniposide est majoritaire, accompagné du gardénoside, de l’acide géniposidique et du shanzhiside, ainsi que de la génipine, aglycone libérée par l’hydrolyse du géniposide. Parmi les caroténoïdes, la crocine et son aglycone la crocétine expliquent le jaune orangé soutenu de la chair, et ce sont exactement les mêmes pigments qui colorent le safran véritable, tiré des stigmates de Crocus sativus, plante d’une famille tout à fait différente.
La répartition de ces composés dans la plante est inégale. Les iridoïdes et les caroténoïdes s’accumulent surtout dans le péricarpe et la chair du fruit mûr, à des teneurs bien plus faibles dans les feuilles et les rameaux. Les feuilles concentrent des triterpènes, dont l’acide ursolique, ainsi que des flavonoïdes et des acides chlorogéniques. Les fleurs, quant à elles, ne contribuent en rien au tableau pigmentaire et constituent un chapitre à part : l’huile essentielle florale réunit l’acétate de benzyle, l’alcool benzylique, la cis-jasmone, le linalol et l’alpha-terpinéol, combinaison à l’origine de la signature olfactive que la parfumerie s’efforce de reproduire depuis le XIXe siècle, l’extraction directe à l’échelle industrielle ne s’étant jamais révélée viable.
La génipine possède une propriété chimique remarquable et bien documentée : au contact des acides aminés primaires et des protéines, elle réagit en formant des pigments bleus stables. C’est cette réaction, et non un quelconque pigment préexistant, qui explique le colorant connu sous le nom de bleu de gardénia, employé dans l’industrie alimentaire asiatique. Du même fruit sortent donc un jaune direct et un bleu obtenu par réaction, ce qui fait de l’espèce une source industrielle de colorants naturels particulièrement polyvalente.
Quant à la sécurité animale, le constat est net et relève du présent : l’espèce figure sur les listes de plantes toxiques pour les chiens, les chats et les chevaux tenues par le centre antipoison animal de l’ASPCA, qui désigne le géniposide et le gardénoside comme principes responsables, avec un tableau décrit de vomissements légers, de diarrhée et d’urticaire après ingestion.
Histoire et Ethnobotanique
Le parcours documentaire de l’espèce commence en Asie orientale bien avant tout enregistrement européen. Les fruits secs apparaissent sous le nom de zhi zi (栀子) dans les compilations chinoises de matière médicale depuis au moins le premier siècle, avec une mention dans le Shennong Bencao Jing, et sont restés catalogués dans les pharmacopées impériales tout au long des deux millénaires suivants. En parallèle, et avec une documentation tout aussi ancienne, le fruit a été employé comme source de teinture jaune par les teinturiers chinois, qui s’en servaient pour colorer les étoffes de soie et de coton.
Au Japon, où la plante s’appelle kuchinashi, ce même fruit est entré en cuisine et y est resté. La chair sert à colorer des préparations traditionnelles comme le kuri kinton, confiserie de châtaigne du nouvel an, et le takuan, condiment de navet, ainsi que le riz et les pâtes. L’usage alimentaire a survécu à l’industrialisation et soutient aujourd’hui des plantations commerciales en Chine et au Japon consacrées à l’extraction de pigment pour l’industrie alimentaire et cosmétique.
L’arrivée de l’espèce en Europe s’est produite vers la première moitié du XVIIIe siècle, par les routes des compagnies de commerce néerlandaises et anglaises qui opéraient entre l’Asie et l’Atlantique avec escale au cap de Bonne-Espérance. C’est à partir d’un exemplaire cultivé en Angleterre que John Ellis a disséqué la fleur, constaté que la plante n’était pas apparentée aux vrais jasmins et proposé, en 1761, le genre qui porte aujourd’hui le nom d’Alexander Garden. Dans les décennies suivantes, le gardénia est devenu un symbole de statut dans l’horticulture de serre européenne, et au XIXe siècle il a traversé l’Atlantique pour s’installer dans les jardins du sud des États-Unis, où il a été cultivé à grande échelle dans les propriétés de Caroline du Sud, de Géorgie et de Louisiane.
Au XXe siècle, la fleur a connu une seconde vie culturelle comme ornement personnel. Elle a servi de fleur de boutonnière standard aux tenues de cérémonie masculines jusqu’aux années 1950 et est restée associée de façon indélébile à la chanteuse Billie Holiday, qui la portait piquée dans les cheveux sur scène, au point que le gardénia est devenu une part de son identité visuelle publique.
Conservation
L’espèce ne fait l’objet d’aucune évaluation mondiale publiée sur la Liste rouge de l’UICN, et la consultation de la base ne renvoie aucune fiche pour le binôme, situation qui la place formellement dans la catégorie Non évaluée (NE). Elle ne figure pas davantage dans une annexe de la CITES, de sorte qu’aucune restriction internationale ne pèse sur le commerce de plants, de graines ou de fruits.
L’absence d’évaluation n’indique pas en soi une situation préoccupante. L’espèce a une répartition indigène étendue, se rencontre dans plusieurs pays d’Asie et est cultivée à l’échelle industrielle en Chine, au Japon et en Corée pour la production de pigment, en plus d’être l’une des plantes ornementales les plus multipliées au monde dans les pépinières commerciales. Cette combinaison rend sa persistance pratiquement indépendante du sort des populations sauvages, qui subissent les pressions habituelles de conversion des habitats dans le sud de la Chine. La conservation ex situ est solide et passive : les collections de jardins botaniques, les banques de germoplasme des institutions agronomiques asiatiques et l’ampleur même de la culture ornementale y pourvoient.
Le contraste avec d’autres espèces du genre est en revanche sévère. Plusieurs Gardenia insulaires ont une répartition naturellement minuscule et une situation critique, au premier rang desquelles Gardenia brighamii H.Mann, endémique d’Hawaï et réduite à quelques dizaines d’individus sauvages, tributaire de plantations de renforcement et d’une protection contre les herbivores introduits. La marge confortable du jasmin du Cap ne s’étend donc pas au genre qu’il représente dans l’imaginaire populaire.
Curiosités
- Le nom japonais kuchinashi signifie littéralement sans bouche, allusion au fruit qui mûrit sans s’ouvrir, à la différence des capsules déhiscentes qui libèrent leurs graines par des fentes.
- Le synonyme Jasminum capense Mill., de 1768, et le nom vernaculaire anglais cape jasmine consignent la route commerciale, et non l’origine : les premières plantes sont arrivées en Europe sur des navires qui faisaient escale au cap de Bonne-Espérance, et l’on a longtemps cru l’espèce africaine.
- La crocine du fruit du gardénia est le pigment même des stigmates du safran, ce qui fait du fruit une source industrielle bien meilleur marché de la même molécule colorante, quoique sans l’arôme caractéristique de l’épice.
- Le parfum de gardénia vendu en parfumerie est presque toujours une reconstruction synthétique. La fleur ne donne pas d’huile essentielle en quantité économiquement viable, et l’industrie travaille avec des accords bâtis à partir d’acétate de benzyle, de linalol et d’autres molécules identifiées dans l’analyse de l’arôme naturel.
- Ellis a failli baptiser le genre Warneria, en l’honneur du propriétaire de la plante qu’il avait étudiée. Le refus de l’intéressé a donné au monde le nom qui est resté, emprunté à un naturaliste écossais vivant de l’autre côté de l’Atlantique et qui n’a probablement jamais vu l’espèce vivante.
Avertissement: ce contenu est informatif et ne remplace pas l’avis d’un professionnel de santé. Consultez un médecin ou un phytothérapeute avant d’utiliser des plantes médicinales, notamment pendant la grossesse, l’allaitement ou en cas de prise de médicaments.
Références et Études Scientifiques
Voir les 9 Références Citées
- ASPCA Animal Poison Control Center. Toxic and Non-Toxic Plant List: Gardenia jasminoides. American Society for the Prevention of Cruelty to Animals. Disponible sur ↗
- Ellis, J. An account of the plants Halesia and Gardenia. Philosophical Transactions of the Royal Society of London, 51(2): 929-935, 1761.
- 1993 Iwatsuki, K., Yamazaki, T., Boufford, D. E. & Ohba, H. (éd.). Flora of Japan IIIa: 1-482. Kodansha, Tokyo, 1993.
- POWO. Gardenia jasminoides J.Ellis. Plants of the World Online, Royal Botanic Gardens, Kew. Disponible sur ↗
- The International Plant Names Index. Gardenia jasminoides J.Ellis, enregistrement 751073-1. Disponible sur ↗
- 2026 The IUCN Red List of Threatened Species. Recherche du nom Gardenia jasminoides, sans fiche d’évaluation mondiale publiée à la date d’août 2026. Disponible sur https://www.iucnredlist.org/search?query=Gardenia jasminoides
- Thunberg, C. P. Gardenia: 1-19. Dissertation présentée à l’université d’Uppsala, 1780.
- 2011 Wu, Z., Raven, P. H. & Hong, D. (éd.). Flora of China, vol. 19: Rubiaceae, 1-884. Science Press, Pékin, et Missouri Botanical Garden Press, Saint-Louis, 2011.
- 2017 Xiao, W., Li, S., Wang, S. & Ho, C. T. Chemistry of Gardenia jasminoides Ellis. Journal of Food and Drug Analysis, 25(1): 43-61, 2017.