Adiantum capillus-veneris est une fougère rhizomateuse de la famille des Pteridaceae, reconnaissable de loin au contraste entre ses pinnules vert clair, presque translucides, et les pétioles noirs et luisants qui les portent. Cette silhouette a valu à l’espèce le nom de cheveux de Vénus dans presque toutes les langues européennes, tandis que le français a retenu celui de capillaire de Montpellier, hérité des officines du Midi. Peu de plantes parviennent à paraître si fragiles tout en résistant autant: la même fronde qui se défait au moindre contact colonise depuis des millénaires les parois calcaires exposées au vent méditerranéen.
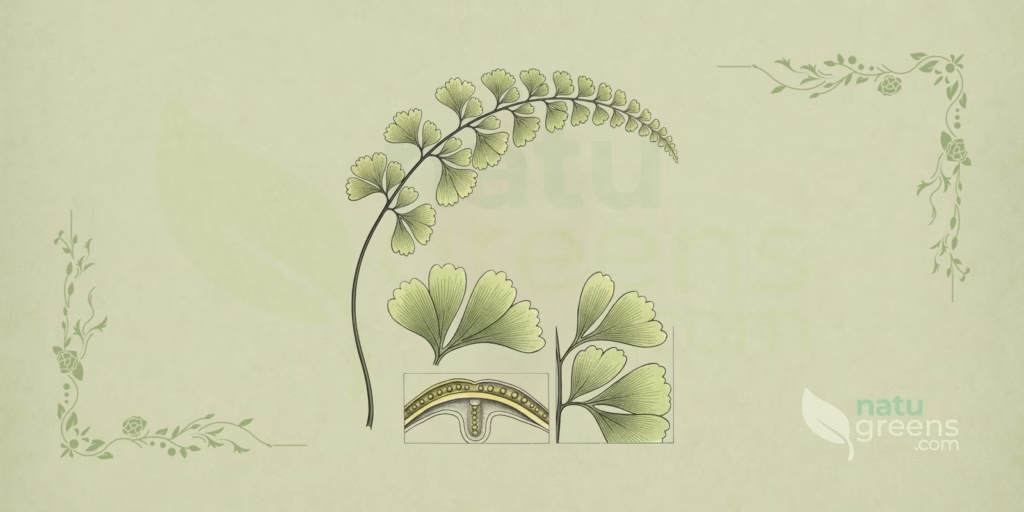
La répartition de l’espèce compte parmi les plus vastes de toutes les fougères. Plants of the World Online qualifie son aire native de cosmopolite, ce qui signifie une présence naturelle dans les régions tempérées chaudes et tropicales humides de tous les continents sauf l’Antarctique. Cette ampleur ne tient pas à une tolérance généraliste mais à l’inverse: le capillaire dépend d’un micro-habitat très précis, la roche alimentée en permanence par une eau d’infiltration et soustraite à la lumière directe, qui se rencontre de façon dispersée sur presque toute la planète. Là où une source ruisselle sur du calcaire, il est raisonnable de partir à sa recherche.
L’intérêt botanique de l’espèce dépasse largement le jardinage. Parce qu’elle germe facilement, boucle son cycle en une centaine de jours au laboratoire et répond de manière prévisible aux stimuli lumineux, Adiantum capillus-veneris est devenue l’un des organismes modèles classiques de l’étude du développement des fougères, avec une littérature accumulée depuis le dix-neuvième siècle sur la germination des spores, la formation du gamétophyte et la photomorphogenèse. Cette fiche rassemble la taxonomie, la morphologie, l’écologie, la culture, la phytochimie descriptive, l’histoire culturelle et la conservation de l’espèce.
Taxonomie
Carl von Linné a décrit l’espèce en 1753, dans la première édition du Species Plantarum, et le nom est resté stable depuis, sans recombinaison générique notable. L’International Plant Names Index enregistre le protologue à Sp. Pl. 2: 1096, publié le 1er mai 1753, sous l’identifiant 325030-2. Plants of the World Online conserve le binôme comme nom accepté.
- Règne: Plantae
- Division: Polypodiophyta
- Classe: Polypodiopsida
- Ordre: Polypodiales
- Famille: Pteridaceae
- Sous-famille: Vittarioideae
- Genre: Adiantum L.
- Espèce: Adiantum capillus-veneris L., 1753
La famille mérite une mise au point, car les sources semblent diverger. L’IPNI indexe l’espèce sous Adiantaceae, selon la tradition nomenclaturale qui isolait les capillaires dans une famille propre. La classification du Pteridophyte Phylogeny Group, publiée en 2016 et adoptée aujourd’hui par la plupart des flores ainsi que par Kew, place Adiantum dans les Pteridaceae, au sein de la sous-famille des Vittarioideae, où le genre apparaît comme groupe frère des vittarioïdes à fronde simple. Les deux graphies désignent la même plante, et Pteridaceae correspond à la lecture actuelle.
Synonymes
La synonymie de l’espèce est abondante en raison de la variation morphologique entre populations éloignées, qui a conduit les botanistes des dix-neuvième et vingtième siècles à décrire des formes locales comme des taxons indépendants. Parmi les noms aujourd’hui traités comme synonymes figurent les suivants:
- Adiantum capillus-veneris f. dissectum (M.Martens & Galeotti) Ching
- Adiantum capillus-veneris f. rimicola (Sloss.) Fernald
- Adiantum capillus-veneris var. modestum (Underw.) Fernald
- Adiantum capillus-veneris var. protrusum Fernald
- Adiantum capillus-veneris var. trifidum (Willd. ex Bolle) Milde
- Adiantum cuneifolium Stokes
- Adiantum emarginatum Bory ex Willd.
- Adiantum fumarioides Willd.
Aucune des variétés ci-dessus n’est reconnue comme taxon valide dans le traitement actuel de Kew, même si les épithètes continuent de circuler dans les catalogues horticoles et dans la littérature régionale ancienne. Qui consulte des flores publiées avant les années deux mille rencontrera souvent la var. protrusum appliquée au matériel nord-américain et la var. trifidum au matériel de la Méditerranée occidentale.
Étymologie
Le nom du genre vient du grec adianton, formé du préfixe privatif a et du verbe diainein, mouiller, et signifie littéralement ce qui ne se mouille pas. Le choix décrit un phénomène observable: la cuticule des pinnules est fortement hydrophobe, et une fronde plongée dans l’eau ressort sèche, l’eau s’écoulant en gouttes entières sans jamais adhérer au tissu. Théophraste employait déjà le terme au quatrième siècle avant l’ère commune.
L’épithète capillus-veneris se traduit par cheveu de Vénus et renvoie aux pétioles fins, noirs et brillants, qui évoquent des mèches de cheveux mouillés. La construction de l’épithète en deux mots reliés par un trait d’union est une survivance des phrases descriptives prélinnéennes que Linné a conservées dans quelques cas, et la graphie avec trait d’union est la forme correcte selon le Code international de nomenclature.
Description Morphologique
Fougère herbacée vivace, de port rhizomateux et cespiteux, formant des touffes denses ou des tapis lâches selon l’inclinaison et la fissuration du substrat. La hauteur habituelle se situe entre 15 et 45 centimètres, avec des sujets atteignant 60 centimètres dans les abris tropicaux bien ombragés et constamment humides. La croissance est lente et continue, sans période de repos marquée chez les populations tropicales, et l’extension de la colonie tient bien davantage à la ramification du rhizome qu’à l’installation de nouveaux sporophytes.
Feuilles
Les frondes constituent la structure diagnostique de l’espèce et concentrent pratiquement tous les caractères utiles à l’identification sur le terrain. Elles émergent à intervalles irréguliers le long du rhizome, avec une vernation circinée, et se déroulent progressivement de la base vers l’apex au fil de plusieurs semaines.
- Couleur: vert clair vif sur la face adaxiale, un peu plus pâle sur la face abaxiale
- Limbe: ovale-triangulaire, de 6 à 25 centimètres de long sur 8 à 16 centimètres de large, bipenné dans la partie inférieure et penné vers l’apex
- Longueur totale: 15 à 45 centimètres pétiole compris, exceptionnellement jusqu’à 60 centimètres
- Pétiole: 5 à 15 centimètres, noir pourpré à brun foncé, cylindrique, lisse et brillant
- Pinnules: flabelliformes, cunéiformes à la base, de 12 à 20 sur 10 à 15 millimètres, à marge supérieure arrondie et divisée en 2 à 4 lobes peu profonds
- Rachis: noir et luisant, légèrement flexueux, ramifié, avec des pétiolules capillaires qui articulent chaque pinnule
- Texture: membraneuse, translucide à contre-jour, à cuticule hydrophobe
Les sores occupent la face abaxiale des pinnules fertiles, au nombre de 3 à 10 par pinnule, le long de la marge supérieure. Il n’existe pas de véritable indusie: la protection des sporanges revient à une fausse indusie formée par le repli de la marge même de la pinnule sur le tissu sporogène. Cette fausse indusie est vert jaunâtre tant que les sporanges mûrissent et brunit à maturité, ce qui donne aux frondes fertiles une bordure supérieure plus sombre, visible à l’oeil nu. Les spores sont trilètes, de 40 à 50 micromètres de diamètre, à surface rugulée.
Fleurs
L’espèce ne produit pas de fleurs. Comme toute fougère, elle appartient à une lignée de plantes vasculaires sans graines qui a divergé des spermatophytes bien avant l’apparition de la fleur, et sa reproduction sexuée se déroule dans une génération indépendante et microscopique, le gamétophyte, décrite dans la section consacrée à la phénologie. Les structures que certains textes de jardinage appellent des fleurs correspondent en réalité aux sores de la face inférieure des frondes.
Fruits et Graines
Il n’y a pas davantage de fruits ni de graines, pour la même raison. L’unité de dispersion du capillaire est la spore, une cellule haploïde à paroi résistante produite par milliers dans chaque sporange. Le sporange possède un anneau de cellules à paroi inégalement épaissie qui fonctionne comme une catapulte: en perdant son eau, l’anneau se contracte, déchire la capsule et projette les spores à quelques centimètres, assez loin pour que les courants d’air prennent le relais du transport.
Rhizome et Racines
Le rhizome est court, rampant et ramifié, épais de quelques millimètres, revêtu d’écailles lancéolées brunes à marge entière et longues de 2 à 4 millimètres. En coupe anatomique, les rhizomes jeunes présentent une siphonostèle amphiphloïque, tandis que les rhizomes mûrs montrent la structure tubulaire perforée caractéristique des fougères polypodiales, caractère utilisé dans les études comparatives d’anatomie du groupe. Les racines sont adventives, fasciculées, fines et sombres, longues de 5 à 15 centimètres, et s’ancrent dans les fissures, les mousses et la matière organique retenue sur la roche, formant un système superficiel qui exploite un très faible volume de substrat.
Répartition et Habitat
Plants of the World Online décrit l’aire native de l’espèce comme cosmopolite, situation rare chez les fougères et partagée par très peu de plantes vasculaires. La présence naturelle couvre l’ensemble du bassin méditerranéen, la Macaronésie, le nord et l’est de l’Afrique, le Proche-Orient, le sous-continent indien, l’Asie orientale jusqu’au Japon, l’Asie du Sud-Est, l’Australie, la Nouvelle-Zélande, la moitié sud des États-Unis, le Mexique, l’Amérique centrale, les Caraïbes et une bonne partie de l’Amérique du Sud. En Europe atlantique, l’espèce atteint des stations abritées du sud de l’Angleterre, du pays de Galles et d’Irlande, où elle vit à la limite thermique de sa tolérance.
L’habitat est remarquablement uniforme malgré cette amplitude géographique. Le capillaire occupe les roches à ruissellement permanent, calcaires et marnes surtout, aux entrées de grottes, sur les parois de cascades, aux abords des sources, dans les puits, les aqueducs et les vieux murs sujets à l’infiltration. La combinaison exigée réunit une humidité atmosphérique élevée et constante, une lumière diffuse et faible, un substrat ferme et alcalin et l’absence d’engorgement racinaire, la plante préférant la roche mouillée au sol saturé. Cette dépendance au calcaire est le principal facteur limitant de sa répartition à l’échelle régionale et explique pourquoi l’espèce peut manquer sur des centaines de kilomètres à l’intérieur d’une zone climatiquement favorable.
L’amplitude altitudinale va du niveau de la mer à environ 1500 mètres en Europe, avec des relevés jusqu’à 2800 mètres dans les régions tropicales d’Asie. Le climat de prédilection est tempéré chaud à subtropical humide, à hivers doux, et l’espèce est sensible au gel, ce qui restreint les populations de haute latitude aux microclimats thermiquement tamponnés. Deux populations disjointes très au nord de l’aire continue, dans le Dakota du Sud et en Colombie-Britannique, survivent précisément parce qu’elles sont liées à des sources chaudes qui maintiennent la température du substrat au-dessus de ce que l’environnement permettrait.
Au Brésil, la situation impose de la prudence dans la lecture des sources. Les inventaires récents des Pteridaceae brésiliennes excluent Adiantum capillus-veneris des analyses de répartition naturelle en la considérant comme introduite ou cultivée sur le territoire, ce qui signifie que les relevés nationaux doivent s’interpréter comme une naturalisation à partir de la culture ornementale et non comme une présence indigène. La plante s’échappe aisément vers les murs humides, les gouttières de jardin et les talus ombragés des zones urbaines du sud-est et du sud, comportement également documenté dans plusieurs villes de climat méditerranéen. Rien n’indique que l’espèce se comporte en envahissante agressive en milieu naturel, sans doute parce que le micro-habitat qu’elle exige est rare et déjà occupé par des ptéridophytes indigènes.
Culture
Le capillaire a une réputation méritée de plante difficile en intérieur, et la raison est presque toujours la même: l’humidité relative de l’air. Tout le reste de la conduite est simple, et un sujet installé dans un endroit adéquat prospère pendant des décennies avec une intervention minimale. L’erreur classique consiste à répondre au dessèchement par davantage d’eau dans le substrat, ce qui ne fait qu’échanger la mort par assèchement contre la mort par pourriture du rhizome.
Les exigences de base sont les suivantes:
- Humidité de l’air: 60 à 80 pour cent, le facteur critique. Les pièces climatisées ou à chauffage central sont hostiles à l’espèce
- Lumière: mi-ombre à ombre complète, avec une lumière diffuse. L’exposition directe au soleil brûle les pinnules en quelques heures
- pH: neutre à alcalin, entre 6,5 et 8,0, ce qui distingue l’espèce de la plupart des fougères de culture, adaptées aux substrats acides
- Substrat: poreux et bien drainé, riche en matière organique, additionné de matériau calcaire tel que calcaire dolomitique ou gravier calcaire
- Température: plage confortable entre 16 et 25 degrés, sans exposition au gel ni baisse prolongée sous 12 degrés
- Ventilation: circulation d’air douce, suffisante pour freiner les champignons, sans courant direct qui dessécherait les frondes
La multiplication par division de touffe est la méthode habituelle et la plus rapide. On divise la plante adulte au début du printemps, en conservant dans chaque éclat un segment de rhizome muni de racines et de quelques frondes, et on replante aussitôt en substrat humide, en gardant le nouveau sujet à l’ombre plus dense pendant quelques semaines jusqu’à la reprise de la croissance. Les fragments de rhizome porteurs de bourgeons viables s’enracinent également en substrat tiède et humide.
La multiplication par spores est plus lente, mais c’est la voie qui produit le plus grand nombre de plantes et la seule qui engendre de la variabilité génétique. On récolte des frondes fertiles lorsque la fausse indusie est devenue brun foncé, on les laisse sur un papier lisse en atmosphère sèche pendant un à deux jours pour libérer les spores, que l’on sème ensuite sur substrat stérilisé et humide dans un récipient fermé et translucide. La germination survient en quelques jours dans des conditions favorables, les prothalles cordiformes deviennent visibles au bout de quelques semaines, et les premiers sporophytes transplantables exigent une patience de plusieurs mois à plus d’un an.
Parmi les problèmes phytosanitaires récurrents figurent les cochenilles, qui se fixent à la base des pétioles et sur le rhizome; les nématodes foliaires du genre Aphelenchoides, responsables de taches internervaires sombres et disséminés par l’arrosage par aspersion; ainsi que les limaces et les escargots en culture extérieure. Du côté des maladies, Botrytis cinerea progresse en atmosphère très humide et mal ventilée, tandis que Rhizoctonia et Pythium s’attaquent aux rhizomes et aux jeunes plants en substrat détrempé. Les troubles abiotiques passent souvent pour des maladies: des pointes de pinnules brunes signalent un air sec ou une eau à forte teneur en chlore résiduel, et un jaunissement général avec bordures brûlées indique un excès de lumière.
Il n’existe pas de récolte agricole significative de l’espèce. Ce qui existe, c’est la cueillette de frondes dans les populations sauvages pour le commerce ornemental et pour des marchés traditionnels de certaines régions de Méditerranée et d’Asie, pratique qui pèse sur les populations locales et que la section consacrée à la conservation reprend plus loin.
Phénologie
La phénologie d’une fougère s’organise autour de l’alternance des générations et non d’un calendrier floral. La génération visible, le sporophyte, produit des sporanges sur des frondes fertiles qui mûrissent surtout entre la fin du printemps et l’été, ce qui correspond à juin et août dans l’hémisphère nord et à novembre et mars chez les populations de l’hémisphère sud. Dans les climats tropicaux humides sans saison sèche marquée, la production de spores peut se poursuivre presque sans interruption tout au long de l’année.
Il n’y a ni pollinisateurs ni syndrome de pollinisation, puisqu’il n’existe pas de fleurs. La dispersion est anémochore: l’anneau du sporange expulse les spores par dessiccation, et les courants d’air prennent ensuite le relais du transport, sur une portée qui va de quelques centimètres à des distances intercontinentales lorsque les spores gagnent les couches hautes de l’atmosphère. Cette capacité de dispersion à longue distance constitue l’explication la plus admise tant de la répartition cosmopolite de l’espèce que de la faible différenciation morphologique des populations très isolées.
La spore qui rencontre un substrat humide et éclairé germe en quelques jours et donne naissance à un gamétophyte de vie libre, vert et laminaire, qui prend la forme cordiforme caractéristique en quelques semaines, une douzaine de rhizoïdes le fixant au substrat. Le gamétophyte est monoïque et porte des anthéridies sur la face ventrale, parmi les rhizoïdes, et des archégones près de l’échancrure apicale. La fécondation exige de l’eau liquide: les anthérozoïdes flagellés nagent dans la pellicule d’humidité qui recouvre le prothalle jusqu’à l’archégone, ce qui fait de la pluie ou d’un égouttement constant une condition obligatoire de la reproduction sexuée et aide à comprendre la fidélité de l’espèce aux roches à ruissellement permanent. Du zygote se développe le nouveau sporophyte, et le cycle complet peut se boucler en une centaine de jours en conditions contrôlées de laboratoire, délai nettement plus long sur le terrain.
Espèces Apparentées et Confusions
Le genre Adiantum réunit environ deux cents espèces réparties surtout sous les tropiques et les subtropiques, et plusieurs d’entre elles circulent dans le commerce ornemental sous le même nom vernaculaire de capillaire. La confusion la plus fréquente au Brésil ne relève même pas d’une identification difficile mais d’un problème d’étiquetage: une bonne part des capillaires vendus chez les fleuristes brésiliens est Adiantum raddianum, espèce indigène du pays, commercialisée sous une étiquette générique.
- Adiantum aethiopicum L.: espèce africaine et australasienne à pinnules plus petites et frondes plus dressées, dont le rhizome longuement rampant forme des colonies ouvertes plutôt que des touffes compactes
- Adiantum caudatum L.: frondes simplement pennées, longues et arquées, s’enracinant par l’apex et formant des propagules, caractère absent chez A. capillus-veneris
- Adiantum pedatum L.: limbe pédalé, les segments s’ouvrant en éventail depuis l’apex du pétiole comme les doigts d’une main ouverte, architecture reconnaissable entre toutes et sans équivalent chez l’espèce de cette fiche
- Adiantum raddianum C.Presl: pinnules plus petites, plus nombreuses et densément disposées, frondes plus compactes et tolérance aux substrats acides, à l’inverse de la préférence calcaire d’A. capillus-veneris
- Adiantum reniforme L.: limbe simple et réniforme, sans division, cantonné à la Macaronésie et à quelques localités asiatiques
Hors du genre, deux confusions méritent l’attention. Asplenium trichomanes partage le pétiole sombre et le port rupicole sur roche humide, mais son limbe est simplement penné, avec des pinnules oblongues disposées en paires régulières le long d’un rachis non ramifié, un dessin en arête de poisson qui n’a rien du rachis divisé et des pinnules en éventail du capillaire. Les espèces de Davallia, elles aussi cultivées en pot, montrent des rhizomes aériens épais et densément couverts d’écailles velues, exposés par-dessus le bord du récipient, structure qu’Adiantum ne présente jamais.
Il n’existe pas de sosie toxique notable pour cette espèce. Les fougères avec lesquelles elle peut être confondue sur le terrain appartiennent à des genres sans historique de toxicité aiguë documentée, situation différente de celle que l’on observe chez les plantes à fleurs, où une erreur d’identité peut avoir des conséquences graves.
Phytochimie du Genre Adiantum
La composition chimique d’Adiantum capillus-veneris est bien documentée, et le genre dans son ensemble figure parmi les fougères les plus étudiées du point de vue de la chimie des produits naturels. La description qui suit est strictement compositionnelle et n’implique aucun effet sur les organismes.
Les triterpénoïdes constituent la classe la plus caractéristique. L’adiantone est un triterpénoïde largement répandu dans le genre, présent chez la plupart des espèces examinées chimiquement, et les frondes d’A. capillus-veneris ont également livré l’isoadiantone, l’isoadiantol B, le filicène et des dérivés du filicane comme le 3,4-dihydroxyfilicane et le 3-méthoxy-4-hydroxyfilicane. Le filicène se concentre surtout dans la cire épicuticulaire, couche responsable de la répulsion de l’eau déjà évoquée dans la morphologie.
Parmi les flavonoïdes, la fraction acétate d’éthyle des frondes fournit la quercétine, le quercétine-3-O-glucoside, également appelé isoquercitrine, et le quercétine-3-O-rutinoside, connu sous le nom de rutine. Le kaempférol et son glucoside, l’astragaline, ont pareillement été relevés dans le matériel foliaire. S’y ajoutent des acides phénoliques comme l’acide gallique et des dérivés hydroxycinnamiques de l’acide caféique, ainsi que des proanthocyanidines, qui sont des tanins condensés.
Les analyses de profil plus large décrivent encore des triacylglycérols, des phospholipides, des caroténoïdes, des chlorophylles, des phytostérols et des composés organiques volatils, à distribution inégale selon les organes. La concentration des métabolites secondaires est la plus élevée dans les frondes, notamment dans les tissus jeunes, et la plus faible dans le rhizome et les racines. Une remarque d’ordre environnemental s’impose ici: l’espèce accumule des métaux lourds lorsqu’elle pousse sur un substrat contaminé, et des teneurs mesurables de ces éléments ont été détectées dans du matériel récolté près de sources de pollution, ce qui reflète la composition du site de collecte et non un constituant propre à la plante.
Histoire et Ethnobotanique
Peu de fougères réunissent un dossier documentaire aussi long. Dioscoride a décrit la plante au premier siècle de l’ère commune, dans De Materia Medica, sous le nom grec adianton, et l’espèce a ensuite traversé toute la tradition herboriste européenne, apparaissant chez Pline, dans les herbiers médiévaux et dans les pharmacopées de la Renaissance. Les auteurs antiques rattachaient la plante au monde souterrain et à Pluton, probablement en raison de sa présence à l’entrée des grottes.
Dans la pharmacie européenne du seizième au dix-neuvième siècle, le capillaire faisait partie de l’ensemble que les textes français appelaient les cinq capillaires, groupe de fougères d’aspect délicat qui réunissait aussi Asplenium trichomanes, Asplenium ceterach, Asplenium scolopendrium et Polypodium vulgare. De cet ensemble dérivait le sirop de capillaire, préparation commerciale qui a figuré pendant trois siècles dans les catalogues des apothicaireries françaises et anglaises et qui a fini par perdre tout lien avec la plante: au dix-neuvième siècle, le nom désignait déjà souvent un sirop aromatisé sans le moindre contenu de capillaire, vendu comme boisson.
Hors d’Europe, le dossier ethnographique est tout aussi vaste. Dans la tradition médicale chinoise, l’espèce porte le nom tie xian jue, écrit 铁线蕨, littéralement fougère au fil de fer, en référence aux pétioles noirs, et elle a été recensée parmi les plantes employées dans les préparations de la pharmacopée traditionnelle. En Inde, où on l’appelle hansraj, elle a intégré le répertoire ayurvédique et figuré dans des formulations destinées aux cheveux et à la peau. Les communautés navajos du sud-ouest nord-américain employaient des infusions de la plante contre les piqûres d’insectes, selon des relevés ethnobotaniques du vingtième siècle, et la médecine traditionnelle iranienne l’associait au traitement de la jaunisse.
Au Brésil, le capillaire est arrivé par la voie ornementale portugaise et s’est installé dans la culture domestique avec un rôle qui n’a guère à voir avec la thérapeutique. La plante est traditionnellement associée à la protection spirituelle de la maison et occupe vérandas, fenêtres et avant-toits comme gardienne symbolique contre l’envie, présence qui en a fait l’un des pots les plus reconnaissables de la véranda brésilienne. Le soin exigeant qu’elle impose a nourri un répertoire propre de savoirs domestiques transmis oralement de génération en génération, et dire de quelqu’un qu’il a la main pour le capillaire fonctionne encore comme un compliment de jardinage.
Que l’on note, pour une lecture correcte de tout ce qui précède, qu’il s’agit d’histoire culturelle. Rien ici ne décrit une pratique actuelle ni ne soutient une quelconque attribution d’effet.
Conservation
Adiantum capillus-veneris est évaluée en Préoccupation mineure, catégorie LC, sur la Liste rouge de l’UICN, résultat cohérent avec sa répartition cosmopolite, avec l’effectif total élevé et avec l’absence de déclin global détectable. L’espèce ne figure dans aucune annexe de la CITES.
Ce tableau global rassurant coexiste toutefois avec une fragilité locale marquée, et c’est là l’information utile à qui travaille sur l’espèce à l’échelle régionale. Les populations occupent des taches d’habitat minuscules et isolées, chacune dépendant d’une source ou d’un affleurement particulier, si bien qu’une seule intervention ponctuelle peut anéantir une population entière sans le moindre effet perceptible sur le statut global. Les principales menaces documentées sont le captage et la canalisation des sources, le drainage des zones humides, la destruction ou le revêtement des parois rocheuses lors de travaux d’infrastructure, la contamination des eaux d’infiltration par des effluents et des produits agrochimiques et la cueillette de frondes dans les populations sauvages à des fins commerciales.
Plusieurs pays européens inscrivent l’espèce sur des listes régionales de protection ou de vigilance, surtout aux limites septentrionales de son aire, où les populations sont petites et périphériques. Le réchauffement et la baisse de la disponibilité en eau dans le bassin méditerranéen constituent une pression supplémentaire sur ces mêmes populations de bordure, qui vivent déjà à la limite de leur tolérance thermique et hydrique. Au Brésil, n’étant pas considérée comme indigène, l’espèce ne reçoit aucun statut de protection spécifique.
Curiosités
- Le nom du genre est une description physique vérifiable et non une métaphore poétique. Une fronde plongée dans l’eau puis retirée ressort entièrement sèche, parce que la cire épicuticulaire empêche la lame d’eau d’adhérer au tissu. Théophraste a consigné l’observation il y a plus de vingt-trois siècles.
- Il existe des populations de l’espèce bien au-delà de sa bande climatique naturelle, dans le Dakota du Sud et en Colombie-Britannique, qui survivent exclusivement autour de sources chaudes réchauffant le substrat et maintenant l’air saturé pendant l’hiver.
- Le capillaire est l’un des organismes modèles historiques de la biologie du développement végétal. Parce qu’il germe vite, forme des gamétophytes à grandes cellules transparentes et répond de façon prévisible à des longueurs d’onde précises, il est devenu un matériel standard pour les études de photomorphogenèse et de réponse à la lumière rouge chez les fougères.
- Le sirop de capillaire a fini par survivre à l’ingrédient qui lui a donné son nom. À partir du dix-neuvième siècle, une bonne part du produit vendu sous cette étiquette en France et en Angleterre était un sirop aromatisé à la fleur d’oranger, sans aucun matériel végétal de la plante, et le terme a définitivement migré de l’officine vers la confiserie.
- Malgré son allure délicate, les colonies installées sur des parois rocheuses peuvent persister des décennies ou des siècles au même endroit, s’étendant lentement par ramification du rhizome, tant que la source qui les alimente continue de couler.
Avertissement: ce contenu est informatif et ne remplace pas l’avis d’un professionnel de santé. Consultez un médecin ou un phytothérapeute avant d’utiliser des plantes médicinales, notamment pendant la grossesse, l’allaitement ou en cas de prise de médicaments.
Références et Études Scientifiques
Voir les 12 Références Citées
Études Scientifiques Évaluées par les Pairs (6)
- DOI2016 PPG I (Pteridophyte Phylogeny Group). A community-derived classification for extant lycophytes and ferns. Journal of Systematics and Evolution, 54(6), 563-603. 2016. ↗
- DOI2004 Pryer, K. M., Schuettpelz, E., Wolf, P. G., Schneider, H., Smith, A. R., Cranfill, R. Phylogeny and evolution of ferns (monilophytes) with a focus on the early leptosporangiate divergences. American Journal of Botany, 91(10), 1582-1598. 2004. ↗
- DOI1999 Banks, J. A. Gametophyte development in ferns. Annual Review of Plant Physiology and Plant Molecular Biology, 50, 163-186. 1999. ↗
- DOI2013 Ito, M. Studies on the behavior of meiotic protoplasts and the development of Adiantum capillus-veneris: an experimental system to study fern development. Journal of Systematics and Evolution, 51(1), 12-26. 2013. ↗
- DOI2001 Reddy, V. L. N., Ravikanth, V., Rao, T. P., Diwan, P. V., Venkateswarlu, Y. A new triterpenoid from the fern Adiantum capillus-veneris. Chemical and Pharmaceutical Bulletin, 49(10), 1348-1351. 2001. ↗
- DOI2015 Prado, J., Sylvestre, L. S., Labiak, P. H., et al. Diversity of ferns and lycophytes in Brazil. Rodriguésia, 66(4), 1073-1083. 2015. ↗
Lectures Complémentaires (6)
- International Plant Names Index. Adiantum capillus-veneris L., Sp. Pl. 2: 1096 (1753). ID 325030-2. Royal Botanic Gardens Kew, Harvard University Herbaria et Australian National Herbarium. ↗
- Plants of the World Online. Adiantum capillus-veneris L. Royal Botanic Gardens, Kew. ↗
- UICN. Adiantum capillus-veneris. The IUCN Red List of Threatened Species, catégorie Préoccupation mineure (LC). ↗
- Flora e Funga do Brasil. Adiantum capillus-veneris L. Jardin botanique de Rio de Janeiro. ↗
- 1993 Tutin, T. G., Heywood, V. H., Burges, N. A., et al. (dir.) Flora Europaea, vol. 1: Psilotaceae to Platanaceae. 2e éd. Cambridge University Press, 1993.
- 1993 Flora of North America Editorial Committee (dir.) Flora of North America North of Mexico, vol. 2: Pteridophytes and Gymnosperms. Oxford University Press, 1993.