Adiantum capillus-veneris es un helecho rizomatoso de la familia Pteridaceae, reconocible a distancia por el contraste entre las pínnulas de un verde claro casi translúcido y los peciolos negros y lustrosos que las sostienen. Esa imagen le valió a la especie el nombre de cabello de Venus en casi todas las lenguas europeas, mientras que en el ámbito hispánico se consagró el de culantrillo de pozo, aplicado por extensión a buena parte del género. Pocas plantas logran parecer tan frágiles y resistir tanto: la misma fronde que se deshace al tacto lleva milenios colonizando paredones calcáreos expuestos al viento mediterráneo.
La distribución de la especie figura entre las más amplias de todos los helechos. Plants of the World Online clasifica su área nativa sencillamente como cosmopolita, lo que significa presencia natural en regiones templadas cálidas y tropicales húmedas de todos los continentes salvo la Antártida. Esa amplitud no procede de una tolerancia generalista, sino de lo contrario: el culantrillo depende de un microhábitat muy concreto, la roca permanentemente alimentada por agua de infiltración y resguardada de la luz directa, que existe de forma dispersa en casi todo el planeta. Donde un manantial escurre sobre roca caliza, tiene sentido buscarlo.
El interés botánico de la especie va mucho más allá de la jardinería. Por germinar con facilidad, completar su ciclo en unos cien días en laboratorio y responder de manera previsible a los estímulos luminosos, Adiantum capillus-veneris se convirtió en uno de los organismos modelo clásicos del estudio del desarrollo de los helechos, con una literatura acumulada desde el siglo XIX sobre germinación de esporas, formación del gametófito y fotomorfogénesis. Esta ficha reúne taxonomía, morfología, ecología, cultivo, fitoquímica descriptiva, historia cultural y conservación de la especie.
Taxonomía
Carl von Linné describió la especie en 1753, en la primera edición de Species Plantarum, y el nombre ha permanecido estable desde entonces, sin recombinaciones genéricas relevantes. El International Plant Names Index registra el protólogo en Sp. Pl. 2: 1096, publicado el 1 de mayo de 1753, bajo el identificador 325030-2. Plants of the World Online mantiene el binomio como nombre aceptado.
- Reino: Plantae
- División: Polypodiophyta
- Clase: Polypodiopsida
- Orden: Polypodiales
- Familia: Pteridaceae
- Subfamilia: Vittarioideae
- Género: Adiantum L.
- Especie: Adiantum capillus-veneris L., 1753
Conviene una aclaración sobre la familia, porque las fuentes parecen discrepar. El IPNI indexa la especie bajo Adiantaceae, siguiendo la tradición nomenclatural que separaba los culantrillos en una familia propia. La clasificación del Pteridophyte Phylogeny Group, publicada en 2016 y adoptada hoy por la mayoría de las floras y por el propio Kew, incluye Adiantum en Pteridaceae, dentro de la subfamilia Vittarioideae, donde el género aparece como grupo hermano de los vitarioides de hoja simple. Ambas grafías apuntan a la misma planta, y Pteridaceae es la lectura vigente.
Sinónimos
La sinonimia de la especie es extensa a causa de la variación morfológica entre poblaciones distantes, que llevó a los botánicos de los siglos XIX y XX a describir formas locales como táxones independientes. Entre los nombres hoy tratados como sinónimos figuran los siguientes:
- Adiantum capillus-veneris f. dissectum (M.Martens & Galeotti) Ching
- Adiantum capillus-veneris f. rimicola (Sloss.) Fernald
- Adiantum capillus-veneris var. modestum (Underw.) Fernald
- Adiantum capillus-veneris var. protrusum Fernald
- Adiantum capillus-veneris var. trifidum (Willd. ex Bolle) Milde
- Adiantum cuneifolium Stokes
- Adiantum emarginatum Bory ex Willd.
- Adiantum fumarioides Willd.
Ninguna de las variedades anteriores se reconoce como táxon válido en el tratamiento actual de Kew, aunque los epítetos sigan circulando en catálogos hortícolas y en la literatura regional más antigua. Quien consulte floras publicadas antes de los años dos mil encontrará con frecuencia la var. protrusum aplicada a material norteamericano y la var. trifidum a material del Mediterráneo occidental.
Etimología
El nombre del género procede del griego adianton, formado por el prefijo privativo a unido al verbo diainein, mojar, y significa literalmente aquello que no se moja. La elección describe un fenómeno observable: la cutícula de las pínnulas es fuertemente hidrófoba, y una fronde sumergida emerge seca, con el agua deslizándose en gotas enteras sin adherirse al tejido. Teofrasto ya empleaba el término en el siglo IV antes de la era común.
El epíteto capillus-veneris se traduce como cabello de Venus y alude a los peciolos finos, negros y brillantes, que recuerdan mechones de pelo húmedo. La construcción del epíteto en dos palabras unidas por guion es una supervivencia de las frases descriptivas prelinneanas que Linné conservó en algunos casos, y la grafía con guion es la forma correcta según el Código Internacional de Nomenclatura.
Descripción Morfológica
Helecho herbáceo perenne, de hábito rizomatoso y cespitoso, que forma matas densas o tapices laxos según la inclinación y la fisuración del sustrato. La altura habitual se sitúa entre 15 y 45 centímetros, con ejemplares de hasta 60 centímetros en refugios tropicales bien sombreados y permanentemente húmedos. El crecimiento es lento y continuo, sin período de reposo marcado en las poblaciones tropicales, y la expansión de la colonia depende mucho más de la ramificación del rizoma que del establecimiento de nuevos esporófitos.
Hojas
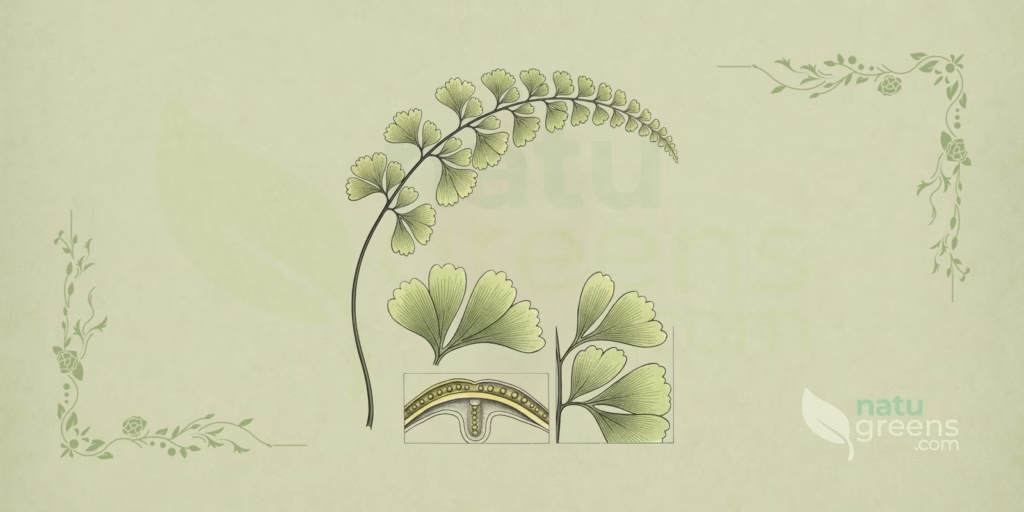
Las frondes constituyen la estructura diagnóstica de la especie y concentran prácticamente todos los caracteres útiles para la identificación en campo. Emergen a intervalos irregulares a lo largo del rizoma, con vernación circinada, y se despliegan progresivamente de la base al ápice a lo largo de varias semanas.
- Color: verde claro vivo en la cara adaxial, algo más pálido en la abaxial
- Lámina: ovado-triangular, de 6 a 25 centímetros de largo por 8 a 16 de ancho, bipinnada en la porción inferior y pinnada hacia el ápice
- Longitud total: 15 a 45 centímetros incluido el peciolo, excepcionalmente hasta 60 centímetros
- Peciolo: 5 a 15 centímetros, negro purpúreo a castaño oscuro, cilíndrico, liso y brillante
- Pínnulas: flabeliformes, cuneadas en la base, de 12 a 20 por 10 a 15 milímetros, con el margen superior redondeado y dividido en 2 a 4 lóbulos poco profundos
- Raquis: negro y lustroso, levemente flexuoso, ramificado, con peciólulos capilares que articulan cada pínnula
- Textura: membranácea, translúcida al trasluz, con cutícula hidrófoba
Los soros se disponen en la cara abaxial de las pínnulas fértiles, de 3 a 10 por pínnula, ocupando el margen superior. No hay indusio verdadero: la protección de los esporangios corresponde a un pseudoindusio formado por el pliegue del propio margen de la pínnula sobre el tejido esporógeno. Ese pseudoindusio es verde amarillento mientras maduran los esporangios y oscurece hasta castaño en la madurez, lo que da a las frondes fértiles un borde superior más oscuro, visible a simple vista. Las esporas son triletes, de 40 a 50 micrómetros de diámetro, con superficie rugulada.
Flores
La especie no produce flores. Como todo helecho, pertenece a un linaje de plantas vasculares sin semillas que divergió de las espermatófitas mucho antes de la aparición de la flor, y su reproducción sexual ocurre en una generación independiente y microscópica, el gametófito, descrita en el apartado de fenología. Las estructuras que algunos textos de jardinería llaman flores corresponden en realidad a los soros del envés de las frondes.
Frutos y Semillas
Tampoco hay frutos ni semillas, por la misma razón. La unidad de dispersión del culantrillo es la espora, una célula haploide de pared resistente producida por millares dentro de cada esporangio. El esporangio posee un anillo de células de pared desigualmente engrosada que funciona como catapulta: a medida que pierde agua, el anillo se contrae, rompe la cápsula y proyecta las esporas a unos centímetros de distancia, lo bastante para que las corrientes de aire asuman el transporte a partir de ahí.
Rizoma y Raíces
El rizoma es corto, rastrero y ramificado, de pocos milímetros de grosor, revestido de escamas lanceoladas castañas de margen entero y de unos 2 a 4 milímetros de longitud. En corte anatómico, los rizomas jóvenes presentan sifonostela anfifloica, y los maduros exhiben la estructura tubular perforada característica de los helechos polipodiales, carácter empleado en estudios comparativos de anatomía del grupo. Las raíces son adventicias, fasciculadas, finas y oscuras, de 5 a 15 centímetros, y se anclan en grietas, musgos y materia orgánica retenida en la roca, formando un sistema superficial que explora un volumen de sustrato muy reducido.
Distribución y Hábitat
Plants of the World Online describe el área nativa de la especie como cosmopolita, situación rara entre los helechos y compartida por muy pocas plantas vasculares. La presencia natural abarca toda la cuenca mediterránea, la Macaronesia, el norte y el este de África, Oriente Medio, el subcontinente indio, Asia oriental hasta Japón, el sudeste asiático, Australia, Nueva Zelanda, la mitad sur de Estados Unidos, México, América Central, el Caribe y buena parte de Sudamérica. En la Europa atlántica alcanza puntos abrigados del sur de Inglaterra, de Gales y de Irlanda, donde vive en el límite térmico de su tolerancia.
El hábitat resulta notablemente uniforme pese a esa amplitud geográfica. El culantrillo ocupa rocas con escurrimiento permanente de agua, sobre todo calizas y margas, en bocas de cueva, paredones de cascada, bordes de manantial, pozos, acueductos y muros antiguos con infiltración. La combinación exigida reúne humedad atmosférica alta y constante, luz difusa y débil, sustrato firme y alcalino y ausencia de encharcamiento radicular, ya que la planta prefiere la roca mojada al suelo saturado. Esa dependencia de la caliza es el principal factor limitante de su distribución a escala regional y explica por qué la especie puede faltar durante cientos de kilómetros dentro de un área climáticamente adecuada.
La amplitud altitudinal va del nivel del mar hasta unos 1500 metros en Europa, con registros de hasta 2800 metros en zonas tropicales de Asia. El clima preferente es el templado cálido a subtropical húmedo, de inviernos suaves, y la especie es sensible a las heladas, lo que restringe las poblaciones de latitud alta a microclimas térmicamente amortiguados. Dos poblaciones disyuntas muy al norte de la franja continua, en Dakota del Sur y en la Columbia Británica, sobreviven precisamente por estar asociadas a fuentes termales que mantienen la temperatura del sustrato por encima de lo que el entorno permitiría.
En Brasil, la situación exige cautela al leer las fuentes. Los inventarios recientes de Pteridaceae brasileñas excluyen a Adiantum capillus-veneris de los análisis de distribución natural por considerarla introducida o cultivada en el territorio, lo que significa que los registros nacionales deben interpretarse como naturalización a partir del cultivo ornamental y no como presencia nativa. La planta escapa con facilidad hacia muros húmedos, canaletas de jardín y taludes sombreados de áreas urbanas del sudeste y del sur, comportamiento documentado también en varias ciudades de clima mediterráneo. No consta que la especie se comporte como invasora agresiva en ambiente natural, probablemente porque el microhábitat que requiere es escaso y suele estar ya ocupado por pteridófitos nativos.
Cultivo
El culantrillo tiene fama merecida de planta difícil en el interior de una casa, y la razón es casi siempre la misma: la humedad relativa del aire. Todo lo demás del manejo es sencillo, y una planta instalada en un lugar adecuado prospera durante décadas con una intervención mínima. El error clásico consiste en responder a la desecación con más agua en el sustrato, lo que no hace sino cambiar la muerte por resecamiento por la muerte por pudrición del rizoma.
Las exigencias básicas son las siguientes:
- Humedad del aire: 60 a 80 por ciento, el factor crítico. Los ambientes con aire acondicionado o calefacción central resultan hostiles a la especie
- Luz: sombra parcial a sombra plena, con luz difusa. La exposición directa al sol quema las pínnulas en pocas horas
- pH: neutro a alcalino, entre 6,5 y 8,0, lo que distingue a la especie de la mayoría de los helechos de cultivo, adaptados a sustratos ácidos
- Sustrato: poroso y bien drenado, rico en materia orgánica, con adición de material calcáreo como caliza dolomítica o grava caliza
- Temperatura: franja cómoda entre 16 y 25 grados, sin exposición a heladas y sin descensos prolongados por debajo de 12 grados
- Ventilación: circulación de aire suave, suficiente para inhibir hongos, sin corrientes directas que deshidraten las frondes
La propagación por división de mata es el método habitual y el más rápido. Se divide la planta adulta a comienzos de la primavera, manteniendo en cada porción un segmento de rizoma con raíces y algunas frondes, y se replanta de inmediato en sustrato húmedo, dejando el nuevo ejemplar en un lugar más sombreado durante algunas semanas hasta que reanude el crecimiento. Los fragmentos de rizoma con yemas viables también enraízan en sustrato templado y húmedo.
La propagación por esporas es más lenta, pero es la vía que produce mayor número de plantas y la única que genera variabilidad genética. Se recogen frondes fértiles cuando el pseudoindusio ya está castaño oscuro y se dejan sobre papel liso en ambiente seco durante uno o dos días para que liberen las esporas, que luego se siembran sobre sustrato esterilizado y húmedo en un recipiente cerrado y translúcido. La germinación ocurre en pocos días en condiciones favorables, los prótalos cordiformes se hacen visibles al cabo de algunas semanas y los primeros esporófitos trasplantables exigen una paciencia de varios meses a más de un año.
Entre los problemas fitosanitarios recurrentes están las cochinillas, que se fijan en la base de los peciolos y en el rizoma; los nematodos foliares del género Aphelenchoides, responsables de manchas intervenales oscuras y diseminados por el riego por aspersión; y las babosas y caracoles en cultivo exterior. Entre las enfermedades, Botrytis cinerea avanza en ambientes muy húmedos y mal ventilados, y Rhizoctonia y Pythium atacan rizomas y plántulas en sustrato encharcado. Los trastornos abióticos suelen confundirse con enfermedad: las puntas castañas de las pínnulas indican aire seco o agua con alto cloro residual, y el amarilleo generalizado con bordes quemados apunta a un exceso de luz.
No existe una cosecha agrícola relevante de la especie. Lo que sí existe es la recolección de frondes en poblaciones silvestres para el comercio ornamental y para mercados tradicionales de algunas regiones del Mediterráneo y de Asia, práctica que presiona a las poblaciones locales y que el apartado de conservación retoma más adelante.
Fenología
La fenología de un helecho se organiza en torno a la alternancia de generaciones y no al calendario floral. La generación visible, el esporófito, produce esporangios en frondes fértiles que maduran sobre todo entre el final de la primavera y el verano, lo que corresponde a junio y agosto en el hemisferio norte y a noviembre y marzo en las poblaciones del hemisferio sur. En climas tropicales húmedos sin estación seca marcada, la producción de esporas puede ser prácticamente continua a lo largo del año.
No hay polinizadores ni síndrome de polinización, puesto que no existen flores. La dispersión es anemócora: el anillo del esporangio expulsa las esporas por desecación, y a partir de ahí las corrientes de aire asumen el transporte, con un alcance que va de unos centímetros a distancias intercontinentales cuando las esporas alcanzan capas altas de la atmósfera. Esa capacidad de dispersión a larga distancia es la explicación más aceptada tanto para la distribución cosmopolita de la especie como para el hecho de que poblaciones muy aisladas presenten una diferenciación morfológica baja.
La espora que encuentra sustrato húmedo e iluminado germina en pocos días y da origen a un gametófito de vida libre, verde y laminar, que se desarrolla hasta la forma cordiforme característica en algunas semanas, con una docena de rizoides que lo fijan al sustrato. El gametófito es monoico y produce anteridios en la cara ventral, entre los rizoides, y arquegonios cerca de la escotadura apical. La fecundación exige agua líquida: los anterozoides flagelados nadan por la película de humedad que recubre el prótalo hasta el arquegonio, lo que convierte la lluvia o el goteo constante en condición obligatoria para la reproducción sexual y ayuda a explicar la fidelidad de la especie a las rocas con escurrimiento permanente. Del cigoto se desarrolla el nuevo esporófito, y el ciclo completo puede cerrarse en unos cien días en condiciones controladas de laboratorio, plazo bastante más largo en el campo.
Especies Relacionadas y Confusiones
El género Adiantum reúne cerca de dos centenares de especies distribuidas sobre todo por trópicos y subtrópicos, y varias de ellas circulan en el comercio ornamental bajo el mismo nombre popular de culantrillo. La confusión más frecuente en Brasil ni siquiera implica una identificación difícil, sino un problema de etiquetado: buena parte de los culantrillos vendidos en las floristerías brasileñas es Adiantum raddianum, especie nativa de aquel país, comercializada con una etiqueta genérica.
- Adiantum aethiopicum L.: especie africana y australasiática de pínnulas menores y frondes más erectas, con rizoma largamente rastrero que forma colonias abiertas en lugar de matas compactas
- Adiantum caudatum L.: frondes simplemente pinnadas, largas y arqueadas, que enraízan por el ápice y forman propágulos, carácter ausente en A. capillus-veneris
- Adiantum pedatum L.: lámina pedada, con los segmentos partiendo en abanico desde el ápice del peciolo como los dedos de una mano abierta, arquitectura inconfundible y sin paralelo en la especie de esta ficha
- Adiantum raddianum C.Presl: pínnulas menores, más numerosas y densamente dispuestas, frondes más compactas y tolerancia a sustratos ácidos, al contrario de la preferencia calcárea de A. capillus-veneris
- Adiantum reniforme L.: lámina simple y reniforme, sin división, restringida a la Macaronesia y a unas pocas localidades asiáticas
Fuera del género, dos confusiones merecen atención. Asplenium trichomanes comparte el peciolo oscuro y el hábito rupícola en rocas húmedas, pero tiene lámina simplemente pinnada, con pínnulas oblongas dispuestas en pares regulares a lo largo de un raquis no ramificado, un diseño de espina de pescado que nada tiene del raquis dividido y las pínnulas en abanico del culantrillo. Las especies de Davallia, también cultivadas en maceta, exhiben rizomas aéreos gruesos y densamente cubiertos de escamas peludas, expuestos sobre el borde del recipiente, estructura que Adiantum nunca presenta.
No hay sosias tóxicos relevantes para esta especie. Los helechos con los que puede confundirse en campo pertenecen a géneros sin historial de toxicidad aguda documentada, situación distinta de la que se observa entre las plantas con flor, donde la confusión de identidad puede tener consecuencias graves.
Fitoquímica del Adiantum
La composición química de Adiantum capillus-veneris está bien documentada, y el género en conjunto figura entre los helechos más investigados desde el punto de vista de la química de productos naturales. La descripción que sigue es estrictamente composicional y no implica efecto alguno sobre los organismos.
Los triterpenoides constituyen la clase más característica. La adiantona es un triterpenoide de amplia presencia en el género, hallado en la mayoría de las especies examinadas químicamente, y de las frondes de A. capillus-veneris se aislaron además isoadiantona, isoadiantol B, filiceno y derivados de filicano como el 3,4-dihidroxifilicano y el 3-metoxi-4-hidroxifilicano. El filiceno se concentra sobre todo en la cera epicuticular, capa responsable de la repelencia al agua ya mencionada en la morfología.
Entre los flavonoides, la fracción de acetato de etilo de las frondes rinde quercetina, quercetina-3-O-glucósido, que recibe también el nombre de isoquercitrina, y quercetina-3-O-rutinósido, conocida como rutina. El kaempferol y su glucósido astragalina se registraron igualmente en el material foliar. A ellos se suman ácidos fenólicos como el gálico y derivados hidroxicinámicos del ácido cafeico, además de proantocianidinas, que son taninos condensados.
Los análisis de perfil más amplio describen también triacilgliceroles, fosfolípidos, carotenoides, clorofilas, fitosteroles y compuestos orgánicos volátiles, con distribución desigual entre los órganos. La concentración de los metabolitos secundarios es mayor en las frondes, en especial en los tejidos jóvenes, y menor en el rizoma y en las raíces. Cabe un apunte de orden ambiental: la especie acumula metales pesados cuando crece en sustrato contaminado, y se han detectado niveles medibles de esos elementos en material recogido cerca de fuentes de contaminación, lo que refleja la composición del sitio de recolección y no un constituyente propio de la planta.
Historia y Etnobotánica
Pocos helechos acumulan un registro documental tan largo. Dioscórides describió la planta en el siglo I de la era común, en De Materia Medica, bajo el nombre griego adianton, y a partir de ahí la especie atravesó toda la tradición herbolaria europea, apareciendo en Plinio, en los herbarios medievales y en las farmacopeas renacentistas. Los autores antiguos asociaban la planta al mundo subterráneo y a Plutón, probablemente por su presencia en las bocas de cueva.
En la farmacia europea de los siglos XVI a XIX, el culantrillo integraba el conjunto que los textos franceses llamaban las cinco capilares, agrupación de helechos de aspecto delicado que reunía también a Asplenium trichomanes, Asplenium ceterach, Asplenium scolopendrium y Polypodium vulgare. De ese conjunto derivaba el sirop de capillaire, preparación comercial que figuró durante tres siglos en los catálogos de las boticas francesas e inglesas y que acabó perdiendo el vínculo con la planta: en el siglo XIX el nombre designaba ya con frecuencia un jarabe aromatizado sin contenido alguno de culantrillo, vendido como bebida.
Fuera de Europa el registro etnográfico es igualmente amplio. En la tradición médica china la especie recibe el nombre tie xian jue, escrito 铁线蕨, literalmente helecho de hilo de hierro, en referencia a los peciolos negros, y quedó recogida entre las plantas empleadas en preparaciones de la farmacopea tradicional. En la India, donde se la llama hansraj, integró el repertorio ayurvédico y figuró en formulaciones destinadas al cabello y a la piel. Las comunidades navajo del suroeste norteamericano empleaban infusiones de la planta contra las picaduras de insecto, según registros etnobotánicos del siglo XX, y la medicina tradicional iraní la asociaba al tratamiento de la ictericia.
En Brasil el culantrillo llegó por la vía ornamental portuguesa y se fijó en la cultura doméstica con un papel que poco tiene que ver con la terapéutica. La planta se asocia tradicionalmente a la protección espiritual del hogar y ocupa galerías, ventanas y aleros como guardiana simbólica contra la envidia, presencia que la convirtió en una de las macetas más reconocibles de la veranda brasileña. El cuidado exigente que impone alimentó un repertorio propio de saberes domésticos transmitido oralmente entre generaciones, y decir que alguien tiene buena mano para el culantrillo sigue funcionando como elogio de jardinería.
Conviene dejar constancia, para la lectura correcta de todo lo anterior, de que se trata de historia cultural. Nada de lo dicho describe una práctica actual ni sostiene atribución alguna de efecto.
Conservación
Adiantum capillus-veneris está evaluada como Preocupación Menor, categoría LC, en la Lista Roja de la UICN, resultado coherente con su distribución cosmopolita, con el elevado tamaño poblacional total y con la ausencia de un declive global detectable. La especie no consta en ningún apéndice de CITES.
Ese panorama global tranquilo convive, sin embargo, con una fragilidad local acentuada, y esa es la información relevante para quien trabaja con la especie a escala regional. Las poblaciones ocupan manchas de hábitat minúsculas y aisladas, cada una dependiente de un manantial o de un afloramiento concreto, de modo que una sola intervención puntual puede extinguir una población entera sin efecto perceptible alguno en el estatus global. Las principales amenazas documentadas son la captación y la canalización de manantiales, el drenaje de zonas húmedas, la destrucción o el revestimiento de paredones rocosos en obras de infraestructura, la contaminación de las aguas de infiltración por efluentes y agroquímicos y la recolección de frondes en poblaciones silvestres para el comercio.
Varios países europeos incluyen la especie en listas regionales de protección o de atención, sobre todo en los límites septentrionales de su distribución, donde las poblaciones son pequeñas y periféricas. El calentamiento y la reducción de la disponibilidad hídrica en la cuenca mediterránea figuran como presión adicional sobre precisamente esas poblaciones de borde, que ya viven en el límite de su tolerancia térmica e hídrica. En Brasil, al no ser considerada nativa, la especie no recibe un estatus de protección específico.
Curiosidades
- El nombre del género es una descripción física verificable y no una metáfora poética. Una fronde sumergida en agua y retirada emerge completamente seca, porque la cera epicuticular impide que la lámina de agua se adhiera al tejido. Teofrasto registró la observación hace más de veintitrés siglos.
- Existen poblaciones de la especie muy más allá de su franja climática natural, en Dakota del Sur y en la Columbia Británica, que sobreviven exclusivamente en el entorno de fuentes termales que calientan el sustrato y mantienen el aire saturado durante el invierno.
- El culantrillo es uno de los organismos modelo históricos de la biología del desarrollo vegetal. Por germinar rápido, formar gametófitos de células grandes y transparentes y responder de modo previsible a longitudes de onda específicas, se convirtió en material estándar para estudios de fotomorfogénesis y de respuesta a la luz roja en helechos.
- El sirop de capillaire acabó sobreviviendo al ingrediente que le dio nombre. A partir del siglo XIX, buena parte del producto vendido bajo ese rótulo en Francia y en Inglaterra era un jarabe aromatizado de azahar, sin material alguno de la planta, y el término migró definitivamente de la botica a la confitería.
- Pese al porte delicado, las colonias establecidas sobre paredones rocosos pueden persistir durante décadas o siglos en el mismo punto, expandiéndose lentamente por la ramificación del rizoma, siempre que el manantial que las alimenta siga corriendo.
Aviso: este contenido es informativo y no sustituye la orientación de un profesional de la salud. Consulte a un médico o fitoterapeuta antes de usar plantas medicinales, especialmente durante el embarazo, la lactancia o si toma medicamentos.
Referencias y Estudios Científicos
Ver Todas las 12 Referencias Citadas
Estudios Científicos Revisados por Pares (6)
- DOI2016 PPG I (Pteridophyte Phylogeny Group). A community-derived classification for extant lycophytes and ferns. Journal of Systematics and Evolution, 54(6), 563-603. 2016. ↗
- DOI2004 Pryer, K. M., Schuettpelz, E., Wolf, P. G., Schneider, H., Smith, A. R., Cranfill, R. Phylogeny and evolution of ferns (monilophytes) with a focus on the early leptosporangiate divergences. American Journal of Botany, 91(10), 1582-1598. 2004. ↗
- DOI1999 Banks, J. A. Gametophyte development in ferns. Annual Review of Plant Physiology and Plant Molecular Biology, 50, 163-186. 1999. ↗
- DOI2013 Ito, M. Studies on the behavior of meiotic protoplasts and the development of Adiantum capillus-veneris: an experimental system to study fern development. Journal of Systematics and Evolution, 51(1), 12-26. 2013. ↗
- DOI2001 Reddy, V. L. N., Ravikanth, V., Rao, T. P., Diwan, P. V., Venkateswarlu, Y. A new triterpenoid from the fern Adiantum capillus-veneris. Chemical and Pharmaceutical Bulletin, 49(10), 1348-1351. 2001. ↗
- DOI2015 Prado, J., Sylvestre, L. S., Labiak, P. H., et al. Diversity of ferns and lycophytes in Brazil. Rodriguésia, 66(4), 1073-1083. 2015. ↗
Lecturas Complementarias (6)
- International Plant Names Index. Adiantum capillus-veneris L., Sp. Pl. 2: 1096 (1753). ID 325030-2. Royal Botanic Gardens Kew, Harvard University Herbaria y Australian National Herbarium. ↗
- Plants of the World Online. Adiantum capillus-veneris L. Royal Botanic Gardens, Kew. ↗
- UICN. Adiantum capillus-veneris. The IUCN Red List of Threatened Species, categoría Preocupación Menor (LC). ↗
- Flora e Funga do Brasil. Adiantum capillus-veneris L. Jardín Botánico de Río de Janeiro. ↗
- 1993 Tutin, T. G., Heywood, V. H., Burges, N. A., et al. (eds.) Flora Europaea, vol. 1: Psilotaceae to Platanaceae. 2.ª ed. Cambridge University Press, 1993.
- 1993 Flora of North America Editorial Committee (eds.) Flora of North America North of Mexico, vol. 2: Pteridophytes and Gymnosperms. Oxford University Press, 1993.