Le Zea mays occupe une place singulière parmi les plantes cultivées, car aucune autre graminée n’a été remodelée aussi profondément par la sélection humaine au point de perdre la capacité de se reproduire seule. Il s’agit d’une herbacée annuelle de grande taille, monoïque, appartenant à la famille des Poaceae et originaire de Mésoamérique, dont l’épi enveloppé de bractées dépend entièrement de quelqu’un qui l’égrène et le sème pour que l’espèce continue d’exister.
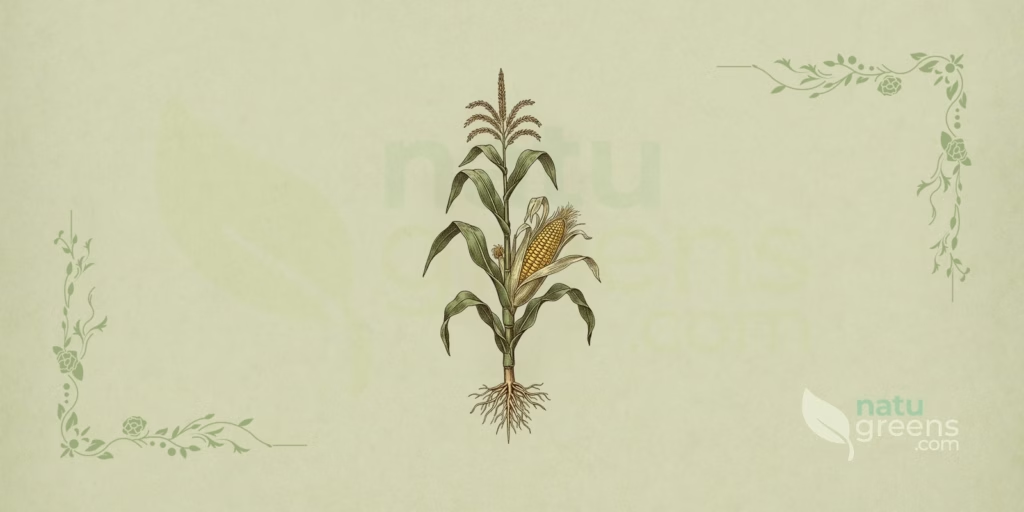
La famille des Poaceae réunit environ 780 genres et plus de onze mille espèces, parmi lesquelles la canne à sucre, le blé et le riz. Au sein de cette diversité considérable, le maïs se distingue par une architecture reproductive sans équivalent : les fleurs mâles occupent le sommet de la tige, rassemblées en une panicule ouverte que les agriculteurs appellent la panicule mâle, tandis que les fleurs femelles se concentrent dans des épis latéraux protégés par des couches de spathes. Les stigmates longs et soyeux qui émergent de la pointe de l’épi complètent un ensemble de caractères qui rend l’identification immédiate, même pour qui n’a jamais ouvert une clé botanique.
Le profil qui suit porte sur la plante elle-même. Il rassemble la position taxonomique confirmée dans les bases internationales, la morphologie qui la sépare des graminées voisines, le comportement phénologique au champ, la composition chimique décrite dans la littérature et la longue histoire de domestication qui a transformé une herbe mexicaine aux épis minuscules en la culture agricole au plus fort volume de la planète.
Taxonomie
Le nom accepté est Zea mays L., publié par Carl von Linné dans Species Plantarum (volume 2, page 971), en 1753. La consultation de l’International Plant Names Index confirme le binôme, l’auteur et la référence de publication originale, et Plants of the World Online maintient le même nom comme accepté, sans aucune proposition de recombinaison en cours. La classification hiérarchique complète est résumée ci-dessous.
- Règne : Plantae
- Division : Magnoliophyta (angiospermes)
- Classe : Liliopsida (monocotylédones)
- Ordre : Poales
- Famille : Poaceae Barnhart
- Sous-famille : Panicoideae
- Tribu : Andropogoneae
- Genre : Zea L., 1753
- Espèce : Zea mays L., 1753
Synonymes Acceptés
La synonymie de l’espèce est brève, ce à quoi l’on pouvait s’attendre d’une plante décrite tôt et toujours reconnue sous le même nom. Plants of the World Online enregistre cinq synonymes homotypiques et hétérotypiques.
- Mays americana Baumg.
- Mays zea Gaertn.
- Mayzea cerealis Raf.
- Thalysia mays (L.) Kuntze
- Zea segetalis Salisb.
Sous-espèces Acceptées
Trois sous-espèces sont aujourd’hui reconnues, et une seule correspond au maïs de culture. Les deux autres sont des téosintes, graminées sauvages mexicaines aux épillets endurcis longtemps traitées comme des plantes d’un autre genre.
- Zea mays subsp. huehuetenangensis (Iltis & Doebley) Doebley, du nord-ouest du Guatemala
- Zea mays subsp. mays, le maïs cultivé
- Zea mays subsp. parviglumis Iltis & Doebley, de la vallée du fleuve Balsas, au Mexique
Il vaut la peine de signaler une divergence active de circonscription : le téosinte du plateau central mexicain apparaît dans une bonne partie de la littérature agronomique sous le nom de Zea mays subsp. mexicana, mais Plants of the World Online l’élève au rang d’espèce à part entière, Zea mexicana (Schrad.) Kuntze. Qui consulte des sources d’époques différentes rencontrera les deux graphies, et aucune n’est fautive à l’intérieur du système qui l’adopte.
Étymologie
Le nom générique Zea vient du grec zeia, terme qui désignait une céréale cultivée dans l’Antiquité méditerranéenne, probablement un blé vêtu. Linné a réemployé le mot pour la plante américaine, geste courant dans la botanique du XVIIIe siècle, qui puisait dans le vocabulaire classique pour baptiser des espèces que les auteurs grecs n’avaient jamais vues. L’épithète mays a une origine tout autre : elle dérive de mahiz, nom que les peuples taïnos des Caraïbes donnaient à la plante, transmis au castillan sous la forme maíz et de là aux autres langues européennes.
Groupes Endospermiques
Au sein de la sous-espèce cultivée, la variation de l’albumen soutient une nomenclature horticole parallèle à la taxonomie formelle. Les groupes sont des catégories pratiques et non des taxons acceptés, et ils restent d’usage courant en sélection et dans le commerce des semences.
- À éclater : grain petit et vitreux, dont l’humidité interne provoque l’expansion sous l’effet de la chaleur
- Cireux : amidon composé presque uniquement d’amylopectine, base des amidons industriels
- Corné : albumen vitreux et résistant, prédominant au Brésil et en Argentine
- Denté : dépression caractéristique au sommet du grain, dominant dans la production commerciale
- Doux : mutations qui bloquent la conversion du sucre en amidon, consommé encore vert
- Farineux : albumen tendre et farineux, traditionnel dans les variétés andines
- Vêtu : chaque grain enveloppé de ses propres glumes, forme primitive sans culture commerciale
Description Morphologique
Le maïs est une herbacée annuelle dressée qui atteint de 1,5 à 4 mètres de hauteur, les variétés tropicales à cycle long dépassant les 5 mètres. Le port robuste repose sur une tige cylindrique et pleine, remplie de parenchyme médullaire, ce qui contredit l’image courante du chaume creux associée aux graminées en général. La plante est monoïque et présente des fleurs unisexuées séparées en inflorescences distinctes, condition qui la distingue de l’immense majorité des herbes.
Feuilles
Les feuilles sont alternes et distiques, c’est-à-dire disposées sur deux plans opposés le long de la tige, ce qui donne à la jeune plante une silhouette aplatie vue de dessus. Chaque feuille mesure de 50 à 120 centimètres de long sur 5 à 12 centimètres de large, avec un limbe lancéolé, un apex longuement effilé et une marge entière à légèrement ondulée. La nervation est parallèle, avec une nervure médiane blanchâtre et proéminente qui sert de caractère de terrain. La gaine entoure complètement la tige, à marges chevauchantes, et la ligule est membraneuse et courte, de 2 à 5 millimètres. Une plante adulte porte de 12 à 22 feuilles, nombre qui varie selon le cultivar et la durée du cycle.
Fleurs
La séparation spatiale des sexes est le trait le plus frappant de l’espèce. La panicule mâle est terminale et compte 10 à 25 rameaux latéraux, formée d’épillets portant deux fleurs staminées à trois anthères chacune, et une seule plante peut libérer des dizaines de millions de grains de pollen au fil de la période d’anthèse. L’épi, quant à lui, est une inflorescence axillaire insérée au tiers médian de la tige, enveloppée de bractées foliacées et porteuse de 200 à 1 000 fleurs pistillées organisées en rangs invariablement pairs, généralement de 8 à 24. Les stigmates forment les filaments de 10 à 30 centimètres connus sous le nom de soies, et chacun d’eux appartient à une fleur individuelle, de sorte que l’échec d’un seul filament à capter du pollen se traduit par un grain qui ne se forme pas.
Fruits et Graines
Le fruit est un caryopse, type caractéristique des Poaceae où le péricarpe fusionne avec le tégument de la graine et où l’ensemble se comporte comme une unité indéhiscente. Les grains mesurent de 5 à 15 millimètres et se disposent en rangs pairs sur la rafle, l’axe central ligneux qui soutient l’épi. La coloration parcourt une amplitude remarquable, du blanc et du jaune à l’orangé, au rouge, au violet, au bleu et au presque noir, selon la pigmentation du péricarpe et de la couche à aleurone. Le poids de mille grains se situe habituellement entre 250 et 400 grammes dans les types denté et corné, et un épi commercial moyen livre de 400 à 600 grains.
Racine et Tige
Le système racinaire est fasciculé et s’organise en trois ensembles fonctionnels successifs. Les racines séminales viennent en premier, d’origine embryonnaire, et soutiennent la plantule jusque vers le sixième stade foliaire, moment où elles perdent de l’importance. Les racines nodales naissent des nœuds souterrains à partir du troisième stade foliaire, s’étendent latéralement jusqu’à 1 mètre et descendent d’environ 1,5 mètre, assurant la quasi-totalité du système adulte. Enfin les racines adventives de soutien, dites racines échasses, émergent des nœuds inférieurs exposés et ancrent la plante dans le sol, fonction loin d’être triviale chez un végétal qui doit maintenir plusieurs mètres de biomasse debout sous le vent et la pluie. La tige présente des nœuds bien marqués et des entrenœuds qui s’allongent de façon inégale, plus courts à la base et progressivement plus longs vers la panicule mâle.
Répartition et Habitat
L’origine de l’espèce se limite au bassin du fleuve Balsas, dans l’actuel État mexicain de Guerrero, région au climat saisonnièrement sec où le téosinte ancestral se rencontre encore en populations naturelles. La sous-espèce cultivée, en revanche, n’a pas d’aire native au sens habituel du terme, car il s’agit d’un cultigène : elle n’existe que là où elle a été plantée. Depuis la Mésoamérique, la plante s’est répandue dans tout le continent américain avant l’arrivée des Européens, puis, après 1493, elle a gagné l’Europe, l’Afrique et l’Asie en quelques décennies.
Le maïs est aujourd’hui cultivé du niveau de la mer jusqu’à environ 3 800 mètres d’altitude dans les Andes, avec des variétés adaptées à chaque étage. L’espèce exige le plein soleil, répond bien à des températures comprises entre 25 et 30 degrés Celsius pendant la croissance végétative et a besoin d’au moins 10 degrés dans le sol pour germer. Elle ne tolère la gelée à aucun stade du cycle. Les sols préférés sont profonds, fertiles et bien drainés, à bonne rétention d’eau et de pH compris entre 5,5 et 7,0, et sa demande en azote figure parmi les plus élevées de toutes les cultures annuelles. La pluviométrie nécessaire sur l’ensemble du cycle, qui dure de 90 à 150 jours, tourne autour de 500 à 800 millimètres, concentrée surtout sur la période critique qui va de deux semaines avant à deux semaines après la floraison.
Un point passe souvent inaperçu dans les descriptions de répartition : le maïs ne se naturalise pratiquement pas. Des plantes spontanées apparaissent en bordure de parcelle et sur les terrains vagues, mais les populations ne se maintiennent pas au fil des générations, car l’épi fermé par les spathes empêche les grains de se détacher et de se disperser. Là où l’on trouve du maïs hors culture, il y a presque toujours un champ semé à proximité, et la présence est passagère.
Culture
La multiplication se fait exclusivement par semis, sans aucune voie végétative d’usage pratique. Le semis s’effectue à 3 à 5 centimètres de profondeur, à des densités allant de 55 000 à 80 000 plants par hectare en production de grain et de 60 000 à 70 000 en production d’ensilage, et l’écartement entre rangs se situe habituellement entre 0,45 et 0,90 mètre. La germination prend de 5 à 10 jours dans un sol à 25 degrés Celsius.
La culture est exigeante en éléments nutritifs de manière presque agressive. L’azote est le facteur le plus déterminant et les recommandations de terrain varient de 150 à 250 kilos par hectare, répartis entre la fumure de semis et deux apports de couverture, l’un entre le quatrième et le sixième stade foliaire et l’autre entre le huitième et le dixième. Le phosphore et le potassium complètent le programme en quantités bien moindres. Dans les régions à déficit hydrique l’irrigation devient indispensable, et au Brésil central le pivot central est le système dominant. La rotation avec le soja a structuré tout le calendrier agricole du Cerrado, où le maïs de seconde récolte occupe la parcelle aussitôt après la moisson de la légumineuse.
Parmi les ravageurs, la chenille légionnaire d’automne (Spodoptera frugiperda) est celle qui pèse le plus économiquement dans les Amériques, attaquant le cornet puis l’épi. La cicadelle du maïs (Dalbulus maidis) a pris récemment de l’importance au Brésil parce qu’elle transmet les mollicutes responsables des rabougrissements, et le ver de l’épi (Helicoverpa zea) endommage les grains de la pointe. Parmi les maladies fongiques se détachent la cercosporiose (Cercospora zeae-maydis), la rouille polysora (Puccinia polysora) et l’helminthosporiose (Exserohilum turcicum), toutes foliaires et toutes capables de compromettre le remplissage du grain lorsqu’elles progressent avant la maturation.
La récolte du grain a lieu quand l’humidité tombe dans la fourchette de 18 à 23 pour cent, moment qui coïncide avec la formation de la couche noire à la base du grain, signe visible que la maturité physiologique est atteinte et que la plante a cessé de transférer les photoassimilats vers la graine.
Phénologie
La floraison survient entre 50 et 100 jours après le semis, avec une variation large selon le cycle du cultivar et le cumul thermique de la région. L’espèce présente une protandrie prononcée, c’est-à-dire que la panicule mâle libère du pollen avant que les stigmates de la même plante ne soient réceptifs, et ce décalage de quelques jours pousse le système reproductif vers la fécondation croisée. La pollinisation est anémophile et le pollen, bien qu’abondant, est lourd et parcourt de courtes distances, ce qui fait de chaque parcelle une population reproductive assez fermée.
Après la fécondation, le remplissage du grain consomme de 45 à 65 jours et traverse les stades successifs de grain laiteux, pâteux et farineux jusqu’à la maturité physiologique. La dispersion naturelle, en revanche, n’existe tout simplement pas. Les spathes qui protègent l’épi des oiseaux et des insectes emprisonnent aussi les grains sur la rafle, et sans intervention humaine l’épi entier pourrit là où il est tombé. Cette dépendance réciproque entre la plante et l’agriculteur est l’aboutissement de millénaires de sélection et le trait biologique le plus radical de l’espèce.
Espèces Apparentées et Confusions
Le genre Zea abrite, outre le maïs, un ensemble de graminées sauvages mésoaméricaines connues collectivement sous le nom de téosintes. Les principales sont Zea diploperennis Iltis, Doebley & R.Guzmán, téosinte vivace diploïde du Jalisco décrit seulement en 1979, Zea luxurians (Durieu & Asch.) R.M.Bird, annuel du Guatemala et du Honduras, Zea nicaraguensis Iltis & B.F.Benz, restreint à la plaine côtière nicaraguayenne et tolérant à l’inondation, et Zea perennis (Hitchc.) Reeves & Mangelsd., téosinte vivace tétraploïde également du Jalisco. Tous se distinguent aisément du maïs par l’inflorescence femelle, qui chez les téosintes est un épi fragile de quelques épillets endurcis, sans spathes enveloppantes et sans rafle charnue.
Au champ, la confusion réelle se produit au stade juvénile, quand le maïs n’a encore formé ni panicule mâle ni épi et que d’autres graminées de grande taille lui ressemblent. Trois cas méritent attention.
- Canne à sucre (Saccharum officinarum) : vivace, à chaumes remplis d’un tissu riche en saccharose, aux feuilles plus étroites et dépourvues de la nervure médiane blanche et large du maïs. Elle ne produit jamais d’épi latéral.
- Sorgho (Sorghum bicolor) : port semblable, mais il se termine par une panicule terminale compacte et non par une panicule mâle ouverte, ne forme pas d’épi axillaire et affiche généralement une couche cireuse blanchâtre sur les feuilles et la tige.
- Sorgho d’Alep (Sorghum halepense) : vivace rhizomateux aux feuilles semblables à celles du jeune maïs. Les feuilles et les repousses de cette espèce contiennent des glucosides cyanogènes, et leur ingestion par les bovins et les équidés, surtout en repousse après sécheresse ou gelée, provoque une intoxication cyanhydrique. La distinction sûre se fait par les rhizomes épais, absents chez le maïs.
Le caractère diagnostique absolu reste la combinaison d’une panicule mâle terminale et d’un épi femelle axillaire doté de longs stigmates. Aucune autre graminée ne réunit les deux structures.
Phytochimie du Zea mays
La composition varie beaucoup selon l’organe analysé. Le grain mûr est dominé par l’amidon, qui représente de 60 à 72 pour cent du poids sec et se répartit entre amylose et amylopectine dans une proportion voisine de un pour trois dans les types conventionnels, rapport qui bascule presque entièrement vers l’amylopectine dans le maïs cireux. La fraction protéique se situe entre 6 et 12 pour cent et a pour protéine de réserve prédominante la zéine, notoirement pauvre en lysine et en tryptophane. L’huile, concentrée dans le germe, représente de 3 à 5 pour cent et est riche en acide linoléique.
Les pigments accompagnent la couleur du grain. Des caroténoïdes comme la lutéine et la zéaxanthine s’accumulent dans l’albumen des maïs jaunes et orangés, tandis que des anthocyanes du type cyanidine-3-glucoside et pélargonidine se déposent dans le péricarpe et l’aleurone des variétés violettes, rouges et bleues. Dans les parois cellulaires du péricarpe, l’acide férulique se présente lié aux arabinoxylanes à une concentration élevée pour une céréale.
Les stigmates accumulent un profil distinct, avec des flavonoïdes comme l’apigénine, la lutéoline et la maysine, ainsi que des mucilages polysaccharidiques, du potassium à concentration élevée, des saponines à faible teneur et des tanins de l’ordre de 1 à 3 pour cent de la matière sèche. Les plantules, pour leur part, synthétisent des benzoxazinoïdes, dont le DIMBOA, composés associés dans la littérature d’écologie chimique à la défense de la plante contre les insectes herbivores et dont la concentration décroît à mesure que le tissu vieillit.
Deux faits de composition ont une conséquence pratique directe et méritent d’être signalés explicitement. Le premier est que la niacine du grain se présente majoritairement sous forme liée, la niacytine, que la cuisson à l’eau ne libère pas. Le second est que les grains stockés à humidité élevée ou dans des conditions de ventilation insuffisante sont colonisés par des champignons des genres Aspergillus et Fusarium, qui produisent des mycotoxines telles que les aflatoxines et les fumonisines. Ces toxines résistent à la chaleur des traitements ordinaires et la contamination n’est perceptible ni au goût ni à l’odeur, raison pour laquelle le contrôle de l’humidité au stockage relève de la législation sanitaire dans pratiquement tous les pays producteurs.
Histoire et Ethnobotanique
Les traces les plus anciennes de maïs domestiqué proviennent de sites archéologiques de la vallée du fleuve Balsas et ont été datées d’environ 8 700 ans avant le présent, à partir de grains d’amidon et de phytolithes recueillis sur des instruments de mouture. L’ancêtre sauvage est le téosinte Zea mays subsp. parviglumis, plante dont les épis portent de cinq à douze grains revêtus de glumes dures. La distance morphologique entre cette herbe et l’épi moderne est énorme, mais les travaux de génétique des populations ont montré que la transformation a mis en jeu des mutations dans une petite poignée de gènes régulateurs, au premier rang desquels teosinte branched1, qui a supprimé la ramification latérale et concentré l’énergie de la plante dans quelques grands épis, et teosinte glume architecture1, qui a réduit la glume endurcie et laissé le grain exposé.
Chez les peuples mésoaméricains, le maïs n’était pas seulement un aliment. Le Popol Vuh, livre sacré des Mayas quichés consigné au XVIe siècle, raconte que l’humanité définitive fut modelée à partir de la pâte de maïs, après l’échec des tentatives antérieures avec l’argile et le bois, et les représentations de la divinité du maïs traversent l’iconographie maya classique pendant des siècles. Les Aztèques organisaient calendrier rituel et cycle agricole autour de la même plante.
Sur le plan technique, la contribution mésoaméricaine la plus lourde de conséquences fut la nixtamalisation, procédé où les grains étaient cuits puis laissés à tremper dans une solution alcaline obtenue de la chaux ou des cendres de foyer avant la mouture. Le traitement alcalin détachait le péricarpe, modifiait la texture de la pâte et libérait la niacine jusque-là indisponible. Les peuples qui ont adopté la technique ont soutenu des régimes centrés sur le maïs pendant des millénaires sans que l’on ait relevé chez eux les épidémies qui frapperaient l’Europe des siècles plus tard.
Cette histoire a eu un contrepoint sombre en Europe. Le maïs est arrivé sur le continent après le voyage de Colomb, en 1493, et s’est diffusé rapidement dans le bassin méditerranéen, en Afrique et en Asie aux XVIe et XVIIe siècles, mais le traitement alcalin n’a pas voyagé avec la semence. Des populations du nord de l’Italie, du sud de la France, des Balkans et plus tard du sud des États-Unis en sont venues à dépendre d’un maïs préparé par la seule mouture et la seule cuisson à l’eau, et entre le XVIIIe et le XXe siècle elles ont affronté des épidémies dévastatrices de pellagre, maladie carentielle dont la cause nutritionnelle n’a été établie que dans les années 1930 par les travaux de Joseph Goldberger et de ses successeurs. L’épisode est aujourd’hui un cas classique de la façon dont une culture alimentaire peut être transplantée de manière incomplète.
Carl von Linné a décrit formellement l’espèce en 1753, en travaillant sur du matériel cultivé dans des jardins européens, presque trois siècles après que la plante eut traversé l’Atlantique et plus de huit millénaires après sa domestication au Guerrero.
Conservation
Le maïs cultivé ne fait pas l’objet d’une évaluation individuelle sur la Liste rouge de l’UICN, situation normale pour des cultigènes qui n’existent que sous conduite agricole et dont la persistance ne dépend pas de populations naturelles. L’espèce ne figure pas davantage dans une annexe de la CITES. La préoccupation de conservation porte donc sur deux fronts bien distincts.
Le premier est la situation des parents sauvages. Zea diploperennis est inscrit comme menacé sur la Liste rouge et survit sur quelques kilomètres carrés dans la Sierra de Manantlán, au Mexique, où la zone a été érigée en réserve de biosphère précisément à cause de cette présence. Zea nicaraguensis est dans une situation plus précaire encore, avec une population estimée à quelques milliers d’individus concentrée sur une bande minime de la plaine côtière nicaraguayenne, exposée au drainage des zones humides et à l’étalement urbain. Les autres populations de téosinte souffrent de la fragmentation des habitats, du pâturage et de l’avancée du front agricole.
Le second front est l’érosion génétique au sein même de l’espèce cultivée. Le remplacement des variétés locales par des hybrides commerciaux uniformes a rétréci la base génétique disponible pour la sélection à l’échelle mondiale. La réponse est venue par la conservation ex situ, avec la banque de germoplasme du CIMMYT, au Mexique, qui détient la plus grande collection mondiale d’accessions de maïs et de téosinte, et par la conservation à la ferme, soutenue au Brésil par des programmes de l’Embrapa et par des réseaux d’agriculteurs gardiens de semences paysannes dans le Sud et le Nordeste.
Curiosités
- Le nombre de rangs de grains sur un épi est toujours pair, résultat d’un schéma de développement où chaque épillet femelle produit deux fleurs adjacentes. Les épis à rangs impairs ne se rencontrent pratiquement jamais.
- Chaque soie correspond à une seule fleur et doit capter au moins un grain de pollen pour qu’un grain se forme. Les manques irréguliers qui apparaissent sur les épis mal pollinisés sont le portrait exact des stigmates restés sans pollen.
- Le maïs réalise la photosynthèse par la voie C4, mécanisme qui concentre le dioxyde de carbone et réduit la photorespiration. Cela explique la productivité de la culture sous température élevée et forte luminosité, conditions où les céréales à voie C3 comme le blé perdent en efficacité.
- Barbara McClintock a découvert les éléments génétiques mobiles, les transposons, en étudiant l’hérédité irrégulière de la couleur des grains chez le maïs, travaux qui lui ont valu le prix Nobel de physiologie ou médecine en 1983, plus de trois décennies après les publications originales.
- Le téosinte a si longtemps été tenu pour un genre distinct que sa réunion à Zea divise encore les auteurs, et l’hypothèse selon laquelle le maïs en descendait fut rejetée par une bonne part de la communauté scientifique jusqu’à ce que les analyses moléculaires des années 1990 la confirment.
Avertissement: ce contenu est informatif et ne remplace pas l’avis d’un professionnel de santé. Consultez un médecin ou un phytothérapeute avant d’utiliser des plantes médicinales, notamment pendant la grossesse, l’allaitement ou en cas de prise de médicaments.
Références et Études Scientifiques
Études Scientifiques Évaluées par les Pairs (2)
- DOI2004 Doebley, J. F. The genetics of maize evolution. Annual Review of Genetics, 38, 37-59. 2004. ↗
- DOI2009 Piperno, D. R., Ranere, A. J., Holst, I., Iriarte, J., Dickau, R. Starch grain and phytolith evidence for early ninth millennium B.P. maize from the Central Balsas River Valley, Mexico. Proceedings of the National Academy of Sciences, 106(13), 5019-5024. 2009. ↗
Lectures Complémentaires (5)
- CIMMYT. Maize Germplasm Bank. Centro Internacional de Mejoramiento de Maíz y Trigo, El Batán, Mexique. ↗
- International Plant Names Index (IPNI). Zea mays L. Royal Botanic Gardens, Kew ; Harvard University Herbaria ; Australian National Botanic Gardens. ↗
- Linnaeus, C. Species Plantarum, vol. 2, p. 971. Stockholm. 1753. ↗
- POWO. Plants of the World Online. Zea mays L. Royal Botanic Gardens, Kew. ↗
- UICN. La Liste rouge des espèces menacées. Union internationale pour la conservation de la nature. ↗