Zea mays nimmt unter den Kulturpflanzen eine besondere Stellung ein, denn kein anderes Süßgras wurde von der menschlichen Auslese so tiefgreifend umgeformt, dass es die Fähigkeit zur eigenständigen Fortpflanzung verlor. Es handelt sich um eine großwüchsige einjährige krautige Pflanze, einhäusig, aus der Familie der Poaceae und ursprünglich aus Mesoamerika, deren von Hüllblättern umschlossener Kolben vollständig darauf angewiesen ist, dass jemand ihn entkörnt und aussät, damit die Art weiter besteht.
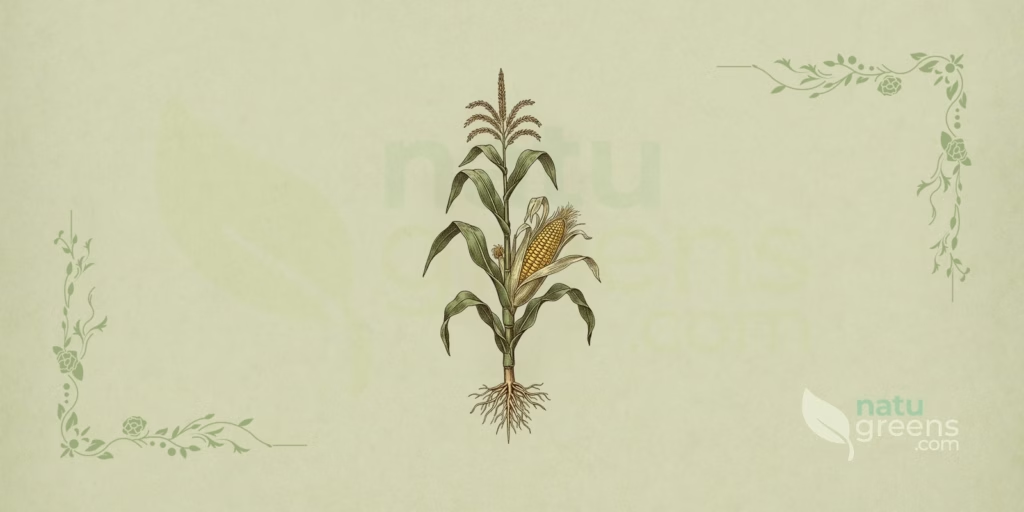
Die Familie der Poaceae umfasst rund 780 Gattungen und mehr als elftausend Arten, darunter Reis, Weizen und Zuckerrohr. Innerhalb dieser gewaltigen Vielfalt fällt der Mais durch eine Blütenarchitektur ohne Parallele auf: Die männlichen Blüten sitzen an der Spitze des Halms, versammelt in einer offenen Rispe, die Landwirte die Fahne nennen, während die weiblichen in seitlichen Kolben stehen, geschützt von mehreren Lagen Lieschblätter. Die langen, seidigen Narbenfäden, die aus der Kolbenspitze hervortreten, vervollständigen ein Merkmalsbündel, das die Bestimmung auch für jemanden sofort möglich macht, der nie einen Bestimmungsschlüssel aufgeschlagen hat.
Das folgende Profil behandelt die Pflanze selbst. Es bündelt die in den internationalen Datenbanken bestätigte taxonomische Stellung, die Morphologie, die sie von ähnlichen Süßgräsern trennt, das phänologische Verhalten im Feld, die in der Literatur beschriebene chemische Zusammensetzung und die lange Domestikationsgeschichte, die aus einem mexikanischen Gras mit winzigen Ähren die mengenmäßig bedeutendste Ackerkultur des Planeten machte.
Taxonomie
Der akzeptierte Name lautet Zea mays L., veröffentlicht von Carl von Linné in Species Plantarum (Band 2, Seite 971) im Jahr 1753. Die Abfrage im International Plant Names Index bestätigt das Binomen, die Autorschaft und den Erstveröffentlichungsnachweis, und Plants of the World Online führt denselben Namen weiterhin als akzeptiert, ohne dass ein Umkombinationsvorschlag anhängig wäre. Die vollständige hierarchische Einordnung ist unten zusammengefasst.
- Reich: Plantae
- Abteilung: Magnoliophyta (Bedecktsamer)
- Klasse: Liliopsida (Einkeimblättrige)
- Ordnung: Poales
- Familie: Poaceae Barnhart
- Unterfamilie: Panicoideae
- Tribus: Andropogoneae
- Gattung: Zea L., 1753
- Art: Zea mays L., 1753
Anerkannte Synonyme
Die Synonymie der Art ist kurz, was bei einer früh beschriebenen und stets unter demselben Namen geführten Pflanze zu erwarten war. Plants of the World Online verzeichnet fünf homotypische und heterotypische Synonyme.
- Mays americana Baumg.
- Mays zea Gaertn.
- Mayzea cerealis Raf.
- Thalysia mays (L.) Kuntze
- Zea segetalis Salisb.
Anerkannte Unterarten
Gegenwärtig werden drei Unterarten anerkannt, und nur eine davon entspricht dem Feldmais. Die beiden anderen sind Teosinte, wilde mexikanische Süßgräser mit verhärteten Ährchen, die lange als Pflanzen einer anderen Gattung behandelt wurden.
- Zea mays subsp. huehuetenangensis (Iltis & Doebley) Doebley, aus dem Nordwesten Guatemalas
- Zea mays subsp. mays, der Kulturmais
- Zea mays subsp. parviglumis Iltis & Doebley, aus dem Tal des Río Balsas in Mexiko
Eine bestehende Meinungsverschiedenheit über die Umgrenzung sei festgehalten: Der Teosinte des mexikanischen Hochlands erscheint in weiten Teilen der agronomischen Literatur als Zea mays subsp. mexicana, doch Plants of the World Online erhebt ihn zu einer eigenen Art, Zea mexicana (Schrad.) Kuntze. Wer Quellen aus verschiedenen Zeiten heranzieht, wird beiden Schreibweisen begegnen, und keine ist innerhalb des Systems falsch, das sie verwendet.
Etymologie
Der Gattungsname Zea geht auf das griechische zeiá zurück, ein Wort für ein in der mediterranen Antike angebautes Getreide, vermutlich einen Spelzweizen. Linné verwendete den Begriff für die amerikanische Pflanze weiter, eine gängige Geste der Botanik des 18. Jahrhunderts, die zum klassischen Wortschatz griff, um Arten zu benennen, die griechische Autoren nie zu Gesicht bekommen hatten. Das Epitheton mays hat einen gänzlich anderen Ursprung: Es leitet sich von mahiz her, dem Namen, den die Taíno der Karibik der Pflanze gaben und der als maíz ins Kastilische und von dort in die übrigen europäischen Sprachen gelangte.
Endospermgruppen
Innerhalb der angebauten Unterart trägt die Variation des Endosperms eine gärtnerische Nomenklatur, die parallel zur formalen Taxonomie läuft. Die Gruppen sind praktische Kategorien und keine anerkannten Taxa, und sie bleiben in Züchtung und Saatguthandel in gebräuchlicher Verwendung.
- Hartmais: glasiges, widerstandsfähiges Endosperm, vorherrschend in Argentinien und Brasilien
- Hüllspelzenmais: jedes Korn von eigenen Spelzen umschlossen, eine ursprüngliche Form ohne kommerziellen Anbau
- Puffmais: kleines, glasiges Korn, dessen innere Feuchtigkeit die Expansion in der Hitze auslöst
- Wachsmais: Stärke fast ausschließlich aus Amylopektin, Grundlage industrieller Stärken
- Weichmais: mehliges, weiches Endosperm, traditionell in den andinen Sorten
- Zahnmais: charakteristische Vertiefung an der Kornspitze, dominierend in der kommerziellen Erzeugung
- Zuckermais: Mutationen, die die Umwandlung von Zucker in Stärke blockieren, wird noch grün verzehrt
Morphologische Beschreibung
Der Mais ist eine aufrechte einjährige krautige Pflanze, die 1,5 bis 4 Meter Höhe erreicht, wobei tropische Sorten mit langem Zyklus die 5 Meter überschreiten. Der kräftige Wuchs stützt sich auf einen zylindrischen, massiven Halm, der von Markparenchym ausgefüllt wird, was dem geläufigen Bild des hohlen Halms bei Süßgräsern im Allgemeinen widerspricht. Die Pflanze ist einhäusig und trägt eingeschlechtige Blüten, die auf getrennte Blütenstände verteilt sind, ein Zustand, der sie von der überwiegenden Mehrheit der Gräser abhebt.
Blätter
Die Blätter stehen wechselständig und zweizeilig, also in zwei gegenüberliegenden Ebenen entlang des Halms, was der jungen Pflanze von oben gesehen eine abgeflachte Silhouette verleiht. Jedes Blatt misst 50 bis 120 Zentimeter in der Länge und 5 bis 12 Zentimeter in der Breite, mit lanzettlicher Spreite, lang zugespitztem Ende und ganzem bis leicht welligem Rand. Die Nervatur verläuft parallel, mit einer kräftigen weißlichen Mittelrippe, die als Geländemerkmal dient. Die Blattscheide umfasst den Halm vollständig, mit überlappenden Rändern, und das Blatthäutchen ist häutig und kurz, 2 bis 5 Millimeter. Eine ausgewachsene Pflanze trägt 12 bis 22 Blätter, eine Zahl, die mit der Sorte und der Länge des Zyklus schwankt.
Blüten
Die räumliche Trennung der Geschlechter ist das auffälligste Merkmal der Art. Die Fahne ist eine endständige Rispe mit 10 bis 25 Seitenästen, gebildet aus Ährchen mit je zwei staubblatttragenden Blüten zu drei Antheren, und eine einzige Pflanze kann im Verlauf der Blühphase Dutzende Millionen Pollenkörner freisetzen. Der Kolben wiederum ist ein achselständiger Blütenstand im mittleren Drittel des Halms, umhüllt von blattartigen Hüllblättern und Träger von 200 bis 1.000 stempeltragenden Blüten in ausnahmslos geradzahligen Reihen, meist 8 bis 24. Die Narben bilden die 10 bis 30 Zentimeter langen Fäden, die im Volksmund Maisbart heißen, und jeder von ihnen gehört zu einer einzelnen Blüte, sodass das Ausbleiben des Pollenkontakts an einem einzigen Faden zu einem Korn führt, das sich nicht bildet.
Früchte und Samen
Die Frucht ist eine Karyopse, der für die Poaceae typische Fruchttyp, bei dem die Fruchtwand mit der Samenschale verwächst und das Ganze sich als eine einzige, nicht aufspringende Einheit verhält. Die Körner messen 5 bis 15 Millimeter und sitzen in geradzahligen Reihen auf der Spindel, der holzigen Mittelachse, die den Kolben trägt. Die Färbung deckt eine bemerkenswerte Spanne ab, von Weiß und Gelb über Orange, Rot, Violett und Blau bis nahezu Schwarz, je nach Pigmentierung der Fruchtwand und der Aleuronschicht. Das Tausendkorngewicht liegt bei den Zahn- und Hartmaistypen gewöhnlich zwischen 250 und 400 Gramm, und ein durchschnittlicher Erwerbskolben liefert 400 bis 600 Körner.
Wurzel und Stängel
Das Wurzelsystem ist büschelig und gliedert sich in drei aufeinanderfolgende funktionelle Gruppen. Die Keimwurzeln kommen zuerst, embryonalen Ursprungs, und tragen den Keimling bis etwa zum sechsten Blattstadium, wo sie an Bedeutung verlieren. Die Kronenwurzeln treiben ab dem dritten Blattstadium aus den unterirdischen Knoten, breiten sich seitlich bis zu 1 Meter aus und reichen etwa 1,5 Meter in die Tiefe; auf sie entfällt nahezu das gesamte adulte System. Schließlich treten die sprossbürtigen Stützwurzeln, die Stelzwurzeln, aus den freiliegenden unteren Knoten hervor und verankern die Pflanze im Boden, eine keineswegs triviale Aufgabe bei einem Gewächs, das mehrere Meter Biomasse unter Wind und Regen aufrecht halten muss. Der Halm zeigt deutlich abgesetzte Knoten und Internodien, die sich ungleich strecken, kürzer an der Basis und fortschreitend länger zur Fahne hin.
Verbreitung und Lebensraum
Der Ursprung der Art beschränkt sich auf das Einzugsgebiet des Río Balsas im heutigen mexikanischen Bundesstaat Guerrero, eine Region mit saisonal trockenem Klima, in der der ursprüngliche Teosinte noch in natürlichen Beständen vorkommt. Die angebaute Unterart besitzt dagegen kein natürliches Areal im üblichen Sinn des Wortes, denn sie ist ein Kultigen: Sie existiert nur dort, wo sie gepflanzt wurde. Von Mesoamerika aus breitete sich die Pflanze noch vor der Ankunft der Europäer über den gesamten amerikanischen Kontinent aus und erreichte nach 1493 innerhalb weniger Jahrzehnte Europa, Afrika und Asien.
Heute wird Mais vom Meeresspiegel bis in etwa 3.800 Meter Höhe in den Anden angebaut, mit an jede Höhenstufe angepassten Sorten. Die Art verlangt volle Sonne, reagiert im vegetativen Wachstum gut auf Temperaturen zwischen 25 und 30 Grad Celsius und braucht mindestens 10 Grad im Boden, um zu keimen. Frost verträgt sie in keinem Stadium des Zyklus. Bevorzugte Böden sind tiefgründig, fruchtbar und gut durchlässig, mit gutem Wasserhaltevermögen und einem pH-Wert zwischen 5,5 und 7,0, und ihr Stickstoffbedarf zählt zu den höchsten aller einjährigen Kulturen. Der über den Zyklus von 90 bis 150 Tagen erforderliche Niederschlag liegt bei etwa 500 bis 800 Millimetern, vor allem konzentriert auf das kritische Fenster von zwei Wochen vor bis zwei Wochen nach der Blüte.
Ein Punkt bleibt in Verbreitungsbeschreibungen meist unbeachtet: Mais verwildert so gut wie nicht. Durchwuchspflanzen tauchen an Feldrändern und auf Brachflächen auf, doch die Bestände halten sich nicht über Generationen, weil der von Lieschblättern verschlossene Kolben die Körner am Ablösen und Ausbreiten hindert. Wo Mais außerhalb des Anbaus steht, liegt fast immer ein bestelltes Feld in der Nähe, und die Anwesenheit bleibt vorübergehend.
Anbau
Die Vermehrung erfolgt ausschließlich über Samen, ohne jeden vegetativen Weg von praktischem Nutzen. Gesät wird in 3 bis 5 Zentimeter Tiefe, mit Bestandesdichten von 55.000 bis 80.000 Pflanzen je Hektar in der Körnererzeugung und von 60.000 bis 70.000 in der Silomaiserzeugung, und der Reihenabstand liegt gewöhnlich zwischen 0,45 und 0,90 Meter. Die Keimung dauert 5 bis 10 Tage bei einer Bodentemperatur von 25 Grad Celsius.
Die Kultur ist in ihrem Nährstoffbedarf beinahe aggressiv anspruchsvoll. Stickstoff ist der ausschlaggebende Faktor, und die Feldempfehlungen reichen von 150 bis 250 Kilogramm je Hektar, aufgeteilt auf die Saatdüngung und zwei Kopfdüngungen, eine zwischen dem vierten und sechsten Blattstadium und eine weitere zwischen dem achten und zehnten. Phosphor und Kalium ergänzen das Programm in weit geringeren Mengen. In Regionen mit Wasserdefizit wird die Bewässerung unverzichtbar, und in Zentralbrasilien ist die Kreisberegnung das vorherrschende System. Die Fruchtfolge mit Soja hat den gesamten Anbaukalender des Cerrado geprägt, wo der Zweitfruchtmais die Fläche unmittelbar nach der Ernte der Leguminose übernimmt.
Unter den Schädlingen hat der Herbst-Heerwurm (Spodoptera frugiperda) in Amerika das größte wirtschaftliche Gewicht; er befällt zunächst die Blatttüte und später den Kolben. Die Maiszikade (Dalbulus maidis) rückte in Brasilien zuletzt in den Vordergrund, weil sie die Mollicutes überträgt, welche die Maisstauche verursachen, und der Maiskolbenwurm (Helicoverpa zea) schädigt die Körner an der Kolbenspitze. Unter den Pilzkrankheiten stechen die Cercospora-Blattfleckenkrankheit (Cercospora zeae-maydis), der Südliche Maisrost (Puccinia polysora) und die Turcicum-Blattdürre (Exserohilum turcicum) hervor, allesamt an den Blättern und allesamt imstande, die Kornfüllung zu beeinträchtigen, wenn sie vor der Reife fortschreiten.
Die Körnerernte findet statt, wenn die Feuchte in den Bereich von 18 bis 23 Prozent fällt, ein Zeitpunkt, der mit der Ausbildung der schwarzen Schicht an der Kornbasis zusammenfällt, dem sichtbaren Zeichen dafür, dass die physiologische Reife abgeschlossen ist und die Pflanze die Verlagerung der Assimilate in den Samen eingestellt hat.
Phänologie
Die Blüte tritt 50 bis 100 Tage nach der Aussaat ein, mit weiter Streuung je nach Sortenzyklus und Wärmesumme der Region. Die Art zeigt ausgeprägte Protandrie, das heißt, die Fahne gibt Pollen ab, bevor die Narben derselben Pflanze empfängnisbereit sind, und dieser Versatz von wenigen Tagen drängt das Fortpflanzungssystem zur Fremdbefruchtung. Die Bestäubung erfolgt durch den Wind, und der Pollen ist bei aller Menge schwer und legt kurze Strecken zurück, was jeden Schlag zu einer verhältnismäßig geschlossenen Fortpflanzungsgemeinschaft macht.
Nach der Befruchtung beansprucht die Kornfüllung 45 bis 65 Tage und durchläuft die aufeinanderfolgenden Stadien Milchreife, Teigreife und Mehlreife bis zur physiologischen Reife. Eine natürliche Ausbreitung gibt es demgegenüber schlicht nicht. Die Lieschblätter, die den Kolben vor Vögeln und Insekten schützen, sperren die Körner zugleich auf der Spindel ein, und ohne menschliches Zutun verfault der ganze Kolben an der Stelle, an der er zu Boden fiel. Diese wechselseitige Abhängigkeit von Pflanze und Landwirt ist das Ergebnis jahrtausendelanger Auslese und das radikalste biologische Merkmal der Art.
Verwandte Arten und Verwechslungen
Die Gattung Zea beherbergt neben dem Mais eine Gruppe wilder mesoamerikanischer Süßgräser, die zusammenfassend Teosinte genannt werden. Die wichtigsten sind Zea diploperennis Iltis, Doebley & R.Guzmán, ein diploider ausdauernder Teosinte aus Jalisco, der erst 1979 beschrieben wurde, Zea luxurians (Durieu & Asch.) R.M.Bird, einjährig aus Guatemala und Honduras, Zea nicaraguensis Iltis & B.F.Benz, auf die nicaraguanische Küstenebene beschränkt und überflutungstolerant, sowie Zea perennis (Hitchc.) Reeves & Mangelsd., ein tetraploider ausdauernder Teosinte ebenfalls aus Jalisco. Alle lassen sich am weiblichen Blütenstand mühelos vom Mais unterscheiden, der bei den Teosinte eine zerbrechliche Ähre aus wenigen verhärteten Ährchen ist, ohne umhüllende Lieschblätter und ohne fleischige Spindel.
Im Feld entsteht die eigentliche Verwechslungsgefahr im Jugendstadium, wenn der Mais weder Fahne noch Kolben gebildet hat und andere großwüchsige Süßgräser ihm ähneln. Drei Fälle verdienen Aufmerksamkeit.
- Aleppohirse (Sorghum halepense): ausdauernd und rhizombildend, mit Blättern, die denen des jungen Maises gleichen. Die Blätter und der Wiederaustrieb dieser Art enthalten cyanogene Glykoside, und die Aufnahme durch Rinder und Pferde, vor allem beim Wiederaustrieb nach Trockenheit oder Frost, verursacht eine Blausäurevergiftung. Sicher zu unterscheiden ist sie an den dicken Rhizomen, die dem Mais fehlen.
- Mohrenhirse (Sorghum bicolor): ähnlicher Wuchs, endet aber in einer kompakten endständigen Rispe und nicht in einer offenen Fahne, bildet keinen achselständigen Kolben und zeigt meist einen weißlichen Wachsbelag auf Blättern und Halm.
- Zuckerrohr (Saccharum officinarum): ausdauernd, mit Halmen, die von saccharosereichem Gewebe ausgefüllt sind, schmaleren Blättern und ohne die breite weiße Mittelrippe des Maises. Es bildet niemals einen seitlichen Kolben.
Das absolute Bestimmungsmerkmal bleibt die Kombination aus endständiger männlicher Fahne und achselständigem weiblichem Kolben mit langen Narben. Kein anderes Süßgras vereint beide Strukturen.
Phytochemie von Zea mays
Die Zusammensetzung schwankt erheblich je nach untersuchtem Organ. Das reife Korn wird von Stärke beherrscht, die 60 bis 72 Prozent der Trockenmasse ausmacht und sich bei den herkömmlichen Typen im Verhältnis von etwa eins zu drei auf Amylose und Amylopektin verteilt, ein Verhältnis, das sich beim Wachsmais fast vollständig zum Amylopektin verschiebt. Der Proteinanteil liegt zwischen 6 und 12 Prozent und hat im Zein sein vorherrschendes Speicherprotein, das bekanntermaßen arm an den Aminosäuren Lysin und Tryptophan ist. Das im Keimling konzentrierte Öl macht 3 bis 5 Prozent aus und ist reich an Linolsäure.
Die Pigmente folgen der Kornfarbe. Carotinoide wie Lutein und Zeaxanthin reichern sich im Endosperm der gelben und orangefarbenen Maise an, während Anthocyane vom Typ Cyanidin-3-Glucosid und Pelargonidin sich in Fruchtwand und Aleuron der violetten, roten und blauen Sorten ablagern. In den Zellwänden der Fruchtwand tritt Ferulasäure in einer für ein Getreide hohen Konzentration an Arabinoxylane gebunden auf.
Die Narben sammeln ein eigenes Profil an, mit Flavonoiden wie Apigenin, Luteolin und Maysin, dazu Polysaccharidschleimstoffe, Kalium in hoher Konzentration, Saponine in geringem Gehalt und Gerbstoffe im Bereich von 1 bis 3 Prozent der Trockenmasse. Die Keimlinge ihrerseits bilden Benzoxazinoide, darunter DIMBOA, Verbindungen, die in der Literatur der chemischen Ökologie mit der Abwehr pflanzenfressender Insekten in Verbindung gebracht werden und deren Konzentration mit dem Altern des Gewebes abnimmt.
Zwei Befunde zur Zusammensetzung haben unmittelbare praktische Folgen und verdienen ausdrückliche Erwähnung. Der erste ist, dass das Niacin des Korns überwiegend in gebundener Form vorliegt, als Niacytin, das durch Kochen in Wasser nicht freigesetzt wird. Der zweite ist, dass Körner, die mit hoher Feuchte oder bei mangelhafter Belüftung gelagert werden, von Pilzen der Gattungen Aspergillus und Fusarium besiedelt werden, die Mykotoxine wie Aflatoxine und Fumonisine bilden. Diese Toxine überstehen die Hitze der üblichen Verarbeitung, und die Kontamination ist weder am Geschmack noch am Geruch wahrnehmbar, weshalb die Feuchtekontrolle bei der Lagerung in praktisch allen Erzeugerländern Gegenstand lebensmittelrechtlicher Vorschriften ist.
Geschichte und Ethnobotanik
Die ältesten Belege für domestizierten Mais stammen von archäologischen Fundstellen im Tal des Río Balsas und wurden auf etwa 8.700 Jahre vor heute datiert, anhand von Stärkekörnern und Phytolithen, die an Mahlwerkzeugen gefunden wurden. Der wilde Vorfahre ist der Teosinte Zea mays subsp. parviglumis, eine Pflanze, deren Ähren fünf bis zwölf von harten Spelzen umschlossene Körner tragen. Der morphologische Abstand zwischen diesem Gras und dem modernen Kolben ist gewaltig, doch populationsgenetische Arbeiten haben gezeigt, dass die Umwandlung Mutationen in einer kleinen Handvoll regulatorischer Gene betraf, allen voran teosinte branched1, das die Seitenverzweigung unterdrückte und die Energie der Pflanze auf wenige große Kolben bündelte, und teosinte glume architecture1, das die verhärtete Spelze zurückbildete und das Korn freilegte.
Bei den mesoamerikanischen Völkern war Mais nicht bloß Nahrung. Das Popol Vuh, das im 16. Jahrhundert niedergeschriebene heilige Buch der Quiché-Maya, erzählt, die endgültige Menschheit sei aus Maisteig geformt worden, nachdem frühere Versuche mit Lehm und Holz gescheitert waren, und Darstellungen der Maisgottheit ziehen sich über Jahrhunderte durch die klassische Maya-Ikonografie. Die Azteken ordneten Ritualkalender und Anbauzyklus um dieselbe Pflanze.
In technischer Hinsicht war die folgenreichste mesoamerikanische Leistung die Nixtamalisierung, ein Verfahren, bei dem die Körner vor dem Mahlen gekocht und in einer alkalischen Lösung aus Kalk oder Feuerasche eingeweicht wurden. Die alkalische Behandlung löste die Fruchtwand, veränderte die Beschaffenheit des Teigs und setzte das bis dahin nicht verfügbare Niacin frei. Die Völker, die diese Technik übernahmen, trugen jahrtausendelang maiszentrierte Ernährungsweisen, ohne dass unter ihnen die Epidemien verzeichnet worden wären, die Europa Jahrhunderte später heimsuchen sollten.
Diese Geschichte hatte in Europa einen düsteren Gegenpart. Der Mais erreichte den Kontinent nach der Fahrt des Kolumbus im Jahr 1493 und verbreitete sich im 16. und 17. Jahrhundert rasch im Mittelmeerraum, in Afrika und in Asien, doch die alkalische Aufbereitung reiste nicht mit dem Saatgut. Bevölkerungen Norditaliens, Südfrankreichs, des Balkans und später der Südstaaten der USA gerieten in Abhängigkeit von Mais, der allein durch Mahlen und Kochen in Wasser zubereitet wurde, und zwischen dem 18. und dem 20. Jahrhundert erlebten sie verheerende Epidemien der Pellagra, einer Mangelkrankheit, deren ernährungsbedingte Ursache erst in den 1930er Jahren durch die Arbeiten von Joseph Goldberger und seinen Nachfolgern geklärt wurde. Die Episode gilt heute als Musterfall dafür, wie eine Esskultur unvollständig verpflanzt werden kann.
Carl von Linné beschrieb die Art förmlich im Jahr 1753 anhand von Material aus europäischen Gärten, fast drei Jahrhunderte nachdem die Pflanze den Atlantik überquert hatte und mehr als acht Jahrtausende nach ihrer Domestikation in Guerrero.
Schutzstatus
Der Kulturmais besitzt keine eigene Bewertung in der Roten Liste der IUCN, was für Kultigene normal ist, die nur unter landwirtschaftlicher Bewirtschaftung bestehen und deren Fortdauer nicht von natürlichen Beständen abhängt. Die Art steht ebenso wenig in einem Anhang des Washingtoner Artenschutzübereinkommens. Die Schutzsorge richtet sich daher auf zwei deutlich getrennte Felder.
Das erste ist die Lage der wilden Verwandten. Zea diploperennis wird in der Roten Liste als gefährdet geführt und überdauert auf wenigen Quadratkilometern in der Sierra de Manantlán in Mexiko, wo das Gebiet eben wegen dieses Vorkommens zum Biosphärenreservat erklärt wurde. Zea nicaraguensis steht noch prekärer da, mit einem auf wenige Tausend Individuen geschätzten Bestand auf einem winzigen Streifen der nicaraguanischen Küstenebene, der durch Entwässerung von Feuchtgebieten und Siedlungswachstum bedroht ist. Die übrigen Teosinte-Bestände leiden unter Lebensraumzerschneidung, Beweidung und dem Vorrücken der Agrargrenze.
Das zweite Feld ist die genetische Erosion innerhalb der angebauten Art selbst. Die Ablösung lokaler Sorten durch einheitliche Handelshybriden hat die für die Züchtung verfügbare genetische Basis weltweit verengt. Die Antwort kam über die Ex-situ-Erhaltung, mit der Genbank des CIMMYT in Mexiko, die die weltweit größte Sammlung von Mais- und Teosinte-Akzessionen verwahrt, und über die Erhaltung auf dem Betrieb, in Brasilien getragen von Programmen der Embrapa und von Netzwerken saatgutbewahrender Landwirte im Süden und im Nordosten.
Wissenswertes
- Die Zahl der Kornreihen an einem Kolben ist stets geradzahlig, Folge eines Entwicklungsmusters, bei dem jedes weibliche Ährchen zwei benachbarte Blüten hervorbringt. Kolben mit ungeraden Reihenzahlen kommen praktisch nicht vor.
- Jeder Faden des Maisbarts gehört zu einer einzigen Blüte und muss mindestens ein Pollenkorn auffangen, damit sich ein Korn bildet. Die unregelmäßigen Lücken an schlecht bestäubten Kolben sind das genaue Abbild dessen, welche Narben ohne Pollen blieben.
- Mais betreibt Fotosynthese über den C4-Weg, einen Mechanismus, der Kohlendioxid anreichert und die Fotorespiration mindert. Das erklärt die Leistung der Kultur bei hoher Temperatur und starker Einstrahlung, Bedingungen, unter denen C3-Getreide wie Weizen an Effizienz verlieren.
- Barbara McClintock entdeckte die beweglichen genetischen Elemente, die sogenannten Transposons, beim Studium der unregelmäßigen Vererbung der Kornfarbe beim Mais, eine Arbeit, die ihr 1983 den Nobelpreis für Physiologie oder Medizin einbrachte, mehr als drei Jahrzehnte nach den Originalveröffentlichungen.
- Der Teosinte galt so lange als eigene Gattung, dass seine Vereinigung mit Zea die Fachwelt bis heute spaltet, und die Annahme, der Mais stamme von ihm ab, wurde von einem Großteil der Wissenschaft abgelehnt, bis die molekularen Analysen der 1990er Jahre sie bestätigten.
Hinweis: Dieser Inhalt dient nur zur Information und ersetzt keine professionelle medizinische Beratung. Konsultieren Sie vor der Anwendung von Heilpflanzen einen Arzt oder Phytotherapeuten, insbesondere in der Schwangerschaft, in der Stillzeit oder bei Einnahme von Medikamenten.
Referenzen und wissenschaftliche Studien
Peer-Reviewed Wissenschaftliche Studien (2)
- DOI2004 Doebley, J. F. The genetics of maize evolution. Annual Review of Genetics, 38, 37-59. 2004. ↗
- DOI2009 Piperno, D. R., Ranere, A. J., Holst, I., Iriarte, J., Dickau, R. Starch grain and phytolith evidence for early ninth millennium B.P. maize from the Central Balsas River Valley, Mexico. Proceedings of the National Academy of Sciences, 106(13), 5019-5024. 2009. ↗
Ergänzende Lektüre (5)
- CIMMYT. Maize Germplasm Bank. Centro Internacional de Mejoramiento de Maíz y Trigo, El Batán, Mexiko. ↗
- International Plant Names Index (IPNI). Zea mays L. Royal Botanic Gardens, Kew; Harvard University Herbaria; Australian National Botanic Gardens. ↗
- IUCN. The IUCN Red List of Threatened Species. Internationale Union zur Bewahrung der Natur. ↗
- Linnaeus, C. Species Plantarum, Bd. 2, S. 971. Stockholm. 1753. ↗
- POWO. Plants of the World Online. Zea mays L. Royal Botanic Gardens, Kew. ↗