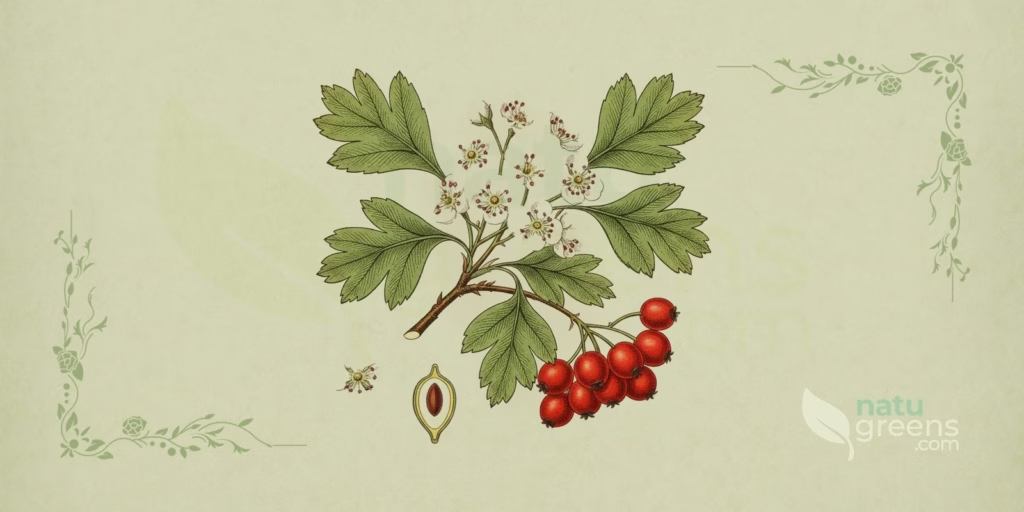
Crataegus laevigataは西ヨーロッパおよび中央ヨーロッパの古い森に生えるサンザシで、成熟した森の日陰の内部を占める小さな樹木であり、より知られた近縁種が生垣や開けた林縁を支配するのとは対照的である。バラ科(Rosaceae)に属し、これはリンゴ、セイヨウナシ、バラ、イチゴを含む科であり、その中では仁果類のグループであるナシ連(Maleae連)に位置する。イギリスでは、ヨーロッパの木本種に捧げられた中でも最も詳細な生態学的研究の一つが行われ、古い森の指標植物として機能し、その組成から森の歴史を読み取ることができる。
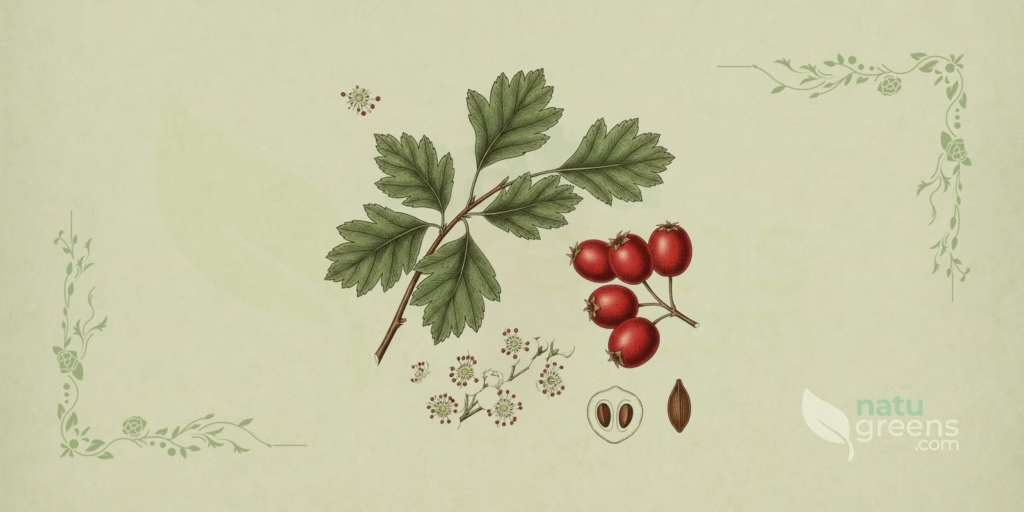
これほど混乱した命名法上の歴史を背負うヨーロッパの植物は少ない。二世紀以上にわたり、二花柱山査子とCrataegus monogynaはCrataegus oxyacanthaという一つの名前のもとで一つの存在として扱われてきたが、この二語名は最終的に、リンネがどちらの植物を指していたのか確定できないという曖昧さを理由に正式に否定された。この混乱の痕跡は古い文献、苗木業者のカタログ、商業ラベルに今も残り、20世紀以前の資料を読む者に、印刷された名称を受け入れる前に記載された標本を検討することを求める。
本ページは二花柱山査子の植物学プロフィールをまとめる。正式な分類、野外での識別形質、分布と環境、栽培条件、繁殖の暦、混同されやすい近縁種、記述的な化学組成、歴史的・民族誌的記録、そして保全状況である。このサイトの別の植物学プロフィールとしてCordia sinensis(灰色コルディア)も参照されたい。
分類
現在の植物分類における二花柱山査子の位置は以下の通りである。
- 界: 植物界(Plantae)
- 門: 維管束植物門(Tracheophyta、被子植物、Magnoliophyta)
- 綱: Magnoliopsida綱(真正双子葉類)
- 目: バラ目(Rosales)
- 科: バラ科(Rosaceae)
- 亜科: Amygdaloideae亜科
- 連: ナシ連(Maleae)
- 属: Crataegus L., 1753(サンザシ属)
- 種: Crataegus laevigata (Poir.) DC., 1825
基礎異名は1798年にEncyclopédie Méthodiqueで発表されたMespilus laevigata Poir.であり、Crataegus属への移行は1825年、Augustin Pyramus de CandolleによるProdromus Systematis Naturalis Regni Vegetabilis第2巻でなされた。IPNIの登録は著者名と原記載のページを確認している。
本属はバラ科の中でも最も難解な属の一つである。採用する体系によって承認される種数は約140種から千種以上まで幅があり、これは専門家の無知を反映するものではなく、グループの生物学的特性、すなわち広範な交雑、無融合生殖、多倍性が明確な境界に抵抗する中間形を生み出すことによる。
承認されている異名
- Crataegus coriacea Gand.
- Crataegus helvetica Walo Koch
- Crataegus oxyacantha f. laevigata (Poir.) Beck
- Crataegus oxyacanthoides Thuill.
- Crataegus palmstruchii Lindm.
- Crataegus subinermis Gand.
- Mespilus digyna Gray
- Mespilus intermedia Poir.
- Mespilus laevigata Poir.
- Mespilus oxyacanthoides (Thuill.) DC.
- Oxyacantha obtusata (DC.) Roem.
- Oxyacantha vulgaris (DC.) Roem.
Crataegus oxyacanthaという名称の否定
リンネはCrataegus oxyacanthaのもとに、今日では2つの異なる種として認められているものをまとめ、ヨーロッパのほぼ全域の地域研究者はこの二語名を包括的な用語として使い続けた。C. laevigataとC. monogynaを最初に分離したイギリスの植物誌は1843年のBabingtonのもので、両者を変種として扱いながらも、すでに独立した種である可能性を示唆していた。この曖昧さが正式に解決されたのは1974年、Byattがリンネの名称をどちらの植物にも確実には適用できないことを示し、その結果否定されたときであった。
さらに、種小名の綴りに関する小さな議論もある。Gutermannは2011年、De Candolleの出版物の読み方に基づき正しい形はlevigataであると主張したが、2012年にChristensenとTalentが行った原文の綿密な調査によりlaevigataが有効な綴りであることが確認された。
亜種
SellとMurrellの体系は、他の著者により変種として扱われる2つの種内分類群を認めている。亜種laevigataは分布域の西部と低地で優勢であり、イギリスにおける優勢な型で、葉の長さは15から35ミリメートル、ほぼ無毛で下面の葉脈腋に毛の房を欠く。亜種palmstruchiiは山地および東部でより頻繁に見られ、葉の長さは30から50ミリメートル、下面の脈がより密に有毛で、葉脈腋に毛の房があり、萼筒(ハイパンティウム)は有毛で、果実はより大きな楕円形で10から14ミリメートル×13から15ミリメートルである。
語源
属名Crataegusはギリシャ語のkrataigosに由来し、これは「力」または「頑丈さ」を意味するkratysから派生した。複合語の後半部分には複数の解釈があり、一部の著者は棘を指すakis(鋭い先端)と結びつけ、他の著者は家畜を囲い込める生垣を示唆するaix(ヤギ)と結びつける。三つの解釈はいずれも、木材の硬さと枝の武装という同じ植物の特性に収斂する。種小名laevigataはラテン語のlaevigare(滑らかにする、磨く)に由来し、葉の滑らかで光沢のある表面を表しており、この特徴は二花柱山査子に英名「滑らかなサンザシ」も与えている。
形態的特徴
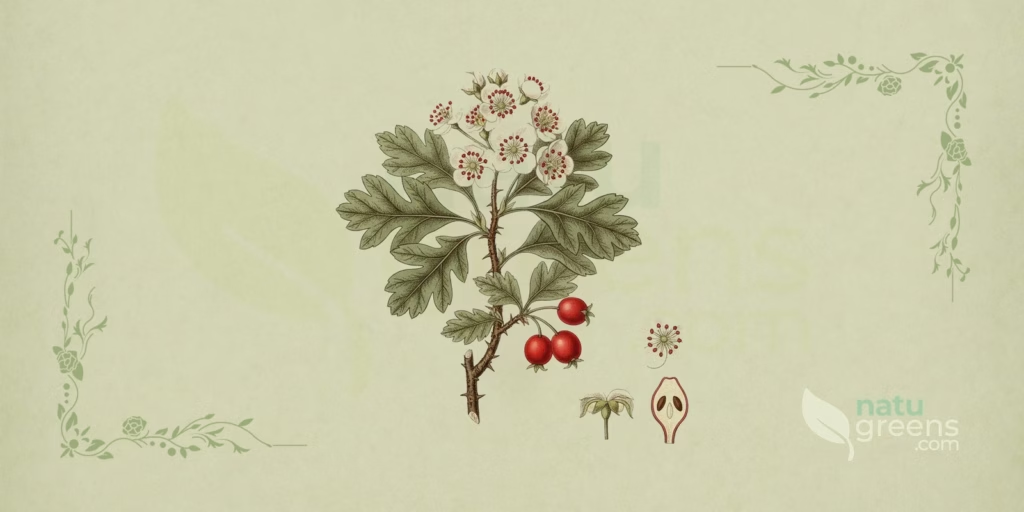
高さ8メートルにかなりの頻度で達し、例外的に12メートルに達する小型の落葉樹だが、同じくらいの頻度で無秩序な樹形を持つ多幹の低木としても現れる。樹冠は密で幅広く丸みを帯び、幹はその中にあまり奥まで伸びず、早くから分枝する。枝は開出または直立し、一般にC. monogynaより剛性が低く、先端が垂れる傾向がある。冬芽は卵形からほぼ球形で先端は丸く、長さ1.1から2.1ミリメートル、幅1.2から1.9ミリメートルで、暗褐色の芽鱗を持つ。
葉
葉は互生し、しばしば革質で、上面は濃緑色で光沢があり、下面は淡緑色である。若いときは両面の主脈に沿ってまばらな毛があるほかは無毛で、イギリスのC. monogynaに一般的な葉脈腋の毛の房を特徴的に欠く。輪郭は倒卵形からほぼ円形で、1から3対の鈍く浅い裂片を持ち、主脈までの距離の半分に達することはまれである。裂片は輪郭が丸く、長さより幅が広く、湾入部を除いて縁は欠刻状鋸歯縁で、基部の裂片には6から15個の鋸歯がある。
大きさは枝上の位置によって変化し、この変異は標本を採集する者にとって実用的な価値を持つ。長い枝の葉は最も大きく最も深く裂け、長さ1.9から7.2センチメートル、幅1.8から5.1センチメートルである。短い枝のものは長さ2.0から6.0センチメートル、幅1.5から3.2センチメートルの範囲にあり、花をつける枝のものはさらに小さく、裂片は1対か2対、あるいは全くない。主脈は直線的であるか葉先に向かって前方に湾曲し、これは後方に湾曲するC. monogynaとは対照的である。基部はくさび形または丸く、先端は鋭尖形で、葉柄は6から20ミリメートル、托葉は長い枝において目立ち葉状である。
花
花は主に短い枝につき、幅2.5から5.0センチメートルの緩い散房花序に3から11個集まる。花柄は6から30ミリメートルで無毛かまれに綿毛状であり、これは花柄が有毛であるC. monogynaとの区別に役立つ形質である。各花は両性で直径15から18ミリメートル。萼片は5枚で広三角形、長さと幅がほぼ等しく、縁は全縁で先端は鋭い。5枚の花弁は白色または淡紅色で条線のある乳頭突起を持ち、長さ5から10ミリメートル、幅5から9ミリメートル。萼筒は3から4ミリメートルで無毛である。
雄しべは17から22本で、花糸は淡色、葯は淡紅色でまれに紫がかる。花柱は通常2本で、単独の花では1から5本まで変異することがあり、柱頭は黄色。花柱の数はこのグループで最も信頼できる識別形質であり、果実の核の数に直接反映され、乾燥標本でも判読可能なまま残る。
果実と種子
果実は成熟時に暗赤色となる球形から楕円形の仁果で、大半の標本で直径8から10ミリメートル、記録された変異幅は6から14ミリメートル、長さ6から12ミリメートルである。平均容積は約1.60立方センチメートルで、C. monogynaで測定された約0.73立方センチメートルの2倍以上である。表面は通常無毛で基部に突起を欠き、先端には残存し反曲するか開出する萼片の冠を持つ。果肉は黄色みを帯び、水分含量は68から77パーセントである。
核、すなわちピレンは通常2個で、それが由来する花の花柱の数に対応する。長さは約5から6ミリメートルで、背側と腹側両方に窪みがあり、より鈍い先端によってC. monogynaの核と微妙に異なり、姉妹種の尖った先端とは対照的である。各果実は平均2.1から2.8個の種子を含み、個々の重さは60から68ミリグラムで、97から130ミリグラムのC. monogynaより小さい。散布生態学の研究では、これらの果実は無毒で、消費する動物(ヒトを含む)にとってリスクがないと分類されている。
樹皮と枝
樹皮は灰褐色から橙褐色で、樹齢とともに裂けて溝状になる。小枝はつや消しの灰褐色で密に配置され、若いときは光沢があり無毛である。棘はC. monogynaより少なく短く、長さ6から15ミリメートルであり、この違いは、生垣の個体群ほど食害にさらされない本種の森林性の樹形と一致している。
分布と生育地
二花柱山査子は西ヨーロッパおよび中央ヨーロッパ原産である。自生域はブリテン諸島から東はチェコとハンガリーまで広がり、ルーマニアとウクライナにもほぼ確実な自生の記録がある。北はスウェーデン南部、ラトビア、エストニアに達し、南はスペインのピレネー山脈とイタリアに達し、おそらくシチリア島も含む。分類学的基礎データはさらにオーストリア、ベルギー、ベラルーシ、コルシカ島、デンマーク、スロバキア、スイス、ドイツ、フランス、オランダ、ノルウェー、ポーランド、ヨーロッパロシアでの分布を記録している。この地域の中央北部で最も広く分布し、ベルギーのような周縁部では稀少となり、ギリシャには分布しない。
ブリテン諸島では、分布はC. monogynaよりもかなり限定的である。二花柱山査子はイングランドの南部と東部に集中し、ミッドランズまで自然に及ぶことが、その英語の慣用名の由来となった。スコットランドとウェールズでは自生植物としてはほぼ見られず、スコットランドの記録はほぼ常に植栽された個体に対応する。アイルランドで自生かどうかは議論の的であり、複数の州に成木があり、1895年の雑種の標本記録もあるが、最も支持される仮説は、議会主導の囲い込み期に導入されたイギリスの苗木業者の材料に由来するというものである。
自生域外では、二花柱山査子は様々な温帯地域にもたらされた。ワシントン州のガルフ諸島、カナダ、アメリカ合衆国東部で帰化しており、19世紀にはタスマニアとオーストラリアの他の地域に生垣形成のために導入されたが、現在ではいくつかの州で有害雑草とみなされている。さらに日本、ニュージーランド、タンザニア、西アフリカ、そしてインドの温帯ヒマラヤ(標高1,800から3,000メートル)からの記録もある。
典型的な生育地は形態と同じくらい本種を特徴づける。これは日陰に耐える古い森の植物であり、成熟した森の内部、林縁、古い生垣、粘土質土壌の斜面に見られる。ロームから粘土までの重い基質を好み、白亜、石灰岩、鮞状岩土壌、フリント質粘土を一貫して避け、この制約がイングランドのミッドランズと南東部のウィールドへの集中を説明する。イギリスにおけるpHのエレンベルク指標値は7で、弱酸性から弱塩基性の条件に対応する。標高は西部の海抜0メートルから、ポーランドのスデーティ山脈で810メートル、スロベニアで956メートル、タトラ山脈で1,281メートル、イタリアのピアーノ・ルッジョで1,560メートルに達する。
栽培
二花柱山査子は亜大西洋性気候の種であり、冷涼な温帯気候を好む。イギリスで記録された平均気温は1月が摂氏3.5度、7月が16.2度で、年間降水量は約674ミリメートルであり、C. monogynaが占める条件よりやや温暖で乾燥している。中央・北ヨーロッパの冬をよく耐え、温帯域での生育を制限するような温度要件はない。
土壌については、ケイ酸質や中程度の酸性を含む幅広い基質で生育し、かなりの水分変動に耐える。しかしこの幅の中でも、特に重いローム質土壌と粘土質土壌で最も良く育つ。耐陰性は二花柱山査子を際立たせる農学的特性であり、閉じた樹冠の下でも容易に開花し、C. monogynaが定着しない状況である古い萌芽更新林の下層で優勢となる。撹乱や伐採によって光が増加する場所では、この関係は逆転し、本種は勢力を失う。
種子による繁殖
種子は硬い種皮と生理学的な低温要求が組み合わさった二重休眠を示す。前処理なしでは、発芽は18か月経過するまで、あるいは生産後3回目の生育期まで起こらないこともある。ポーランドの試験で確立されたプロトコルは、湿った培地での温暖層積処理からなり、摂氏20度から30度の間で変動する温度を16から20週間、続いて3度での低温期を16から18週間行うもので、この期間の終わりにはすでに幼根が出現している。この処理により発芽率は2から4パーセントから87から94パーセントに上昇し、播種から4から6週間で実生が出現する。
濃硫酸による2から3時間の化学的傷付け処理に続く24時間の水への浸漬により、温暖期を16から20週間からわずか4週間に短縮でき、同等の発芽率が得られる。種子は正常種子型で、水分含量9から13パーセントまで乾燥させても生存力を失わず、摂氏マイナス3度での12か月の保存にも発芽率のわずかな低下で耐える。発芽は地上性で、幼根は細く短い側根を持つ主根へと発達する。
栄養繁殖と健全性
観賞用品種は接ぎ木によって繁殖され、これは種子では伝わらない花の形質も保存する。二花柱山査子は剪定への反応が良く、萌芽更新体制下で大きな株立ちを形成し、これが管理された森林における本種の存在を助長している。また、セイヨウナシの矮化台木として評価されており、Pyrus communisやその他のナシ連クローンとの適合性が報告されている。
栽培における弱点は健全性である。この種を含むヨーロッパのサンザシ類は、Erwinia amylovoraによる火傷病に非常に罹りやすく、品種’Paul’s Scarlet’および’Rosea Flore Pleno’は最も被害を受けやすいものに含まれる。植栽は近隣のリンゴやセイヨウナシにとって接種源の貯蔵庫として機能しうるが、C. laevigataに関連するリスクは、その森林性の生育とより果樹園から離れた分布により、C. monogynaより小さい。これに加えて、うどんこ病菌Podosphaera clandestina、Juniperusを中間宿主とするサビ菌類Gymnosporangium属、そしてEntomosporium thuemeniiとDiplocarpon mespiliによる斑点病がある。
フェノロジー
開花は4月から6月に起こり、分布域最北端のスウェーデンではこの期間の終わりにずれ込む。イングランド南東部では典礼暦との一致から、二花柱山査子は現地で「聖霊降臨祭の花」という名で呼ばれてきた。オランダの長期データは顕著な早期化を記録しており、平均的な開花開始日は1940年から1968年のシリーズでは5月17日だったのが、2001年から2010年のシリーズでは5月1日となった。花は葉が完全に展開する前に開き、樹木よりも低木の方が早く咲く。
本種はC. monogynaより早く展葉し、約8から14日早く開花する。この先行は生殖的隔離を構成するには不十分であり、両種の開花期の重なりは40パーセントに達し、これが雑種の継続的な形成を支えている。管理下の条件では、個々の植物は12日間開花状態を維持し、孤立した花は8日間持続した。
花は雌性先熟である。最も外側の雄しべの葯は開花から1から2日後に花粉を放出し、暖かい日には花糸が内側に湾曲し、この配置は自家受粉を機構的には可能にする。しかし二花柱山査子は大部分が自家不和合性であり、交配実験では他家受粉下で花の30から59パーセントが結実したのに対し、自家受粉下ではわずか2パーセントであった。受粉は虫媒性で、主に蜜と花の香り(トリメチルアミンの放出による)に引き寄せられたハチ目とハエ目による。花粉の生存率は96から98パーセントと高い。
果実は約106日かけて発達し、これはC. monogynaの89日と対照的であり、6月から11月にかけて成熟し、北方の個体群ではより遅く成熟する。成熟した果実は約64日間植物についたままであり、樹木は平均82日間成熟した果実を保持し、これはC. monogynaの150日と対照的である。散布は主に果実食の鳥類によるもので、クロウタドリ、ワタリツグミ、ノハラツグミ、ウタツグミが顕著であり、種子は消化管を通過するか吐き戻される。土壌中に永続的な種子バンクはなく、この特徴により更新は新しい種子の散布に依存する。
近縁種と混同されやすい種
野外でのCrataegus属の同定は困難であることが知られており、確実な同定のためには調査する標本に成熟した果実と短い側枝の葉を含める必要がある。旺盛な徒長枝の葉だけで判断された標本は容易に誤りにつながる。
Crataegus monogynaとの識別
これはこのグループにおける中心的な混同であり、C. oxyacanthaという名称が否定された理由である。両種を分ける形質は以下の通りである。
- 果実の核: C. laevigataは通常2個のピレンを持ち、時に3個に達する。C. monogynaは1個のピレンを持ち、時に2個。
- 棘: C. laevigataではより少なく短く6から15ミリメートル、C. monogynaではより長く頻繁である。
- 花柱: C. laevigataでは通常2本で1から5本まで変異し、C. monogynaでは1本のみ。
- 葉の裂片: C. laevigataでは主脈までの距離の半分にまれにしか達しない浅く丸い1から3対の裂片、C. monogynaではその距離の3分の2を超える5から7対の深く鋭い裂片。
- 主脈: C. laevigataでは直線的または前方に湾曲、C. monogynaでは後方に湾曲。
- 花柄と毛の房: C. laevigataでは無毛の花柄と毛の房のない葉脈腋、イギリスのC. monogynaでは有毛の花柄と毛の房のある葉脈腋。
- 花の大きさ: C. laevigataでは直径15ミリメートル以上、C. monogynaでは15ミリメートルまで。
複雑なのは、両種が相互に稔性を持ち、中間的な形態を示し花柱1から2本と同数の核を持つ雑種Crataegus × media Bechst.を生じることである。交雑にとって唯一意味のある障壁は生育地の空間的隔離であり、森林の断片化によって個体群が近づいた場所では雑種が普通となり、イギリスのいくつかの地域ではC. laevigataそのものよりも雑種の方が多いことさえある。したがって花柱が2本の標本が自動的にC. laevigataであるとは限らず、複数の形質が同じ方向を示すときに診断の信頼性が高まる。
Crataegus mexicanaとの識別
テホコテとの区別は即座に行え、微妙な形質に依存しない。メキシコ産の種は直径1.5から3センチメートルの仁果を実らせ、成熟時には金黄色からオレンジ色になるのに対し、ヨーロッパ産の種の果実は直径8から10ミリメートルの暗赤色である。C. mexicanaの葉は菱形楕円形から卵状披針形で鋸歯縁を持ち明瞭な裂けを欠くが、C. laevigataの葉は倒卵形で裂けている。メキシコ産の花序は散形に2から6花を集めるのに対し、ヨーロッパ産の種は散房花序に3から11花を集める。これに加えて、完全に分離した分布域(C. mexicanaはメキシコとグアテマラの山地に限られる)と、新熱帯産の種でより革質な葉が持続することも識別点となる。
他の種と地方名の曖昧さ
C. monogynaのほかにも、二花柱山査子はC. rhipidophyllaと交雑してC. × macrocarpaを生じ、C. lindmaniiと交雑してC. × calycinaを形成する。さらに、セイヨウカリンであるMespilus germanicaとの属間雑種、× Crataemespilus grandifloraと呼ばれるものが記録されており、カリンをサンザシに接ぎ木することで得られる接木キメラであるCrataegomespilusも存在する。
日本語における地方名についての注意が必要である。日本語にはこの属のヨーロッパ産各種を区別する確立された慣用名は存在しない。ここでは「二花柱山査子」という名称を、本種を特徴づける花柱の数に基づきC. laevigataを指すために記述的に用いており、より広く分布するC. monogynaには「一花柱山査子」を用いる。慣用名のみを用いた文章に接する場合、種の同定は引用されている二語名、また可能であれば記載された形質を確認することにかかっている。
植物化学
本節は二花柱山査子の文書化された化学組成を記述するものである。これは分析的な特徴づけであり、ヒトへの作用とは一切関係がない。
C. laevigataで測定された総フェノール含量は新鮮重100グラムあたり1,288ミリグラムに達し、総フェノール酸は100グラムあたり964ミリグラムで、これらはC. monogynaに近い値であり、同じ研究で分析された他の7種の低木より高い。ヨーロッパの野生標本の開花部では、総フェノール含量は乾燥重量1キログラムあたり3から19グラムの範囲で、平均は1キログラムあたり12グラムであった。
液体クロマトグラフィーと質量分析を組み合わせた特徴づけにより、二花柱山査子の葉から54種類、花から47種類の化合物が同定され、これはC. monogynaの38種類と41種類と対照的である。代表されるクラスにはクロロゲン酸その他のフェノール酸、プロアントシアニジン、フラボノイド配糖体、フラボノイドアグリコンが含まれる。記載されたフラボノイドにはアピゲニン、カテキン、エピカテキン、ヒペロシド、イソケルシトリン、イソビテキシン、プロシアニジンB-2、ケルセチン、ルチン、ビテキシンが挙げられる。プロアントシアニジンはスロベニア産の材料で1キログラムあたり40.6グラムに達し、花の総フラボノイド含量は比較された10種のCrataegus属の中で最も高かった。
この組成は分類学的な関心を持つ。ビテキシンとその誘導体は本属のヨーロッパ産各種の葉でより高濃度に存在するのに対し、ルチンは北米産の種で顕著に濃縮される。C. laevigataにおけるイソオリエンチン、オリエンチン、8-メトキシケンフェロール-3-O-グルコシド、4”-アセチルビテキシン-2”-O-ラムノシドの不在は、C. monogynaから分ける補助的な化学的基準として提案されており、これは植物化学に種の区分を支える補助的な役割を与えている。
トリテルペンの中では、オレアノール酸とウルソール酸が主要な成分である。揮発性有機化合物の分析では、花からの放出物中にセスキテルペンのカリオフィレンとフムレンが検出され、ファルネセンとモノテルペンのリモネンは開花後に出現する。二花柱山査子からはアルカロイドも真のサポニンも検出されなかったが、擬サポニン配糖体トルメントシドは同定された。シュウ酸結晶は植物のすべての部位に存在し、乾燥葉重量の0.065パーセントを占める。
代謝物の濃度は環境条件に反応する。10日間の乾燥ストレスにさらされた実生では、エピカテキンとヒペロシドの増加とビテキシンおよびアセチルビテキシンの減少が見られ、一方摂氏4度の低温ストレスはビテキシン、エピカテキン、ヒペロシド、ケルセチン、アセチルビテキシンを上昇させた。二花柱山査子はさらに、汚染土壌で栽培された場合、根と葉に重金属を蓄積する。
歴史と民族植物学
C. laevigataとC. monogynaの進化的分岐は、葉緑体DNA解析により約1000万年前と推定されており、これは両者の形態的類似性を、相当な時間間隔にわたる形態保存の事例としている。しかし化石記録は両者を区別しない。材や炭化材の大型化石は識別不可能であり、種子についても通常同様である。花粉粒は統計的に区別することができ、C. laevigataのものは主に球形で28から40マイクロメートル、低いレリーフの条線を持つのに対し、C. monogynaでは30から44マイクロメートルの細長い粒で高いレリーフを持つが、この基準は古植物学の実践では応用されてこなかった。
サンザシは中石器時代以来ヨーロッパの森で普通に見られた植物であり、新石器時代からノルマン時代に至るあらゆる文化期がこの属の記録を残している。同定された先史時代の材料の大部分はC. monogynaに対応し、これは開けつつある景観でより効率的なパイオニア種であるが、C. laevigataが同定の困難さのために過小評価されてきた可能性は依然として残る。
木材と植物についての歴史的に記録された用途は多様である。緻密で均質な木理を持つ木材は、道具の柄や杖の製作に用いられた。樹皮と根は黄色または褐色の染料をもたらし、樹皮はなめし革に使われ、この慣行はアルジェで記録されている。果実は生で食べられ、ヨーロッパの様々な地域でジュース、ジャム、蒸留酒に加工され、冬季消費のために乾燥された。焙煎した核はコーヒーの代用品として用いられた。イタリアでは、サンザシは農地を囲うためによく植えられたが、この機能は機械化と機械の通行の必要性により失われ、これらの生垣はほぼ完全に姿を消した。
古代の薬物学の分野では、その記録は1世紀のディオスコリデスにまで遡り、彼はギリシャ語の名称で二花柱山査子を指し、それが後に否定されるリンネの二語名の由来となった。ある植物学的特徴ではなく、まさにこの命名法上の経緯こそが、Crataegus oxyacanthaを長らくヨーロッパの薬学文献に定着させた理由であり、そのためこの二語名は今なお、ヨーロッパの2種のいずれかを区別なく記述する資料に登場し続けている。
保全状況
二花柱山査子はIUCNレッドリストで軽度懸念に評価されており、これは本種の広いヨーロッパ分布と一致するカテゴリーである。ルクセンブルクの維管束植物レッドリストにも掲載されており、同じく軽度懸念のカテゴリーで、C. monogynaおよびC. rhipidophyllaと並んでいる。
しかし、これらの数値は注意に値するプロセスを覆い隠している。イギリスにおけるC. laevigataの記録頻度は1962年以降ほとんど変化していないが、この見かけ上の安定性の一部は自生域の内外での植栽によるものであり、別の一部は二花柱山査子が雑種C. × mediaと混同されやすいことによるもので、一部の新しい記録は実際には雑種に対応している。この見かけ上の安定性の背後には、遺伝的に純粋な個体群、特にイングランド南東部における減少の強い兆候が隠れている。
この機構はよく理解されている。森林の撹乱と断片化は、それまで日陰性の二花柱山査子のみが占めていた環境へのC. monogynaの侵入の余地を開き、両種が完全に相互稔性であるため、その結果は交雑とそれに続く遺伝子浸透である。文献の最も悲観的な読み方では、1975年の時点ですでに、遺伝子浸透が進むにつれて純粋なC. laevigataが完全に消失しうることが示唆されており、同様の問題はベルギーとポーランドでも確認されている。比較的純粋な個体群は、フランス北東部の広大な森林のように、森林の塊が大きくあまり断片化されていない場所で存続している。
分布域の周縁部では状況が逆転する。自生域の最南東端に位置するブルガリアでは、雑種C. × mediaが非常に稀であり、法的保護の必要性から国の絶滅危惧種目録への掲載が提案されている。土壌中に永続的な種子バンクがないことは脆弱性の要因を加えており、個体群の回復は完全に新しい鳥による散布に依存しているためである。
豆知識
- 二花柱山査子の分布は予想外の情報源から記録されている。サンザシの核はすでにツル、クマ、有蹄類の糞から同定されており、捕らえられたハトの素嚢から得た核をハヤブサの止まり場が集めていたという古い記録も存在する。
- De Candolleは1825年、七面鳥に二花柱山査子の核を食べさせるという園芸技術を記録しており、鳥の消化管を通過することで、未処理の種子と比べて発芽が約1年早まったという。
- 花の香りはヒトの嗅覚にとって不快であり、これは腐敗した魚の臭いと結びつく同じ化合物であるトリメチルアミンの放出によるもので、これこそが受粉の一部を担うハエ目を引き寄せている。
- デンマークの温室実験は、二花柱山査子がいかに送粉者に依存しているかを測定した。ツツハナバチMegachile rotundataが訪れた植物は269個の果実を実らせたのに対し、昆虫にアクセスできない植物はわずか1個の果実しか実らせなかった。
- 八重咲きの赤い花を持つ品種’Paul’s Scarlet’は1880年頃、品種’Rosea Flore Pleno’の枝変わりとして生まれ、その帰属は曖昧である。イギリスと北米ではC. laevigataに帰属するとされる一方、ヨーロッパ大陸では通常、雑種C. × mediaの品種として扱われる。
- 小さな蛾Coleophora coracipennellaは二花柱山査子の花芽に穴を開けて花粉を食べ、オックスフォードシャーで調査された個体群のある年、花の20パーセントを不稔にし、その年の果実生産に直接影響を与えた。
- 年に2回開花するというイギリスの伝統に結びついた伝説的なサンザシ、グラストンベリー・ソーンは二花柱山査子には属さない。これはC. monogynaの品種’Biflora’であり、この帰属は一般向けの文章でしばしば混同されている。
- サウスウッドの古典的な調査では、イギリスのサンザシに関連する昆虫種が149種数えられており、この数字はこれらの樹木が動物相を支える役割の指標となるが、オークで記録された284種にはかなり及ばない。
ご注意:本コンテンツは情報提供を目的としており、医療専門家の助言に代わるものではありません。薬用植物を使用する前に、特に妊娠中、授乳中、または薬を服用中の場合は、医師または専門家にご相談ください。
参考文献と科学的研究
引用文献16件をすべて見る
査読済み科学研究 (3)
- DOI2021 Thomas, P. A., Leski, T., La Porta, N., Dering, M., Iszkuło, G. Biological Flora of the British Isles: Crataegus laevigata. Journal of Ecology, 109(1), 572-596. 2021. ↗
- DOI2012 Edwards, J. E., Brown, P. N., Talent, N., Dickinson, T. A., Shipley, P. R. A review of the chemistry of the genus Crataegus. Phytochemistry, 79, 5-26. 2012. ↗
- DOI2021 Fichtner, A., Wissemann, V. Biological Flora of the British Isles: Crataegus monogyna. Journal of Ecology, 109, 541-571. 2021. ↗
補足資料 (13)
- 1992 Christensen, K. I. Revision of Crataegus sect. Crataegus and nothosect. Crataeguineae (Rosaceae-Maloideae) in the Old World. Systematic Botany Monographs, 35, 1-199. 1992.
- 1974 Byatt, J. I. Application of the names Crataegus calycina Peterm. and C. oxyacantha L. Botanical Journal of the Linnean Society, 69, 15-21. 1974.
- 1975 Byatt, J. I. Hybridization between Crataegus monogyna Jacq. and C. laevigata (Poiret) DC. in south-eastern England. Watsonia, 10, 253-264. 1975.
- 2012 Christensen, K. I., Talent, N. Crataegus laevigata or C. levigata (Rosaceae), a paleographic analysis. Phyton (Horn, Austria), 52(2), 195-201. 2012.
- de Candolle, A. P. Prodromus Systematis Naturalis Regni Vegetabilis, pars 2. Paris. 1825.
- Poiret, J. L. M. Mespilus laevigata. In: Encyclopédie Méthodique, Botanique, 4(2), 439. Paris. 1798.
- 2006 Bujarska-Borkowska, B. Seed dormancy breaking in Crataegus laevigata. Dendrobiology, 56, 3-11. 2006.
- 2015 Karar, M. G. E., Kuhnert, N. UPLC-ESI-Q-TOF-MS/MS characterization of phenolics from Crataegus monogyna and Crataegus laevigata leaves, fruits and their derived drops. Journal of Chemical Biology & Therapeutics, 1, e102. 2015.
- 2012 Lo, E. Y. Y., Donoghue, M. J. Expanded phylogenetic and dating analyses of the apples and their relatives (Pyreae, Rosaceae). Molecular Phylogenetics and Evolution, 63, 230-243. 2012.
- 1991 Eriksson, O., Ehrlén, J. Phenological variation in fruit characteristics in vertebrate-dispersed plants. Oecologia, 86, 463-470. 1991.
- 2014 Sell, P., Murrell, G. Flora of Great Britain and Ireland, vol. 2. Cambridge University Press. 2014.
- International Plant Names Index. Crataegus laevigata (Poir.) DC. Royal Botanic Gardens Kew, Harvard University Herbaria and Australian National Herbarium. Registro 723644-1. ↗
- Plants of the World Online. Crataegus laevigata (Poir.) DC. Royal Botanic Gardens Kew. ↗