Crataegus laevigata ist der Weißdorn der alten Wälder West- und Mitteleuropas, ein kleiner Baum, der das schattige Innere reifer Bestände einnimmt, während seine bekanntere Schwesterart die Hecken und offenen Säume beherrscht. Er gehört zu den Rosaceae, jener Familie, die Apfel, Birne, Rose und Erdbeere vereint, und steht dort in der Tribus Maleae, der Gruppe mit Kernobstfrüchten. In Großbritannien, wo ihm eine der ausführlichsten ökologischen Darstellungen zuteilwurde, die je einer europäischen Gehölzart gewidmet wurden, dient er als Zeigerart für historisch alte Wälder, ein Status, der es erlaubt, die Geschichte eines Waldes aus seiner Zusammensetzung zu lesen.
Wenige europäische Pflanzen schleppen eine derart verworrene Namensgeschichte mit sich. Über zwei Jahrhunderte lang galten diese Art und Crataegus monogyna als ein und dieselbe Pflanze, unter dem Namen Crataegus oxyacantha, einem Binom, das schließlich wegen Mehrdeutigkeit förmlich verworfen wurde, gerade weil sich nicht klären ließ, welche der beiden Pflanzen Linné vor Augen hatte. Die Spur dieser Verwechslung überlebt in der älteren Literatur, in Baumschulkatalogen und auf Handelsetiketten, und sie zwingt jeden, der Quellen vor dem zwanzigsten Jahrhundert liest, das beschriebene Material zu prüfen, bevor er den darüberstehenden Namen annimmt.
Diese Seite fasst das botanische Profil der Art zusammen: formale Einordnung, Bestimmungsmerkmale im Gelände, Verbreitung und Standort, Ansprüche im Anbau, Fortpflanzungskalender, nahe Verwandte, mit denen sie verwechselt wird, beschreibende chemische Zusammensetzung, historische und ethnographische Belege sowie Erhaltungssituation.
Taxonomie
Die Stellung der Art in der heutigen botanischen Systematik ist die folgende:
- Reich: Plantae
- Abteilung: Tracheophyta (Magnoliophyta, Bedecktsamer)
- Klasse: Magnoliopsida (Eudikotyledonen)
- Ordnung: Rosales
- Familie: Rosaceae
- Unterfamilie: Amygdaloideae
- Tribus: Maleae
- Gattung: Crataegus L., 1753
- Art: Crataegus laevigata (Poir.) DC., 1825
Das Basionym lautet Mespilus laevigata Poir., veröffentlicht 1798 in der Encyclopédie Méthodique, und die Überführung in die Gattung Crataegus geht auf Augustin Pyramus de Candolle zurück, im zweiten Band des Prodromus Systematis Naturalis Regni Vegetabilis von 1825. Der IPNI-Eintrag bestätigt die Autorschaft und die Seite der Erstveröffentlichung.
Die Gattung zählt zu den schwierigsten der Familie. Je nach zugrunde gelegter Bearbeitung schwankt die Zahl der anerkannten Arten zwischen etwa 140 und mehr als tausend, eine Spannweite, die nicht das Unwissen der Fachleute widerspiegelt, sondern die Biologie der Gruppe: ausgedehnte Hybridisierung, Apomixis und Polyploidie bringen Übergangspopulationen hervor, die sich scharfen Grenzen entziehen.
Anerkannte Synonyme
- Crataegus coriacea Gand.
- Crataegus helvetica Walo Koch
- Crataegus oxyacantha f. laevigata (Poir.) Beck
- Crataegus oxyacanthoides Thuill.
- Crataegus palmstruchii Lindm.
- Crataegus subinermis Gand.
- Mespilus digyna Gray
- Mespilus intermedia Poir.
- Mespilus laevigata Poir.
- Mespilus oxyacanthoides (Thuill.) DC.
- Oxyacantha obtusata (DC.) Roem.
- Oxyacantha vulgaris (DC.) Roem.
Die Verwerfung des Namens Crataegus oxyacantha
Linné fasste unter Crataegus oxyacantha zusammen, was man heute als zwei getrennte Arten erkennt, und regionale Autoren in fast ganz Europa verwendeten das Binom weiterhin als Sammelbegriff. Die erste britische Flora, die C. laevigata von C. monogyna trennte, war die von Babington aus dem Jahr 1843, die beide als Varietäten führte, dabei aber bereits andeutete, sie könnten eigenständige Arten sein. Formal geklärt wurde die Mehrdeutigkeit erst, als Byatt 1974 zeigte, dass sich der linnésche Name auf keine der beiden Pflanzen sicher anwenden ließ, was zu seiner Verwerfung führte.
Daneben besteht eine kleinere Auseinandersetzung über die Schreibweise des Epithetons. Gutermann vertrat 2011 die Auffassung, die korrekte Form müsse levigata lauten, gestützt auf seine Lesart der Veröffentlichung von De Candolle, doch die eingehende Prüfung des Originals durch Christensen und Talent im Jahr 2012 bestätigte laevigata als gültige Schreibweise.
Unterarten
Die Bearbeitung von Sell und Murrell erkennt zwei infraspezifische Einheiten an, die andere Autoren als Varietäten führen. Die subsp. laevigata überwiegt im Westen des Areals und im Flachland und ist in Großbritannien die vorherrschende Form, mit Blättern von 15 bis 35 Millimetern, nahezu kahl und ohne Haarbüschel in den Nervenachseln der Blattunterseite. Die subsp. palmstruchii tritt häufiger im Gebirge und im Osten auf, mit Blättern von 30 bis 50 Millimetern, unterseits dichter behaarten Nerven, vorhandenen achselständigen Haarbüscheln, behaartem Hypanthium und größeren, ellipsoiden Früchten von 10 bis 14 Millimetern auf 13 bis 15 Millimeter.
Etymologie
Der Gattungsname Crataegus stammt vom griechischen krataigos, abgeleitet von kratys, Kraft oder Härte. Der zweite Teil der Zusammensetzung lässt mehr als eine Lesart zu: Manche Autoren verbinden ihn mit akis, scharfe Spitze, mit Bezug auf die Dornen, andere mit aix, Ziege, womit die lebende Hecke gemeint wäre, die eine Herde zurückhält. Alle drei Deutungen laufen auf dieselben Eigenschaften der Pflanze hinaus, die Härte des Holzes und die Bewehrung der Zweige. Das Epitheton laevigata geht auf das lateinische laevigare zurück, glätten oder polieren, und beschreibt die kahle, glänzende Oberfläche des Laubes, ein Merkmal, das der Art im Englischen auch den Namen glatter Weißdorn eintrug.
Morphologische Beschreibung
Kleiner sommergrüner Baum, der recht regelmäßig 8 Meter Höhe erreicht und ausnahmsweise 12 Meter, wobei er ebenso häufig als mehrstämmiger Strauch von ungeordnetem Wuchs auftritt. Die Krone ist dicht, breit und rundlich, und der Stamm setzt sich kaum in sie hinein fort, da er sich früh verzweigt. Die Äste stehen ausgebreitet oder aufsteigend, sind in der Regel weniger starr als bei C. monogyna und neigen dazu, an den Enden überzuhängen. Die Knospen sind eiförmig bis fast kugelig mit abgerundeter Spitze und messen zwischen 1,1 und 2,1 Millimeter Länge auf 1,2 bis 1,9 Millimeter Breite, mit dunkelbraunen Schuppen.
Blätter
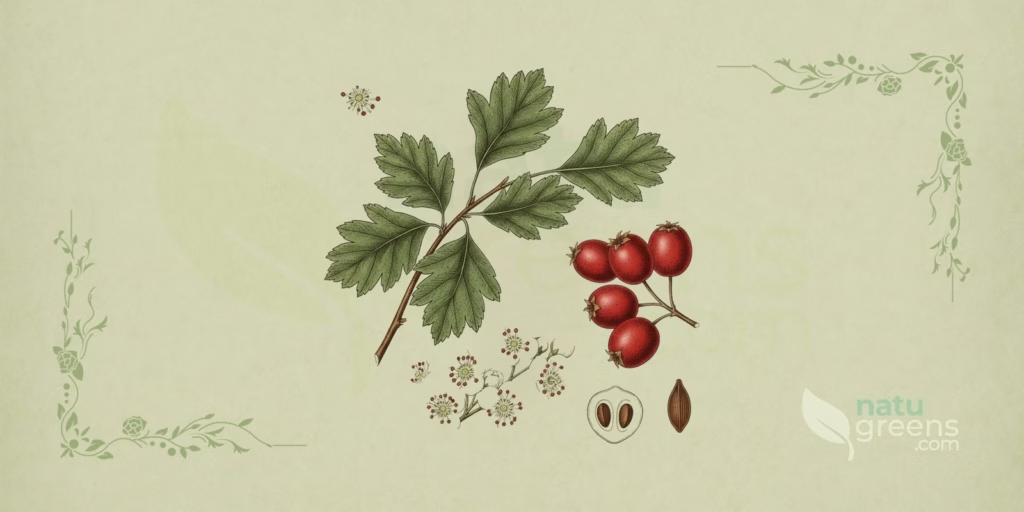
Die Blätter stehen wechselständig, sind häufig lederig, oberseits dunkelgrün und glänzend, unterseits blassgrün. Sie sind kahl bis auf vereinzelte Haare entlang der Hauptnerven auf beiden Seiten im jungen Zustand, und ihnen fehlen kennzeichnenderweise die Haarbüschel in den Nervenachseln, die bei C. monogyna in Großbritannien verbreitet sind. Der Umriss reicht von verkehrt eiförmig bis fast rundlich, mit ein bis drei Paar stumpfen, flachen Lappen, die selten die halbe Strecke bis zur Mittelrippe erreichen. Die Lappen sind im Umriss abgerundet und breiter als lang, mit gekerbt-gesägtem Rand außer in den Buchten, und der Basallappen trägt 6 bis 15 Zähne.
Die Größe schwankt je nach Stellung am Zweig, und diese Schwankung hat praktischen Wert für alle, die Herbarmaterial sammeln. Die Blätter der Langtriebe sind die größten und am tiefsten gelappten und messen 1,9 bis 7,2 Zentimeter auf 1,8 bis 5,1 Zentimeter. Die der Kurztriebe liegen zwischen 2,0 und 6,0 Zentimetern auf 1,5 bis 3,2 Zentimeter, und die der Blütentriebe sind noch kleiner, mit ein oder zwei Lappenpaaren oder ganz ohne. Die Hauptnerven verlaufen gerade oder biegen nach vorn zur Blattspitze, anders als bei C. monogyna, wo sie nach hinten biegen. Die Basis ist keilförmig oder abgerundet, die Spitze zugespitzt, der Blattstiel misst 6 bis 20 Millimeter und die Nebenblätter sind an Langtrieben auffällig und laubblattartig.
Blüten
Die Blüten entspringen vor allem an Kurztrieben und stehen in lockeren Doldenrispen aus 3 bis 11 Einheiten, 2,5 bis 5,0 Zentimeter breit. Die Blütenstiele messen 6 bis 30 Millimeter und sind kahl oder selten zottig behaart, ein Merkmal, das die Art von C. monogyna trennen hilft, deren Blütenstiele behaart sind. Jede Blüte ist zwittrig und misst 15 bis 18 Millimeter im Durchmesser. Die fünf Kelchblätter sind breit dreieckig, so breit wie lang, mit ganzrandigem Rand und spitzem Ende. Die fünf Kronblätter sind weiß oder blassrosa, mit gestreiften Papillen, und messen 5 bis 10 Millimeter auf 5 bis 9 Millimeter. Das Hypanthium ist 3 bis 4 Millimeter groß und kahl.
Die Staubblätter zählen 17 bis 22, mit blassen Staubfäden und rosafarbenen, selten purpurnen Staubbeuteln. Die Griffel sind meist zwei und schwanken bei einzelnen Blüten zwischen einem und fünf, die Narben sind gelb. Die Zahl der Griffel bildet das verlässlichste Bestimmungsmerkmal der Gruppe, weil sie sich unmittelbar in der Zahl der Steinkerne der Frucht niederschlägt und selbst an getrocknetem Material ablesbar bleibt.
Früchte und Samen
Die Frucht ist eine fast kugelige bis ellipsoide Apfelfrucht, zur Reife dunkelrot, bei den meisten Exemplaren 8 bis 10 Millimeter im Durchmesser bei einer belegten Spannweite von 6 bis 14 Millimetern, auf 6 bis 12 Millimeter Länge. Das mittlere Volumen von rund 1,60 Kubikzentimetern beträgt mehr als das Doppelte des bei C. monogyna gemessenen Wertes von etwa 0,73 Kubikzentimetern. Die Oberfläche ist in der Regel kahl und ohne basale Höcker, und die Spitze trägt die Krone der bleibenden Kelchblätter, zurückgebogen oder ausgebreitet. Das Fruchtfleisch ist gelblich, mit einem Wassergehalt zwischen 68 und 77 Prozent.
Die Steinkerne oder Pyrenen sind in der Regel zwei und folgen der Griffelzahl der Blüte, aus der sie hervorgingen. Sie messen etwa 5 bis 6 Millimeter, mit dorsalen und ventro-lateralen Vertiefungen, und unterscheiden sich fein von denen der C. monogyna durch das stumpfere Ende gegenüber der zugespitzten Spitze der Schwesterart. Jede Frucht enthält im Mittel 2,1 bis 2,8 Samen mit einer Einzelmasse von 60 bis 68 Milligramm und damit kleinere als C. monogyna, deren Samen zwischen 97 und 130 Milligramm liegen. Studien zur Ausbreitungsökologie stufen die Früchte als nicht giftig ein, ohne Risiko für die Tiere, die sie fressen, den Menschen eingeschlossen.
Rinde und Zweige
Die Rinde ist graubraun bis orangebraun und wird mit dem Alter rissig und aufgesprungen. Die Zweige sind mattgraubraun, dicht gestellt und zeigen sich im jungen Zustand glänzend und kahl. Die Dornen sind weniger zahlreich und kürzer als bei C. monogyna und messen 6 bis 15 Millimeter, ein Unterschied, der zur Waldbindung der Art passt, die dem Verbiss weniger ausgesetzt ist als die Bestände der Hecken.
Verbreitung und Lebensraum
Die Art ist in West- und Mitteleuropa heimisch. Das natürliche Areal reicht von den Britischen Inseln nach Osten bis Tschechien und Ungarn, mit einem fast sicher ursprünglichen Vorkommen in Rumänien und in der Ukraine. Nach Norden erreicht sie Südschweden, Lettland und Estland, nach Süden greift sie auf die spanischen Pyrenäen und auf Italien über, sehr wahrscheinlich Sizilien eingeschlossen. Die taxonomischen Datenbanken verzeichnen darüber hinaus Vorkommen in Belgien, Dänemark, Deutschland, Frankreich, Korsika, den Niederlanden, Norwegen, Österreich, Polen, im europäischen Russland, in der Schweiz, in der Slowakei und in Weißrussland. Am weitesten verbreitet ist sie im nördlichen Mittelteil dieses Gebiets und wird an den Rändern selten, etwa in Belgien, während sie in Griechenland fehlt.
Auf den Britischen Inseln fällt die Verbreitung weit enger aus als die von C. monogyna. Die Art konzentriert sich im Süden und Osten Englands und dringt auf natürlichem Weg bis in die Midlands vor, woher ihr englischer Volksname stammt. Als wildwachsende Pflanze fehlt sie in Schottland und Wales weitgehend, und die schottischen Nachweise entsprechen fast immer gepflanzten Exemplaren. Ob sie in Irland heimisch ist, bleibt umstritten: In mehreren Grafschaften stehen alte Exemplare, und es existiert ein Herbarbeleg der Hybride aus dem Jahr 1895, doch die verbreitetste Annahme führt ihr Vorkommen auf englisches Baumschulmaterial zurück, das während der parlamentarischen Einhegungen eingeführt wurde.
Außerhalb des natürlichen Areals wurde die Art in verschiedene gemäßigte Regionen gebracht. Sie hat sich auf den Gulf Islands im Bundesstaat Washington, in Kanada und im Osten der Vereinigten Staaten eingebürgert, und sie wurde im neunzehnten Jahrhundert nach Tasmanien und in andere Teile Australiens zur Anlage von Hecken eingeführt, wo sie heute in mehreren Bundesstaaten als schädliches Unkraut gilt. Hinzu kommen Nachweise aus Japan, Neuseeland, Tansania und Westafrika sowie aus dem gemäßigten Himalaya Indiens, zwischen 1.800 und 3.000 Metern Höhe.
Der typische Lebensraum bestimmt die Art ebenso sehr wie ihre Morphologie. Es handelt sich um eine Pflanze historisch alter Wälder, schattentolerant, im Inneren reifer Bestände, an Waldrändern, in alten Hecken und auf Grenzwällen über tonigen Böden. Sie bevorzugt schwere Bodenarten, von Lehm bis Ton, und meidet beständig Kreide, Kalkstein, oolithische Böden und Feuerstein führende Tone, eine Einschränkung, die ihre Konzentration in den englischen Midlands und im Weald des Südostens erklärt. Der Ellenberg-Zeigerwert für den pH-Wert in Großbritannien beträgt 7, vereinbar mit schwach sauren bis schwach basischen Verhältnissen. In der Höhe reicht sie vom Meeresspiegel im Westen bis 810 Meter in den polnischen Sudeten, 956 Meter in Slowenien, 1.281 Meter in der Hohen Tatra und 1.560 Meter am Piano Ruggio in Italien.
Anbau
Die Art ist subatlantisch geprägt und bevorzugt ein kühl gemäßigtes Klima. Die in Großbritannien erfassten Mittelwerte liegen bei 3,5 Grad Celsius für den Januar und 16,2 Grad für den Juli, bei einem Jahresniederschlag von etwa 674 Millimetern, also in etwas wärmeren und trockeneren Lagen als denen, die C. monogyna einnimmt. Sie verträgt die Winter Mittel- und Nordeuropas gut und stellt keine Wärmeansprüche, die sie innerhalb der gemäßigten Zonen einschränken würden.
Beim Boden wächst sie auf einer breiten Spanne von Substraten, kieselige und mäßig saure eingeschlossen, und erträgt beträchtliche Schwankungen der Feuchte. Innerhalb dieser Spanne gedeiht sie allerdings am besten auf Lehm- und Tonböden, vor allem auf den schweren. Die Schattenverträglichkeit ist der gärtnerisch entscheidende Zug: Sie blüht auch unter geschlossenem Kronendach ohne Weiteres und beherrscht die Strauchschicht durchgewachsener Niederwälder, wo sich C. monogyna nicht durchsetzt. Wo das Licht durch Störung oder Hieb zunimmt, kehrt sich das Verhältnis um und die Art verliert an Boden.
Vermehrung durch Samen
Die Samen weisen eine doppelte Keimruhe auf, eine harte Samenschale in Verbindung mit einem physiologischen Kältebedürfnis. Ohne Vorbehandlung tritt die Keimung mitunter erst nach 18 Monaten ein oder gar erst in der dritten Vegetationsperiode nach der Fruchtbildung. Das in polnischen Versuchen erarbeitete Verfahren besteht aus einer Warmstratifikation in feuchtem Medium, mit Temperaturwechsel zwischen 20 und 30 Grad Celsius über 16 bis 20 Wochen, gefolgt von einer Kaltphase bei 3 Grad über 16 bis 18 Wochen, an deren Ende die Keimwurzeln bereits austreten. Diese Behandlung hebt die Keimrate von 2 bis 4 Prozent auf 87 bis 94 Prozent, und die Keimlinge erscheinen vier bis sechs Wochen nach der Aussaat.
Die chemische Skarifizierung in konzentrierter Schwefelsäure über zwei bis drei Stunden, gefolgt von 24 Stunden Quellung in Wasser, verkürzt die Warmphase von 16 bis 20 Wochen auf nur vier, bei gleichwertigen Keimraten. Die Samen sind orthodox und lassen sich ohne Verlust an Keimfähigkeit auf 9 bis 13 Prozent Feuchte trocknen; eine Lagerung bei minus 3 Grad Celsius über 12 Monate vertragen sie mit nur mäßigem Rückgang der Keimung. Die Keimung verläuft epigäisch, und die Keimwurzel entwickelt sich zu einer Pfahlwurzel mit feinen, kurzen Seitenwurzeln.
Vegetative Vermehrung und Pflanzengesundheit
Die Ziersorten werden durch Veredelung vermehrt, ein Verfahren, das zugleich Blütenmerkmale bewahrt, die sich über Samen nicht weitergeben. Die Art verträgt den Rückschnitt gut und bildet unter Niederwaldwirtschaft große Stöcke, was ihr Verbleiben in bewirtschafteten Wäldern begünstigt. Sie wurde außerdem als schwachwüchsige Unterlage für Birnen geprüft, mit berichteter Verträglichkeit für Klone von Pyrus communis und weitere Maleae.
Der heikle Punkt im Anbau ist die Pflanzengesundheit. Die europäischen Weißdorne, diese Art eingeschlossen, sind hochanfällig für den durch Erwinia amylovora verursachten Feuerbrand, und die Sorten ‚Paul’s Scarlet‘ und ‚Rosea Flore Pleno‘ gehören zu den am stärksten betroffenen. Pflanzungen können als Inokulumreservoir für benachbarte Apfel- und Birnbäume wirken, auch wenn das Risiko bei C. laevigata geringer ausfällt als bei C. monogyna, da sie stärker an den Wald gebunden und weiter von den Obstanlagen entfernt vorkommt. Hinzu kommen der Echte Mehltau Podosphaera clandestina, die Roste der Gattung Gymnosporangium, die einen Wirtswechsel auf Juniperus verlangen, und die Blattfleckenkrankheit durch Entomosporium thuemenii und Diplocarpon mespili.
Phänologie
Die Blüte erstreckt sich von April bis Juni und verschiebt sich am Nordrand des Areals, in Schweden, ans Ende dieses Zeitraums. Im Südosten Englands trug ihr das Zusammenfallen mit dem Kirchenjahr den örtlichen englischen Namen Whitsun rose ein, also Pfingstrose, der dort nichts mit der Päonie zu tun hat. Niederländische Langzeitreihen belegen eine deutliche Verfrühung: Der mittlere Blühbeginn verschob sich vom 17. Mai in der Reihe von 1940 bis 1968 auf den 1. Mai in der Reihe von 2001 bis 2010. Die Blüten öffnen sich, bevor die Blätter voll entwickelt sind, und an Sträuchern früher als an Bäumen.
Die Art treibt vor C. monogyna aus und blüht etwa 8 bis 14 Tage früher als diese. Dieser Vorsprung reicht nicht aus, um eine Fortpflanzungsschranke zu bilden, denn die Überschneidung der Blühzeiten beider Arten erreicht 40 Prozent, was die fortlaufende Bildung der Hybride trägt. Unter kontrollierten Bedingungen blieben einzelne Pflanzen 12 Tage in Blüte, wobei einzelne Blüten 8 Tage hielten.
Die Blüten sind vorweiblich. Die Staubbeutel der äußersten Staubblätter geben den Pollen ein bis zwei Tage nach dem Öffnen der Blüte frei, und die Staubfäden krümmen sich an warmen Tagen nach innen, eine Anordnung, die Selbstbestäubung mechanisch möglich machen würde. Die Art ist gleichwohl weitgehend selbstunverträglich: Kreuzungsversuche erbrachten bei Fremdbestäubung Fruchtansatz an 30 bis 59 Prozent der Blüten, gegenüber lediglich 2 Prozent bei Selbstbestäubung. Die Bestäubung erfolgt durch Insekten, vor allem durch Hautflügler und Zweiflügler, die der Nektar und der Duft der Blüten anlocken, der auf die Abgabe von Trimethylamin zurückgeht. Der Pollen weist mit 96 bis 98 Prozent eine hohe Keimfähigkeit auf.
Die Früchte entwickeln sich über etwa 106 Tage, gegenüber 89 Tagen bei C. monogyna, und reifen zwischen Juni und November, in den nördlichen Beständen spät. Eine reife Frucht hält sich rund 64 Tage an der Pflanze, und der Baum trägt reife Früchte im Mittel 82 Tage lang, gegenüber 150 Tagen bei C. monogyna. Die Ausbreitung übernehmen vor allem fruchtfressende Vögel, allen voran Amsel, Wacholderdrossel, Rotdrossel und Singdrossel, und die Samen durchlaufen den Verdauungstrakt oder werden ausgewürgt. Eine dauerhafte Samenbank im Boden fehlt, ein Zug, der die Verjüngung von einem frischen Samenregen abhängig macht.
Verwandte Arten und Verwechslungen
Die Bestimmung von Crataegus im Gelände gilt anerkanntermaßen als schwierig, und das geprüfte Material sollte reife Früchte und Blätter kurzer Seitentriebe umfassen, damit eine sichere Zuordnung möglich wird. Ein Exemplar, das allein nach den Blättern kräftiger Triebe beurteilt wird, führt leicht in die Irre.
Abgrenzung von Crataegus monogyna
Dies ist die zentrale Verwechslung der Gruppe und der Grund, weshalb der Name C. oxyacantha verworfen wurde. Die Merkmale, die beide Arten trennen, sind die folgenden:
- Blattlappen: ein bis drei Paar flacher, gerundeter Lappen, die selten die halbe Strecke bis zur Mittelrippe erreichen, bei C. laevigata, gegenüber fünf bis sieben tiefen, spitzen Lappen, die zwei Drittel dieser Strecke überschreiten, bei C. monogyna.
- Blütengröße: über 15 Millimeter Durchmesser bei C. laevigata, bis 15 Millimeter bei C. monogyna.
- Blütenstiele und Haarbüschel: kahle Blütenstiele und Nervenachseln ohne Haarbüschel bei C. laevigata, gegenüber behaarten Blütenstielen und vorhandenen Achselbüscheln bei C. monogyna in Großbritannien.
- Dornen: weniger zahlreich und kürzer bei C. laevigata, 6 bis 15 Millimeter, sowie länger und häufiger bei C. monogyna.
- Griffel: in der Regel zwei bei C. laevigata, schwankend von einem bis fünf; ein einziger bei C. monogyna.
- Hauptnerven: gerade oder nach vorn gebogen bei C. laevigata, nach hinten gebogen bei C. monogyna.
- Steinkerne der Frucht: C. laevigata hat meist zwei Pyrenen, gelegentlich drei; C. monogyna hat einen einzigen, gelegentlich zwei.
Erschwerend kommt hinzu, dass beide Arten untereinander fruchtbar sind und die Hybride Crataegus × media Bechst. hervorbringen, morphologisch intermediär, mit einem bis zwei Griffeln und ebenso vielen Steinkernen. Die einzige bedeutsame Schranke gegen die Hybridisierung ist die räumliche Trennung der Lebensräume, und dort, wo die Zerschneidung der Wälder die Bestände einander näher gebracht hat, ist die Hybride häufig geworden, in mehreren britischen Regionen häufiger als C. laevigata selbst. Ein Exemplar mit zwei Griffeln ist demnach nicht automatisch C. laevigata, und die Bestimmung gewinnt an Verlässlichkeit, wenn mehrere Merkmale in dieselbe Richtung weisen.
Abgrenzung von Crataegus mexicana
Die Abgrenzung gegenüber dem Tejocote gelingt unmittelbar und hängt nicht an feinen Merkmalen. Die mexikanische Art bringt Apfelfrüchte von 1,5 bis 3 Zentimetern Durchmesser hervor, zur Reife goldgelb bis orange, gegenüber den dunkelroten Früchten von 8 bis 10 Millimetern der europäischen Art. Die Blätter von C. mexicana sind rhombisch-elliptisch bis eiförmig-lanzettlich, gesägt und ohne ausgeprägte Lappung, während die von C. laevigata verkehrt eiförmig und gelappt sind. Der mexikanische Blütenstand vereint 2 bis 6 Blüten in einer Dolde, gegenüber den Doldenrispen aus 3 bis 11 Blüten der europäischen Art. Hinzu kommen die vollständig getrennte Verbreitung, da C. mexicana auf die Gebirge Mexikos und Guatemalas beschränkt ist, sowie das länger haftende und ledrigere Laub der neotropischen Art.
Weitere Arten und die Mehrdeutigkeit der Volksnamen
Neben C. monogyna kreuzt sich die Art mit C. rhipidophylla zu C. × macrocarpa und mit C. lindmanii zu C. × calycina. Verzeichnet ist außerdem die gattungsübergreifende Kreuzung mit der Mispel, Mespilus germanica, benannt als × Crataemespilus grandiflora, sowie die als Crataegomespilus bekannten Pfropfchimären, die beim Veredeln der Mispel auf Weißdorn entstehen.
Ein Hinweis zur deutschen Volksnamengebung ist angebracht. Das Deutsche verfügt mit Zweigriffliger Weißdorn über einen eigenen Namen für diese Art, doch er bleibt weitgehend auf Bestimmungswerke beschränkt, während der alltägliche Sprachgebrauch Weißdorn, Hagedorn und Heckendorn ohne Unterscheidung für beide europäischen Arten der Gattung verwendet. Der Name Rotdorn führt zusätzlich in die Irre, da er die rotblühenden Ziersorten bezeichnet, die teils dieser Art, teils der Hybride C. × media zugerechnet werden. Bei jedem deutschsprachigen Text, der nur den Volksnamen nennt, hängt die Bestimmung der Art davon ab, das angeführte Binom und nach Möglichkeit die beschriebenen Merkmale zu prüfen.
Phytochemie
Dieser Abschnitt beschreibt die für die Art dokumentierte chemische Zusammensetzung. Es handelt sich um eine analytische Charakterisierung, ohne jeden Bezug zu Wirkungen beim Menschen.
Der in C. laevigata gemessene Gesamtphenolgehalt erreicht 1.288 Milligramm je 100 Gramm Frischmasse, bei einem Gesamtgehalt an Phenolsäuren von 964 Milligramm je 100 Gramm, Werte nahe denen von C. monogyna und höher als bei sieben weiteren Sträuchern derselben Untersuchung. In den blühenden Teilen wildwachsender europäischer Proben schwankte der Gesamtphenolgehalt von 3 bis 19 Gramm je Kilogramm Trockenmasse, im Mittel 12 Gramm je Kilogramm.
Die Charakterisierung mittels Chromatographie gekoppelt mit Massenspektrometrie wies 54 Verbindungen in den Blättern und 47 in den Blüten der Art nach, gegenüber 38 und 41 bei C. monogyna. Zu den vertretenen Stoffklassen zählen Chlorogensäuren und weitere Phenolsäuren, Proanthocyanidine, Flavonoidglykoside und Flavonoidaglykone. Unter den beschriebenen Flavonoiden finden sich Apigenin, Catechin, Epicatechin, Hyperosid, Isoquercitrin, Isovitexin, Procyanidin B-2, Quercetin, Rutin und Vitexin. Die Proanthocyanidine erreichen in slowenischem Material 40,6 Gramm je Kilogramm, und der Gesamtflavonoidgehalt der Blüten erwies sich als der höchste unter zehn verglichenen Crataegus-Arten.
Die Zusammensetzung ist taxonomisch von Interesse. Vitexin und seine Derivate treten in den Blättern der europäischen Arten der Gattung in höherer Konzentration auf, während sich Rutin ausgeprägt in den nordamerikanischen anreichert. Das Fehlen von Isoorientin, Orientin, 8-Methoxykaempferol-3-O-glucosid und 4“-Acetyl-Vitexin-2“-O-rhamnosid bei C. laevigata wurde als ergänzendes chemisches Kriterium zur Abgrenzung von C. monogyna vorgeschlagen, womit die Phytochemie die Artabgrenzung stützt.
Unter den Triterpenen sind Oleanolsäure und Ursolsäure die hervorstechenden Bestandteile. Untersuchungen flüchtiger organischer Verbindungen wiesen die Sesquiterpene Caryophyllen und Humulen in den Blütenemissionen nach, während Farnesen und das Monoterpen Limonen nach der Blüte auftraten. Alkaloide und echte Saponine wurden in der Art nicht nachgewiesen, wohl aber das Pseudosaponosid Tormentosid. Oxalsäurekristalle kommen in allen Teilen der Pflanze vor und machen 0,065 Prozent der Blatttrockenmasse aus.
Die Konzentration der Stoffwechselprodukte reagiert auf die Umweltbedingungen. Zehn Tage Trockenheit ausgesetzte Jungpflanzen zeigten einen Anstieg von Epicatechin und Hyperosid bei einem Rückgang von Vitexin und Acetylvitexin, während Kältestress bei 4 Grad Celsius Vitexin, Epicatechin, Hyperosid, Quercetin und Acetylvitexin ansteigen ließ. Die Art reichert zudem Schwermetalle in Wurzeln und Blättern an, wenn sie auf belastetem Boden wächst.
Geschichte und Ethnobotanik
Die stammesgeschichtliche Trennung zwischen C. laevigata und C. monogyna wurde über die Analyse der Chloroplasten-DNA auf etwa zehn Millionen Jahre datiert, womit die morphologische Ähnlichkeit beider ein Fall bewahrter Gestalt über einen beträchtlichen Zeitraum ist. Der Fossilbefund trennt die beiden dagegen nicht: Makrofossilien aus Holz und Holzkohle sind nicht unterscheidbar, und in der Regel gilt dasselbe für die Samen. Die Pollenkörner lassen sich statistisch trennen, da die von C. laevigata überwiegend kugelig sind, 28 bis 40 Mikrometer groß und flach gestreift, gegenüber langgestreckten Körnern von 30 bis 44 Mikrometern mit hohem Relief bei C. monogyna, doch kam dieses Kriterium in der paläobotanischen Praxis nie zur Anwendung.
Der Weißdorn ist seit dem Mesolithikum eine häufige Pflanze der europäischen Wälder, und jede Kulturperiode vom Neolithikum bis in die normannische Zeit hinterließ Belege der Gattung. Der größte Teil des bestimmten vorgeschichtlichen Materials entfällt auf C. monogyna, die in einer sich öffnenden Landschaft wirksamere Pionierart, wenngleich die Möglichkeit offenbleibt, dass C. laevigata aufgrund der schwierigen Bestimmung unterschätzt wurde.
Die überlieferten historischen Verwendungen von Holz und Pflanze sind vielfältig. Das dichte, gleichmäßig gemaserte Holz wurde zu Werkzeugstielen und Spazierstöcken verarbeitet. Rinde und Wurzeln lieferten einen gelben oder braunen Farbstoff, und die Rinde diente der Gerberei, eine in Algier belegte Praxis. Die Früchte wurden frisch verzehrt und in mehreren europäischen Regionen zu Säften, Gelees und Bränden verarbeitet, und man trocknete sie für den Winter; die gerösteten Steinkerne dienten als Kaffeeersatz. In Italien wurde der Weißdorn regelmäßig zur Einfriedung landwirtschaftlicher Parzellen gepflanzt, eine Aufgabe, die mit der Mechanisierung und dem Platzbedarf der Maschinen entfiel, was zum nahezu vollständigen Verschwinden dieser Hecken führte.
Im Bereich der alten Arzneimittellehre reicht die Erwähnung bis zu Dioskurides im ersten Jahrhundert zurück, der die Pflanze mit dem griechischen Namen bezeichnete, aus dem später das verworfene linnésche Binom hervorging. Es war dieser Weg über die Namensgebung, nicht irgendein botanisches Merkmal, der Crataegus oxyacantha so lange in der europäischen pharmazeutischen Literatur festschrieb, weshalb das Binom bis heute in Quellen auftaucht, die unterschiedslos die eine oder die andere der beiden europäischen Arten beschreiben.
Schutzstatus
Die Art wird auf der Roten Liste der IUCN als nicht gefährdet geführt, eine Einstufung, die zu ihrer weiten europäischen Verbreitung passt. Sie steht ebenso auf der Roten Liste der Gefäßpflanzen Luxemburgs, dort gleichfalls in der Kategorie der ungefährdeten Arten, neben C. monogyna und C. rhipidophylla.
Diese Zahlen verdecken jedoch einen Vorgang, der Beachtung verdient. Die erfasste Häufigkeit von C. laevigata in Großbritannien hat sich seit 1962 kaum verändert, doch geht ein Teil dieser scheinbaren Beständigkeit auf Pflanzungen innerhalb und außerhalb des heimischen Areals zurück, ein anderer auf die Leichtigkeit, mit der die Art mit der Hybride C. × media verwechselt wird, sodass manche neuen Nachweise in Wahrheit der Hybride entsprechen. Hinter diesem Anschein von Beständigkeit steht ein deutlicher Hinweis auf den Rückgang der genetisch reinen Bestände, besonders im Südosten Englands.
Der Mechanismus ist gut verstanden. Störung und Zerschneidung der Wälder öffnen C. monogyna den Weg in Lebensräume, die zuvor allein von der Schattenart besetzt waren, und da beide voll kreuzbar sind, folgt daraus Hybridisierung mit anschließender Introgression. Die pessimistischste Einschätzung der Literatur legte bereits 1975 nahe, dass die reine C. laevigata mit fortschreitender Introgression ganz verschwinden könnte, und ein gleichartiges Problem wurde in Belgien und in Polen festgestellt. Verhältnismäßig reine Bestände überdauern dort, wo die Waldkomplexe groß und wenig zerschnitten sind, etwa in den ausgedehnten Wäldern Nordostfrankreichs.
An den Rändern des Areals kehrt sich die Lage um. In Bulgarien, im äußersten Südosten des heimischen Gebiets, ist die Hybride C. × media so selten, dass ihre Aufnahme in das nationale Rote Buch mit gesetzlichem Schutzbedarf vorgeschlagen wurde. Das Fehlen einer dauerhaften Samenbank im Boden fügt einen weiteren Punkt der Verletzlichkeit hinzu, denn die Erholung eines Bestandes hängt vollständig von frischer Ausbreitung durch Vögel ab.
Wissenswertes
- Die Ausbreitung der Art wurde aus unerwarteten Quellen belegt: Weißdornkerne fanden sich im Kot von Kranichen, von Bären und von Huftieren, und es existiert ein alter Bericht über einen Wanderfalken, unter dessen Ansitz sich Kerne aus den Kröpfen der geschlagenen Tauben ansammelten.
- De Candolle hielt 1825 ein gärtnerisches Verfahren fest, bei dem man die Kerne der Pflanze an Truthühner verfütterte; ihr Weg durch den Verdauungstrakt der Vögel zog die Keimung gegenüber unbehandeltem Saatgut um etwa ein Jahr vor.
- Der für die menschliche Nase unangenehme Duft der Blüten geht auf die Abgabe von Trimethylamin zurück, dieselbe Verbindung, die man mit dem Geruch verwesenden Fisches verbindet, und gerade sie lockt die Zweiflügler an, die einen Teil der Bestäubung übernehmen.
- Dänische Gewächshausversuche maßen, wie stark die Art auf Bestäuber angewiesen ist: Pflanzen, die von der Blattschneiderbiene Megachile rotundata besucht wurden, brachten 269 Früchte hervor, gegenüber einer einzigen Frucht an Pflanzen ohne Insektenzugang.
- Die Sorte ‚Paul’s Scarlet‘ mit gefüllten roten Blüten entstand um 1880 als Zweigmutation der Sorte ‚Rosea Flore Pleno‘ und hat einen zwiespältigen Status: In Großbritannien und Nordamerika ordnet man sie C. laevigata zu, auf dem europäischen Festland gilt sie gewöhnlich als Sorte der Hybride C. × media.
- Eine winzige Motte, Coleophora coracipennella, bohrt die Blütenknospen an, um sich von Pollen zu ernähren, und sterilisierte in einer untersuchten Population in Oxfordshire 20 Prozent der Blüten, mit unmittelbarer Folge für den Fruchtertrag jenes Jahres.
- Der Glastonbury Thorn, jener sagenumwobene Weißdorn der englischen Überlieferung, der zweimal im Jahr blüht, gehört nicht zu dieser Art: Es handelt sich um die Sorte ‚Biflora‘ von C. monogyna, eine Zuordnung, die populäre Darstellungen häufig vertauschen.
- Die klassische Erhebung von Southwood zählte 149 Insektenarten, die an britischen Weißdornen leben, eine Zahl, die den Rang dieser Bäume als Lebensgrundlage für Tiere erkennen lässt, auch wenn sie deutlich unter den 284 Arten der Eichen bleibt.
Hinweis: Dieser Inhalt dient nur zur Information und ersetzt keine professionelle medizinische Beratung. Konsultieren Sie vor der Anwendung von Heilpflanzen einen Arzt oder Phytotherapeuten, insbesondere in der Schwangerschaft, in der Stillzeit oder bei Einnahme von Medikamenten.
Referenzen und wissenschaftliche Studien
Alle 16 Zitierten Quellen Anzeigen
Peer-Reviewed Wissenschaftliche Studien (3)
- DOI2021 Thomas, P. A., Leski, T., La Porta, N., Dering, M., Iszkuło, G. Biological Flora of the British Isles: Crataegus laevigata. Journal of Ecology, 109(1), 572-596. 2021. ↗
- DOI2012 Edwards, J. E., Brown, P. N., Talent, N., Dickinson, T. A., Shipley, P. R. A review of the chemistry of the genus Crataegus. Phytochemistry, 79, 5-26. 2012. ↗
- DOI2021 Fichtner, A., Wissemann, V. Biological Flora of the British Isles: Crataegus monogyna. Journal of Ecology, 109, 541-571. 2021. ↗
Ergänzende Lektüre (13)
- 1992 Christensen, K. I. Revision of Crataegus sect. Crataegus and nothosect. Crataeguineae (Rosaceae-Maloideae) in the Old World. Systematic Botany Monographs, 35, 1-199. 1992.
- 1974 Byatt, J. I. Application of the names Crataegus calycina Peterm. and C. oxyacantha L. Botanical Journal of the Linnean Society, 69, 15-21. 1974.
- 1975 Byatt, J. I. Hybridization between Crataegus monogyna Jacq. and C. laevigata (Poiret) DC. in south-eastern England. Watsonia, 10, 253-264. 1975.
- 2012 Christensen, K. I., Talent, N. Crataegus laevigata or C. levigata (Rosaceae), a paleographic analysis. Phyton (Horn, Austria), 52(2), 195-201. 2012.
- de Candolle, A. P. Prodromus Systematis Naturalis Regni Vegetabilis, pars 2. Paris. 1825.
- Poiret, J. L. M. Mespilus laevigata. In: Encyclopédie Méthodique, Botanique, 4(2), 439. Paris. 1798.
- 2006 Bujarska-Borkowska, B. Seed dormancy breaking in Crataegus laevigata. Dendrobiology, 56, 3-11. 2006.
- 2015 Karar, M. G. E., Kuhnert, N. UPLC-ESI-Q-TOF-MS/MS characterization of phenolics from Crataegus monogyna and Crataegus laevigata leaves, fruits and their derived drops. Journal of Chemical Biology & Therapeutics, 1, e102. 2015.
- 2012 Lo, E. Y. Y., Donoghue, M. J. Expanded phylogenetic and dating analyses of the apples and their relatives (Pyreae, Rosaceae). Molecular Phylogenetics and Evolution, 63, 230-243. 2012.
- 1991 Eriksson, O., Ehrlén, J. Phenological variation in fruit characteristics in vertebrate-dispersed plants. Oecologia, 86, 463-470. 1991.
- 2014 Sell, P., Murrell, G. Flora of Great Britain and Ireland, vol. 2. Cambridge University Press. 2014.
- International Plant Names Index. Crataegus laevigata (Poir.) DC. Royal Botanic Gardens Kew, Harvard University Herbaria and Australian National Herbarium. Eintrag 723644-1. ↗
- Plants of the World Online. Crataegus laevigata (Poir.) DC. Royal Botanic Gardens Kew. ↗