El Crataegus laevigata es el espino de los bosques antiguos de Europa occidental y central, un árbol pequeño que ocupa el interior sombrío de los montes maduros mientras su pariente más conocido domina los setos y las orlas abiertas. Pertenece a las Rosaceae, la familia que reúne al manzano, al peral, al rosal y a la fresa, y se sitúa dentro de ella en la tribu Maleae, el grupo de los frutos pomáceos. En Gran Bretaña, donde recibió uno de los estudios ecológicos más detallados que se hayan dedicado nunca a una especie leñosa europea, funciona como planta indicadora de bosque antiguo, una condición que permite leer la historia de un monte a partir de lo que crece en él.
Pocas plantas europeas arrastran un historial nomenclatural tan enredado. Durante más de dos siglos esta especie y el Crataegus monogyna se tuvieron por una sola cosa, bajo el nombre Crataegus oxyacantha, un binomio que terminó rechazado formalmente por ambigüedad precisamente porque nadie logró determinar a cuál de las dos plantas se refería Linneo. El rastro de aquella confusión sobrevive en la literatura antigua, en los catálogos de vivero y en las etiquetas comerciales, y obliga a quien lea fuentes anteriores al siglo XX a examinar el material descrito antes de aceptar el nombre impreso.
Esta página reúne el perfil botánico de la especie: clasificación formal, caracteres de identificación en campo, distribución y ambiente, exigencias de cultivo, calendario reproductivo, parientes próximos que se confunden con ella, composición química descriptiva, registro histórico y etnográfico, y situación de conservación.
Taxonomía
La posición de la especie en la clasificación botánica actual es la siguiente:
- Reino: Plantae
- División: Tracheophyta (Magnoliophyta, angiospermas)
- Clase: Magnoliopsida (eudicotiledóneas)
- Orden: Rosales
- Familia: Rosaceae
- Subfamilia: Amygdaloideae
- Tribu: Maleae
- Género: Crataegus L., 1753
- Especie: Crataegus laevigata (Poir.) DC., 1825
El basiónimo es Mespilus laevigata Poir., publicado en 1798 en la Encyclopédie Méthodique, y la transferencia a Crataegus corrió a cargo de Augustin Pyramus de Candolle en el segundo volumen del Prodromus Systematis Naturalis Regni Vegetabilis, de 1825. El registro del IPNI confirma la autoría y la página de publicación original.
El género es uno de los más difíciles de la familia. Según el tratamiento que se adopte, el número de especies aceptadas oscila entre unas 140 y más de mil, una amplitud que no refleja el desconocimiento de los especialistas sino la biología del grupo: la hibridación extensa, la apomixis y la poliploidía producen poblaciones intermedias que se resisten a los límites nítidos.
Sinónimos Aceptados
- Crataegus coriacea Gand.
- Crataegus helvetica Walo Koch
- Crataegus oxyacantha f. laevigata (Poir.) Beck
- Crataegus oxyacanthoides Thuill.
- Crataegus palmstruchii Lindm.
- Crataegus subinermis Gand.
- Mespilus digyna Gray
- Mespilus intermedia Poir.
- Mespilus laevigata Poir.
- Mespilus oxyacanthoides (Thuill.) DC.
- Oxyacantha obtusata (DC.) Roem.
- Oxyacantha vulgaris (DC.) Roem.
El Rechazo del Nombre Crataegus oxyacantha
Linneo reunió bajo Crataegus oxyacantha lo que hoy se reconoce como dos especies distintas, y los autores regionales de casi toda Europa siguieron empleando el binomio como término agregado. La primera flora británica que separó C. laevigata de C. monogyna fue la de Babington, en 1843, que las trató como variedades aunque ya sugería que podían constituir especies propias. La ambigüedad solo se resolvió por vía formal cuando Byatt, en 1974, demostró que el nombre linneano no podía aplicarse con seguridad a ninguna de las dos plantas, lo que llevó a su rechazo.
Existe además una discusión menor sobre la grafía del epíteto. Gutermann sostuvo en 2011 que la forma correcta sería levigata, a partir de su lectura de la publicación de De Candolle, pero el examen detenido del original que llevaron a cabo Christensen y Talent en 2012 confirmó laevigata como grafía válida.
Subespecies
El tratamiento de Sell y Murrell reconoce dos entidades infraespecíficas, tratadas por otros autores como variedades. La subsp. laevigata predomina en el oeste del área de distribución y en las tierras bajas, y es la forma dominante en Gran Bretaña, con hojas de 15 a 35 milímetros, casi glabras y sin mechones de pelos en las axilas de los nervios del envés. La subsp. palmstruchii es más frecuente en las montañas y en el este, con hojas de 30 a 50 milímetros, nervios más densamente pubescentes por el envés, mechones de pelos axilares presentes, hipanto piloso y frutos elipsoides mayores, de 10 a 14 milímetros por 13 a 15 milímetros.
Etimología
El nombre genérico Crataegus procede del griego krataigos, derivado de kratys, fuerza o dureza. La segunda parte del compuesto admite más de una lectura: algunos autores la asocian a akis, punta aguda, en referencia a las espinas, mientras que otros la vinculan a aix, cabra, sugiriendo la cerca viva capaz de contener al rebaño. Las tres interpretaciones convergen en los mismos atributos de la planta, la dureza de la madera y el armamento de las ramas. El epíteto laevigata deriva del latín laevigare, alisar o pulir, y describe la superficie glabra y lustrosa del follaje, un carácter que también le valió a la especie el nombre inglés de espino liso.
Descripción Morfológica
Árbol pequeño caducifolio que alcanza los 8 metros de altura con cierta frecuencia y excepcionalmente los 12 metros, aunque se presenta con igual frecuencia como arbusto multicaule de porte desordenado. La copa es densa, ancha y redondeada, y el tronco no se prolonga mucho hacia dentro de ella, pues ramifica pronto. Las ramas son extendidas o ascendentes, en general menos rígidas que las de C. monogyna, y tienden a colgar en los extremos. Las yemas son ovoides a subglobosas, de ápice redondeado, y miden entre 1,1 y 2,1 milímetros de largo por 1,2 a 1,9 milímetros de ancho, con escamas de color castaño oscuro.
Hojas
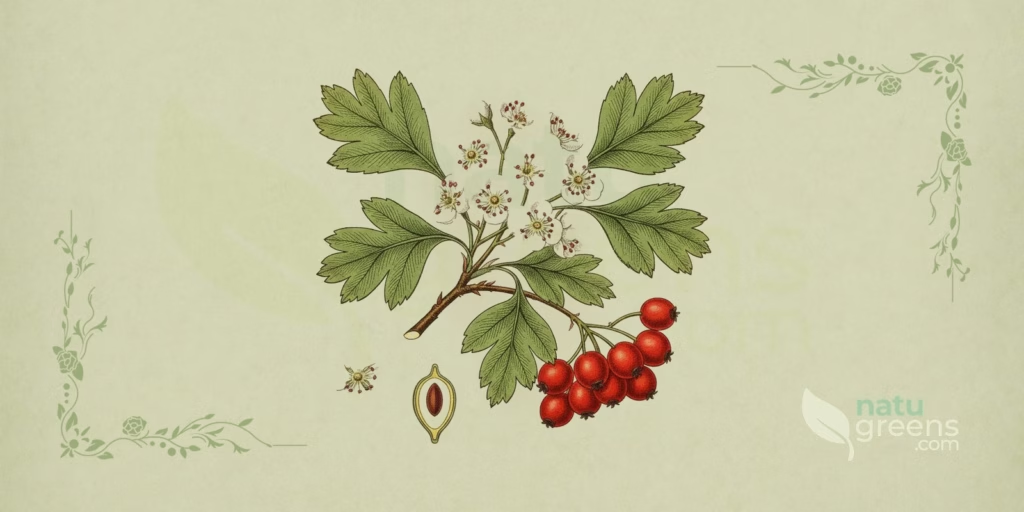
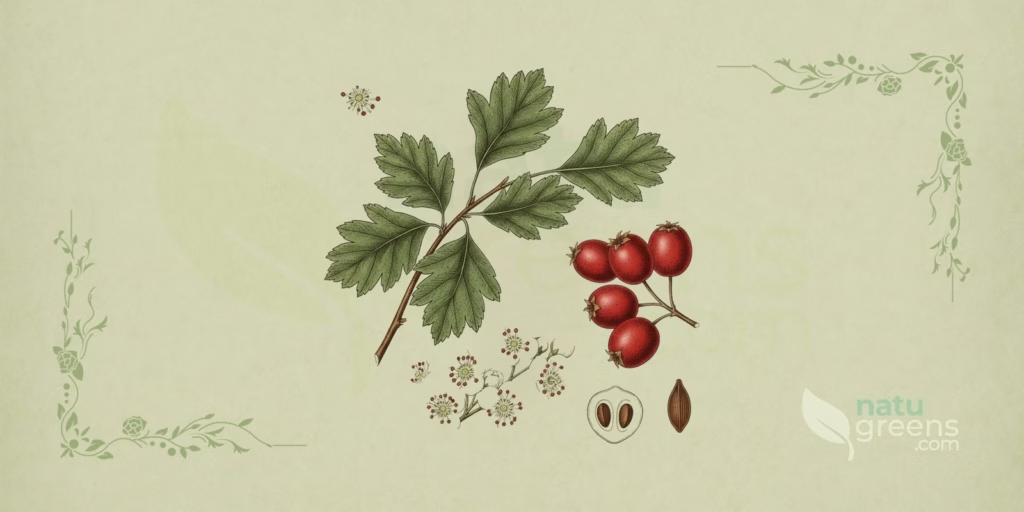
Las hojas son alternas, con frecuencia coriáceas, verde oscuras y brillantes por el haz y verde pálidas por el envés. Son glabras salvo por pelos dispersos a lo largo de los nervios principales en ambas caras cuando son jóvenes, y de manera característica carecen de los mechones de pelos en las axilas de los nervios que son comunes en C. monogyna en Gran Bretaña. El contorno va de obovado a casi redondeado, con uno a tres pares de lóbulos obtusos y someros que rara vez alcanzan la mitad de la distancia hasta el nervio central. Los lóbulos son redondeados de contorno y más anchos que largos, con margen crenado-aserrado excepto en los senos, y el lóbulo basal presenta de 6 a 15 dientes.
El tamaño varía según la posición en la rama, y esa variación tiene valor práctico para quien recolecta material de herbario. Las hojas de los ramos largos son las mayores y las más profundamente lobuladas, y miden de 1,9 a 7,2 centímetros por 1,8 a 5,1 centímetros. Las de los ramos cortos quedan entre 2,0 y 6,0 centímetros por 1,5 a 3,2 centímetros, y las de los ramos floríferos son todavía menores, con uno o dos pares de lóbulos o ninguno. Los nervios principales son rectos o se curvan hacia delante en dirección al ápice de la hoja, al contrario de lo que ocurre en C. monogyna, donde se curvan hacia atrás. La base es cuneada o redondeada, el ápice acuminado, el pecíolo mide de 6 a 20 milímetros y las estípulas son conspicuas y foliáceas en los ramos largos.
Flores
Las flores nacen sobre todo en ramos cortos, reunidas en corimbos laxos de 3 a 11 unidades, de 2,5 a 5,0 centímetros de ancho. Los pedicelos miden de 6 a 30 milímetros y son glabros o rara vez vellosos, un carácter que ayuda a separar la especie de C. monogyna, cuyos pedicelos son pubescentes. Cada flor es hermafrodita y mide de 15 a 18 milímetros de diámetro. Los sépalos, cinco en número, son anchamente triangulares, tan anchos como largos, de margen entero y ápice agudo. Los cinco pétalos son blancos o de un rosa pálido, con papilas estriadas, y miden de 5 a 10 milímetros por 5 a 9 milímetros. El hipanto tiene de 3 a 4 milímetros y es glabro.
Los estambres suman de 17 a 22, con filamentos pálidos y anteras rosadas, rara vez purpúreas. Los estilos son por lo general dos, aunque pueden variar de uno a cinco en flores aisladas, y los estigmas son amarillos. El número de estilos constituye el carácter diagnóstico más fiable del grupo, porque se traduce directamente en el número de huesos del fruto y sigue siendo legible incluso en material seco.
Frutos y Semillas
El fruto es un pomo subgloboso a elipsoide, de color rojo oscuro en la madurez, con 8 a 10 milímetros de diámetro en la mayoría de los ejemplares y una amplitud registrada de 6 a 14 milímetros, por 6 a 12 milímetros de largo. El volumen medio, de unos 1,60 centímetros cúbicos, es más del doble del medido en C. monogyna, cercano a 0,73 centímetros cúbicos. La superficie es por lo general glabra y carece de protuberancias basales, y el ápice luce la corona de sépalos persistentes, recurvados o extendidos. La pulpa es amarillenta, con un contenido de humedad de entre el 68 y el 77 por ciento.
Los huesos, o pirenos, son en general dos y acompañan al número de estilos de la flor que los originó. Miden alrededor de 5 a 6 milímetros, con excavaciones dorsal y ventrolaterales, y difieren sutilmente de los de C. monogyna por su extremo más obtuso, frente al ápice puntiagudo de la especie hermana. Cada fruto guarda de media entre 2,1 y 2,8 semillas, con una masa individual de 60 a 68 miligramos, por tanto menores que las de C. monogyna, que quedan entre 97 y 130 miligramos. Los estudios de ecología de la dispersión clasifican los frutos como no tóxicos, sin riesgo para los animales que los consumen, seres humanos incluidos.
Corteza y Ramillas
La corteza es de un gris pardusco a pardo anaranjado y se agrieta y fisura con la edad. Las ramillas son de un gris pardusco mate, densamente dispuestas, y se presentan brillantes y glabras cuando son jóvenes. Las espinas son menos numerosas y más cortas que en C. monogyna, y miden de 6 a 15 milímetros, una diferencia coherente con el hábito forestal de la especie, menos expuesta al ramoneo que las poblaciones de seto.
Distribución y Hábitat
La especie es nativa de Europa occidental y central. El área de ocurrencia natural se extiende desde las islas británicas hacia el este hasta Chequia y Hungría, con presencia casi con certeza nativa en Rumanía y Ucrania. Hacia el norte alcanza el sur de Suecia, Letonia y Estonia, y hacia el sur llega a los Pirineos españoles y a Italia, muy probablemente incluida Sicilia. Las bases taxonómicas registran además su presencia en Alemania, Austria, Bélgica, Bielorrusia, Córcega, Dinamarca, Eslovaquia, Francia, Noruega, Países Bajos, Polonia, Rusia europea y Suiza. Está más difundida en la porción centro-septentrional de esa área y se vuelve rara en los bordes, como en Bélgica, y falta en Grecia.
En las islas británicas la distribución es bastante más restringida que la de C. monogyna. La especie se concentra en el sur y el este de Inglaterra, y avanza de forma natural hasta las Midlands, de donde procede su nombre vernáculo inglés. Está en gran medida ausente como planta espontánea de Escocia y de Gales, y los registros escoceses corresponden casi siempre a ejemplares plantados. Si es o no nativa de Irlanda sigue en discusión: hay ejemplares maduros en varios condados y un registro de herbario del híbrido fechado en 1895, pero la hipótesis más aceptada atribuye su presencia a material de vivero inglés introducido durante los cercamientos parlamentarios.
Fuera del área natural la especie fue llevada a diversas regiones templadas. Se naturalizó en las Gulf Islands del estado de Washington, en Canadá y en el este de los Estados Unidos, y fue introducida en Tasmania y en otras partes de Australia en el siglo XIX para la formación de setos, donde hoy se considera planta dañina nociva en varios estados. Existen además registros de Japón, Nueva Zelanda, Tanzania y África occidental, así como del Himalaya templado de la India, entre los 1.800 y los 3.000 metros de altitud.
El hábitat típico define a la especie tanto como su morfología. Se trata de una planta de bosque antiguo, tolerante a la sombra, que se encuentra en el interior de montes maduros, en orlas de bosque, setos viejos y taludes de linde sobre suelos arcillosos. Prefiere suelos de textura pesada, de franco a arcilloso, y evita de forma constante la creta, la caliza, los suelos oolíticos y las arcillas con sílex, una restricción que explica su concentración en las Midlands inglesas y en el Weald del sureste. El valor indicador de Ellenberg para el pH en Gran Bretaña es 7, compatible con condiciones que van de débilmente ácidas a débilmente básicas. En altitud va desde el nivel del mar en el oeste hasta los 810 metros en los Sudetes polacos, 956 metros en Eslovenia, 1.281 metros en los montes Tatra y 1.560 metros en el Piano Ruggio, en Italia.
Cultivo
La especie es subatlántica y prefiere un clima templado fresco. Las medias registradas en Gran Bretaña se sitúan en 3,5 grados Celsius para enero y 16,2 grados para julio, con una precipitación anual cercana a los 674 milímetros, por tanto en ambientes ligeramente más cálidos y secos que los que ocupa C. monogyna. Soporta bien los inviernos del centro y del norte de Europa y no tiene exigencia térmica que la restrinja dentro de las zonas templadas.
En cuanto al suelo, crece en una franja amplia de sustratos, incluidos los silíceos y moderadamente ácidos, y tolera una variación considerable de humedad. Dentro de esa amplitud, sin embargo, se desempeña mejor en suelos francos y arcillosos, sobre todo los pesados. La tolerancia a la sombra es el rasgo agronómico que la distingue: florece sin dificultad incluso bajo dosel cerrado y domina el sotobosque de los montes bajos crecidos, una situación en la que C. monogyna no llega a establecerse. Allí donde la luz aumenta por perturbación o corta, la relación se invierte y la especie pierde terreno.
Propagación por Semilla
Las semillas presentan una dormición doble, combinación de tegumento duro con una exigencia fisiológica de frío. Sin tratamiento previo la germinación puede no producirse antes de 18 meses, o incluso antes de la tercera estación de crecimiento posterior a la producción. El protocolo establecido en ensayos polacos consiste en una estratificación cálida en medio húmedo, con temperatura alternando entre 20 y 30 grados Celsius durante 16 a 20 semanas, seguida de una fase fría a 3 grados durante 16 a 18 semanas, periodo al final del cual las radículas ya despuntan. Ese tratamiento eleva la germinación del 2 a 4 por ciento hasta el 87 a 94 por ciento, y las plántulas emergen entre cuatro y seis semanas después de la siembra.
La escarificación química en ácido sulfúrico concentrado durante dos a tres horas, seguida de embebición en agua durante 24 horas, permite acortar la fase cálida de 16 a 20 semanas a solo cuatro, con tasas de germinación equivalentes. Las semillas son ortodoxas y pueden secarse hasta un 9 a 13 por ciento de humedad sin pérdida de viabilidad, y toleran el almacenamiento a menos 3 grados Celsius durante 12 meses con una caída modesta en la germinación. La germinación es epigea y la radícula se desarrolla en una raíz pivotante con laterales finas y cortas.
Propagación Vegetativa y Sanidad
Los cultivares ornamentales se multiplican por injerto, una práctica que además preserva caracteres florales que no se transmiten por semilla. La especie responde bien al corte y forma cepas grandes bajo régimen de monte bajo, lo que favorece su permanencia en bosques manejados. También se ha evaluado como portainjerto enanizante para perales, con compatibilidad descrita para clones de Pyrus communis y otras Maleae.
El punto sensible del cultivo es la sanidad. Los espinos europeos, esta especie incluida, son muy susceptibles al fuego bacteriano causado por Erwinia amylovora, y los cultivares ‘Paul’s Scarlet’ y ‘Rosea Flore Pleno’ figuran entre los más afectados. Las plantaciones pueden funcionar como reservorio de inóculo para manzanos y perales vecinos, aunque el riesgo asociado a C. laevigata es menor que el de C. monogyna por su presencia más forestal y más alejada de los frutales. A ello se suman el oídio Podosphaera clandestina, las royas del género Gymnosporangium, que exigen un hospedante alternante de Juniperus, y la mancha foliar provocada por Entomosporium thuemenii y Diplocarpon mespili.
Fenología
La floración ocurre de abril a junio, y se desplaza hacia el final de ese intervalo en el extremo norte de la distribución, en Suecia. En el sureste de Inglaterra la coincidencia con el calendario litúrgico le valió a la planta el nombre local de rosa de Pentecostés. Los datos neerlandeses de serie larga documentan un adelanto expresivo: el inicio medio de la floración pasó del 17 de mayo, en la serie de 1940 a 1968, al 1 de mayo en la serie de 2001 a 2010. Las flores abren antes de que las hojas estén plenamente desarrolladas, y más temprano en los arbustos que en los árboles.
La especie entra en hoja antes que C. monogyna y florece unos 8 a 14 días antes que ella. Esa anticipación resulta insuficiente para constituir una barrera reproductiva, porque el solapamiento de los periodos de floración de ambas especies llega al 40 por ciento, lo que sostiene la formación continua del híbrido. En condiciones controladas, algunas plantas se mantuvieron floridas durante 12 días, con flores aisladas que duraron 8 días.
Las flores son protóginas. Las anteras de los estambres más externos liberan polen uno o dos días después de la apertura de la flor, y los filamentos se curvan hacia dentro en los días cálidos, una disposición que haría mecánicamente viable la autopolinización. La especie es, sin embargo, ampliamente autoincompatible: los ensayos de cruzamiento obtuvieron fructificación en el 30 a 59 por ciento de las flores bajo polinización cruzada, frente a apenas un 2 por ciento bajo autopolinización. La polinización es entomófila, sobre todo por himenópteros y dípteros atraídos por el néctar y por el olor de las flores, que resulta de la emisión de trimetilamina. El polen presenta una viabilidad alta, del 96 al 98 por ciento.
Los frutos se desarrollan a lo largo de unos 106 días, frente a los 89 días de C. monogyna, y maduran entre junio y noviembre, con maduración tardía en las poblaciones septentrionales. Un fruto maduro persiste en la planta durante unos 64 días, y el árbol mantiene frutos maduros una media de 82 días, frente a los 150 días de C. monogyna. La dispersión corresponde principalmente a las aves frugívoras, con protagonismo del mirlo, el zorzal real, el zorzal alirrojo y el zorzal común, y las semillas atraviesan el tracto digestivo o son regurgitadas. No hay banco de semillas persistente en el suelo, una característica que hace que la regeneración dependa de la lluvia de semillas reciente.
Especies Relacionadas y Confusiones
La identificación de Crataegus en campo es reconocidamente difícil, y el material examinado debe incluir frutos maduros y hojas de ramos laterales cortos para permitir una determinación segura. Un ejemplar juzgado solo por las hojas de brotes vigorosos conduce a error con facilidad.
Distinción de Crataegus monogyna
Esta es la confusión central del grupo y la razón de que exista el rechazo del nombre C. oxyacantha. Los caracteres que separan a las dos especies son los siguientes:
- Espinas: menos numerosas y más cortas en C. laevigata, de 6 a 15 milímetros, y más largas y frecuentes en C. monogyna.
- Estilos: por lo general dos en C. laevigata, con variación de uno a cinco; uno solo en C. monogyna.
- Huesos del fruto: C. laevigata tiene generalmente dos pirenos, y puede llegar a tres; C. monogyna tiene un único pireno, ocasionalmente dos.
- Lóbulos foliares: uno a tres pares de lóbulos someros y redondeados que rara vez alcanzan la mitad de la distancia hasta el nervio central en C. laevigata, frente a cinco a siete lóbulos profundos y agudos que superan dos tercios de esa distancia en C. monogyna.
- Nervios principales: rectos o curvados hacia delante en C. laevigata, curvados hacia atrás en C. monogyna.
- Pedicelos y mechones de pelos: pedicelos glabros y axilas de los nervios sin mechones de pelos en C. laevigata, frente a pedicelos pubescentes y mechones axilares presentes en C. monogyna en Gran Bretaña.
- Tamaño de la flor: por encima de 15 milímetros de diámetro en C. laevigata, hasta 15 milímetros en C. monogyna.
Lo que complica el cuadro es que ambas especies son interfértiles y producen el híbrido Crataegus × media Bechst., de morfología intermedia, con uno a dos estilos e igual número de huesos. La única barrera relevante a la hibridación es la separación espacial de los hábitats, y allí donde la fragmentación forestal ha acercado a las poblaciones el híbrido se ha vuelto frecuente, en varias regiones británicas más común que la propia C. laevigata. Un ejemplar con dos estilos, por tanto, no es automáticamente C. laevigata, y el diagnóstico gana fiabilidad cuando varios caracteres apuntan en la misma dirección.
Distinción de Crataegus mexicana
La separación respecto al tejocote es inmediata y no depende de caracteres sutiles. La especie mexicana produce pomos de 1,5 a 3 centímetros de diámetro, de un amarillo dorado a anaranjado en la madurez, frente a los frutos de un rojo oscuro de 8 a 10 milímetros de la especie europea. Las hojas de C. mexicana son romboide-elípticas a ovado-lanceoladas, de margen aserrado y sin lobulación marcada, mientras que las de C. laevigata son obovadas y lobuladas. La inflorescencia mexicana reúne de 2 a 6 flores en umbela, frente a los corimbos de 3 a 11 flores de la europea. A ello se suman la distribución enteramente disyunta, con C. mexicana restringida a las montañas de México y Guatemala, y la persistencia de un follaje más coriáceo en la especie neotropical.
Otras Especies y la Ambigüedad de los Nombres Populares
Además de con C. monogyna, la especie hibrida con C. rhipidophylla, y origina C. × macrocarpa, y con C. lindmanii, y forma C. × calycina. Se registra además el híbrido intergenérico con el níspero europeo, Mespilus germanica, denominado × Crataemespilus grandiflora, junto a las quimeras de injerto conocidas como Crataegomespilus, obtenidas al injertar níspero sobre espino.
Conviene una advertencia sobre la nomenclatura vernácula en español. La lengua no desarrolló nombres populares que separen a las dos especies europeas del género, y términos como espino albar, espino navarro, majuelo y marzoleto se aplican de forma preferente a C. monogyna, que es la especie de presencia corriente en la península ibérica. La designación espino blanco circula en español asociada a C. laevigata, herencia directa del antiguo nombre farmacéutico C. oxyacantha, pero también se emplea en sentido amplio para el género entero. Ante cualquier texto en español que use solo el nombre popular, la identificación de la especie depende de verificar el binomio citado y, cuando sea posible, los caracteres descritos.
Fitoquímica
Esta sección describe la composición química documentada para la especie. Se trata de una caracterización analítica, sin relación alguna con efectos en las personas.
El contenido fenólico total medido en C. laevigata alcanza los 1.288 miligramos por 100 gramos de masa fresca, con ácidos fenólicos totales en 964 miligramos por 100 gramos, valores próximos a los de C. monogyna y superiores a los de otros siete arbustos analizados en el mismo estudio. En las partes floríferas de muestras europeas silvestres, el contenido fenólico total varió de 3 a 19 gramos por kilogramo de masa seca, con una media de 12 gramos por kilogramo.
La caracterización por cromatografía acoplada a espectrometría de masas identificó 54 compuestos en las hojas y 47 en las flores de la especie, frente a 38 y 41 en C. monogyna. Las clases representadas incluyen ácidos clorogénicos y otros ácidos fenólicos, proantocianidinas, glicósidos flavonoides y agliconas flavonoides. Entre los flavonoides descritos figuran apigenina, catequina, epicatequina, hiperósido, isoquercitrina, isovitexina, procianidina B-2, quercetina, rutina y vitexina. Las proantocianidinas alcanzan los 40,6 gramos por kilogramo en material esloveno, y el contenido total de flavonoides de las flores resultó el más alto entre diez especies de Crataegus comparadas.
La composición tiene interés taxonómico. La vitexina y sus derivados aparecen en concentración más alta en las hojas de las especies europeas del género, mientras que la rutina se concentra de forma marcada en las norteamericanas. La ausencia de isoorientina, orientina, 8-metoxikaempferol-3-O-glucósido y 4»-acetil-vitexina-2»-O-ramnósido en C. laevigata se ha propuesto como criterio químico auxiliar para separarla de C. monogyna, lo que da a la fitoquímica un papel de apoyo en la delimitación de las especies.
Entre los triterpenos, los ácidos oleanólico y ursólico son los componentes prominentes. Los análisis de compuestos orgánicos volátiles detectaron los sesquiterpenos cariofileno y humuleno en las emisiones florales, con farneseno y el monoterpeno limoneno apareciendo después de la floración. No se detectaron alcaloides ni saponinas verdaderas en la especie, aunque sí se identificó el pseudosaponósido tormentósido. Los cristales de ácido oxálico aparecen en todas las partes de la planta y representan el 0,065 por ciento de la masa seca foliar.
La concentración de metabolitos responde a las condiciones ambientales. Las plántulas sometidas a diez días de sequía presentaron una elevación de epicatequina e hiperósido con reducción de vitexina y acetilvitexina, mientras que el estrés por frío a 4 grados Celsius elevó la vitexina, la epicatequina, el hiperósido, la quercetina y la acetilvitexina. La especie acumula además metales pesados en raíces y hojas cuando se cultiva en suelo contaminado.
Historia y Etnobotánica
La separación evolutiva entre C. laevigata y C. monogyna se ha datado mediante análisis de ADN de cloroplasto en unos diez millones de años, lo que convierte el parecido morfológico entre ambas en un caso de conservación de la forma a lo largo de un intervalo considerable. El registro fósil, en cambio, no distingue a las dos: los macrofósiles de madera y carbón son indistinguibles, y por regla general lo mismo vale para las semillas. Los granos de polen pueden separarse estadísticamente, ya que los de C. laevigata son predominantemente esferoidales, de 28 a 40 micrómetros y con estriación de bajo relieve, frente a granos alargados de 30 a 44 micrómetros y relieve alto en C. monogyna, pero el criterio nunca llegó a aplicarse en la práctica paleobotánica.
El espino es una planta común en los bosques europeos desde el Mesolítico, y todo periodo cultural del Neolítico a la época normanda dejó registros del género. La mayor parte del material prehistórico identificado corresponde a C. monogyna, especie pionera más eficiente en un paisaje en apertura, aunque la posibilidad de que C. laevigata haya sido subestimada por dificultad de identificación sigue abierta.
Los usos históricos registrados para la madera y para la planta son variados. La madera, densa y de grano uniforme, se empleó en la confección de mangos de herramienta y bastones. La corteza y las raíces proporcionaron un tinte amarillo o pardo, y la corteza se utilizó en curtido, práctica documentada en Argel. Los frutos se consumieron frescos y se transformaron en zumos, jaleas y aguardiente en varias regiones europeas, y se secaban para el consumo invernal; los huesos tostados sirvieron como sucedáneo de café. En Italia, el espino se plantó de manera corriente para cercar parcelas agrícolas, una función que se perdió con la mecanización y la necesidad de circulación de la maquinaria, lo que llevó a la desaparición casi completa de aquellos setos.
En el campo de la antigua materia médica, el registro se remonta a Dioscórides, en el siglo I, que designó la planta con el nombre griego que originaría el binomio linneano rechazado. Fue esa trayectoria nomenclatural, y no ningún atributo botánico, la que fijó Crataegus oxyacantha en la literatura farmacéutica europea durante tanto tiempo, razón por la cual el binomio sigue apareciendo en fuentes que describen indistintamente una u otra de las dos especies europeas.
Conservación
La especie está evaluada como de Preocupación Menor en la Lista Roja de la UICN, una categoría coherente con su amplia distribución europea. Consta también de la Lista Roja de las plantas vasculares de Luxemburgo, allí igualmente en la categoría de preocupación menor, junto a C. monogyna y C. rhipidophylla.
Esas cifras, sin embargo, esconden un proceso que merece atención. La frecuencia registrada de C. laevigata en Gran Bretaña ha cambiado poco desde 1962, pero parte de esa estabilidad aparente procede de plantaciones hechas dentro y fuera del área nativa, y otra parte de la facilidad con que la especie se confunde con el híbrido C. × media, lo que hace que algunos registros nuevos correspondan en realidad al híbrido. Tras esa apariencia de estabilidad hay un fuerte indicio de declive de las poblaciones genéticamente puras, con especial gravedad en el sureste inglés.
El mecanismo se comprende bien. La perturbación y la fragmentación de los bosques abren espacio para que C. monogyna penetre en ambientes antes ocupados solo por la especie de sombra, y como ambas son plenamente interfértiles la consecuencia es la hibridación seguida de introgresión. La evaluación más pesimista de la literatura llegó a sugerir, ya en 1975, que la C. laevigata pura podría desaparecer por completo a medida que avanzara la introgresión, y se identificó un problema equivalente en Bélgica y en Polonia. Sobreviven poblaciones relativamente puras allí donde los macizos forestales son grandes y están poco fragmentados, como en los extensos bosques del noreste francés.
La situación se invierte en los bordes de la distribución. En Bulgaria, en el extremo sureste del área nativa, el híbrido C. × media es raro hasta el punto de haber sido propuesto para su inclusión en el libro rojo nacional con necesidad de protección legal. La ausencia de un banco de semillas persistente en el suelo añade un factor de fragilidad, porque la recuperación de una población depende enteramente de la dispersión reciente por aves.
Curiosidades
- La dispersión de la especie se ha documentado a partir de fuentes inesperadas: se han identificado huesos de espino en excrementos de grulla, de oso y de ungulados, y existe un relato antiguo de un halcón peregrino cuyo posadero acumulaba huesos procedentes de los buches de las palomas capturadas.
- De Candolle registró en 1825 una técnica de horticultura que consistía en alimentar a los pavos con los huesos de la planta, cuyo paso por el tracto digestivo de las aves adelantaba la germinación en cerca de un año respecto a las semillas sin tratar.
- El olor de las flores, desagradable para el olfato humano, se debe a la emisión de trimetilamina, el mismo compuesto asociado al olor del pescado en descomposición, y es justamente él quien atrae a los dípteros responsables de parte de la polinización.
- Los ensayos daneses en invernadero midieron hasta qué punto la especie depende de los polinizadores: las plantas visitadas por la abeja cortadora Megachile rotundata produjeron 269 frutos, frente a un único fruto en las plantas mantenidas sin acceso a insectos.
- El cultivar ‘Paul’s Scarlet’, de flores dobles rojas, surgió hacia 1880 como mutación de rama del cultivar ‘Rosea Flore Pleno’ y tiene un estatuto ambiguo: en Gran Bretaña y en América del Norte se atribuye a C. laevigata, mientras que en la Europa continental se suele tratar como cultivar del híbrido C. × media.
- Una mariposa nocturna diminuta, Coleophora coracipennella, perfora los botones florales para alimentarse de polen y llegó a esterilizar el 20 por ciento de las flores de una población estudiada en Oxfordshire, con reflejo directo en la producción de frutos de aquel año.
- El Glastonbury Thorn, el espino legendario asociado a la tradición inglesa por florecer dos veces al año, no pertenece a esta especie: se trata del cultivar ‘Biflora’ de C. monogyna, una atribución que los textos de divulgación cambian con frecuencia.
- El estudio clásico de Southwood contabilizó 149 especies de insectos asociadas a los espinos británicos, una cifra que da la medida del papel de estos árboles como soporte de fauna, aunque quede bastante por debajo de las 284 especies registradas en robles.
Aviso: este contenido es informativo y no sustituye la orientación de un profesional de la salud. Consulte a un médico o fitoterapeuta antes de usar plantas medicinales, especialmente durante el embarazo, la lactancia o si toma medicamentos.
Referencias y Estudios Científicos
Ver Todas las 16 Referencias Citadas
Estudios Científicos Revisados por Pares (3)
- DOI2021 Thomas, P. A., Leski, T., La Porta, N., Dering, M., Iszkuło, G. Biological Flora of the British Isles: Crataegus laevigata. Journal of Ecology, 109(1), 572-596. 2021. ↗
- DOI2012 Edwards, J. E., Brown, P. N., Talent, N., Dickinson, T. A., Shipley, P. R. A review of the chemistry of the genus Crataegus. Phytochemistry, 79, 5-26. 2012. ↗
- DOI2021 Fichtner, A., Wissemann, V. Biological Flora of the British Isles: Crataegus monogyna. Journal of Ecology, 109, 541-571. 2021. ↗
Lecturas Complementarias (13)
- 1992 Christensen, K. I. Revision of Crataegus sect. Crataegus and nothosect. Crataeguineae (Rosaceae-Maloideae) in the Old World. Systematic Botany Monographs, 35, 1-199. 1992.
- 1974 Byatt, J. I. Application of the names Crataegus calycina Peterm. and C. oxyacantha L. Botanical Journal of the Linnean Society, 69, 15-21. 1974.
- 1975 Byatt, J. I. Hybridization between Crataegus monogyna Jacq. and C. laevigata (Poiret) DC. in south-eastern England. Watsonia, 10, 253-264. 1975.
- 2012 Christensen, K. I., Talent, N. Crataegus laevigata or C. levigata (Rosaceae), a paleographic analysis. Phyton (Horn, Austria), 52(2), 195-201. 2012.
- de Candolle, A. P. Prodromus Systematis Naturalis Regni Vegetabilis, pars 2. Paris. 1825.
- Poiret, J. L. M. Mespilus laevigata. In: Encyclopédie Méthodique, Botanique, 4(2), 439. Paris. 1798.
- 2006 Bujarska-Borkowska, B. Seed dormancy breaking in Crataegus laevigata. Dendrobiology, 56, 3-11. 2006.
- 2015 Karar, M. G. E., Kuhnert, N. UPLC-ESI-Q-TOF-MS/MS characterization of phenolics from Crataegus monogyna and Crataegus laevigata leaves, fruits and their derived drops. Journal of Chemical Biology & Therapeutics, 1, e102. 2015.
- 2012 Lo, E. Y. Y., Donoghue, M. J. Expanded phylogenetic and dating analyses of the apples and their relatives (Pyreae, Rosaceae). Molecular Phylogenetics and Evolution, 63, 230-243. 2012.
- 1991 Eriksson, O., Ehrlén, J. Phenological variation in fruit characteristics in vertebrate-dispersed plants. Oecologia, 86, 463-470. 1991.
- 2014 Sell, P., Murrell, G. Flora of Great Britain and Ireland, vol. 2. Cambridge University Press. 2014.
- International Plant Names Index. Crataegus laevigata (Poir.) DC. Royal Botanic Gardens Kew, Harvard University Herbaria and Australian National Herbarium. Registro 723644-1. ↗
- Plants of the World Online. Crataegus laevigata (Poir.) DC. Royal Botanic Gardens Kew. ↗