Crataegus laevigata est l’aubépine des forêts anciennes d’Europe occidentale et centrale, un petit arbre qui occupe l’intérieur ombragé des futaies mûres tandis que sa congénère mieux connue règne sur les haies et les lisières ouvertes. Elle appartient aux Rosaceae, la famille qui rassemble le pommier, le poirier, le rosier et le fraisier, et s’y range dans la tribu des Maleae, le groupe des fruits à pépins. En Grande-Bretagne, où elle a fait l’objet de l’une des études écologiques les plus détaillées jamais consacrées à une espèce ligneuse européenne, elle sert de plante indicatrice de forêt ancienne, un statut qui permet de lire l’histoire d’un boisement à partir de ce qui y pousse.
Peu de plantes européennes traînent un dossier nomenclatural aussi embrouillé. Pendant plus de deux siècles, cette espèce et le Crataegus monogyna n’ont fait qu’une seule et même plante sous le nom de Crataegus oxyacantha, un binôme finalement rejeté pour ambiguïté précisément parce que personne n’est parvenu à établir laquelle des deux Linné avait sous les yeux. La trace de cette confusion survit dans la littérature ancienne, dans les catalogues de pépinière et sur les étiquettes commerciales, et elle oblige quiconque lit des sources antérieures au vingtième siècle à examiner le matériel décrit avant d’accepter le nom imprimé au-dessus.
Cette page réunit la fiche botanique de l’espèce: classification formelle, caractères d’identification sur le terrain, répartition et milieu, exigences de culture, calendrier reproductif, parentes proches avec lesquelles on la confond, composition chimique descriptive, données historiques et ethnographiques, et situation de conservation.
Taxonomie
La position de l’espèce dans la classification botanique actuelle est la suivante:
- Règne: Plantae
- Division: Tracheophyta (Magnoliophyta, angiospermes)
- Classe: Magnoliopsida (eudicotylédones)
- Ordre: Rosales
- Famille: Rosaceae
- Sous-famille: Amygdaloideae
- Tribu: Maleae
- Genre: Crataegus L., 1753
- Espèce: Crataegus laevigata (Poir.) DC., 1825
Le basionyme est Mespilus laevigata Poir., publié en 1798 dans l’Encyclopédie Méthodique, et le transfert vers Crataegus revient à Augustin Pyramus de Candolle, dans le second volume du Prodromus Systematis Naturalis Regni Vegetabilis, de 1825. La notice de l’IPNI confirme la paternité du nom et la page de publication originale.
Le genre compte parmi les plus difficiles de la famille. Selon le traitement adopté, le nombre d’espèces acceptées oscille entre environ 140 et plus d’un millier, une amplitude qui ne traduit pas l’ignorance des spécialistes mais la biologie du groupe: hybridation étendue, apomixie et polyploïdie produisent des populations intermédiaires qui résistent aux limites nettes.
Synonymes Acceptés
- Crataegus coriacea Gand.
- Crataegus helvetica Walo Koch
- Crataegus oxyacantha f. laevigata (Poir.) Beck
- Crataegus oxyacanthoides Thuill.
- Crataegus palmstruchii Lindm.
- Crataegus subinermis Gand.
- Mespilus digyna Gray
- Mespilus intermedia Poir.
- Mespilus laevigata Poir.
- Mespilus oxyacanthoides (Thuill.) DC.
- Oxyacantha obtusata (DC.) Roem.
- Oxyacantha vulgaris (DC.) Roem.
Le Rejet du Nom Crataegus oxyacantha
Linné a réuni sous Crataegus oxyacantha ce que l’on reconnaît aujourd’hui comme deux espèces distinctes, et les auteurs régionaux de presque toute l’Europe ont continué d’employer le binôme comme terme collectif. La première flore britannique à séparer C. laevigata de C. monogyna fut celle de Babington, en 1843, qui les traitait en variétés tout en suggérant déjà qu’elles pourraient constituer des espèces à part entière. L’ambiguïté ne s’est résolue formellement que lorsque Byatt, en 1974, a montré que le nom linnéen ne pouvait s’appliquer avec certitude à aucune des deux plantes, ce qui a conduit à son rejet.
Il subsiste par ailleurs une discussion mineure sur la graphie de l’épithète. Gutermann a soutenu en 2011 que la forme correcte serait levigata, en s’appuyant sur sa lecture de la publication de De Candolle, mais l’examen attentif de l’original mené par Christensen et Talent en 2012 a confirmé laevigata comme graphie valide.
Sous-espèces
Le traitement de Sell et Murrell reconnaît deux entités infraspécifiques, considérées par d’autres auteurs comme des variétés. La subsp. laevigata prédomine dans l’ouest de l’aire et dans les basses terres, et constitue la forme dominante en Grande-Bretagne, avec des feuilles de 15 à 35 millimètres, presque glabres et dépourvues de touffes de poils à l’aisselle des nervures de la face inférieure. La subsp. palmstruchii est plus fréquente en montagne et vers l’est, avec des feuilles de 30 à 50 millimètres, des nervures plus densément pubescentes en dessous, des touffes de poils axillaires présentes, un hypanthe poilu et des fruits ellipsoïdes plus grands, de 10 à 14 millimètres sur 13 à 15 millimètres.
Étymologie
Le nom générique Crataegus vient du grec krataigos, dérivé de kratys, force ou dureté. La seconde partie du composé se prête à plus d’une lecture: certains auteurs l’associent à akis, pointe aiguë, en référence aux épines, tandis que d’autres la rattachent à aix, chèvre, évoquant la clôture vive capable de contenir le troupeau. Les trois interprétations convergent vers les mêmes attributs de la plante, la dureté du bois et l’armement des rameaux. L’épithète laevigata dérive du latin laevigare, lisser ou polir, et décrit la surface glabre et luisante du feuillage, un caractère qui a également valu à l’espèce le nom anglais d’aubépine lisse.
Description Morphologique
Petit arbre caducifolié qui atteint 8 mètres de hauteur avec une certaine régularité et exceptionnellement 12 mètres, bien qu’il se présente tout aussi souvent en arbuste multicaule au port désordonné. La couronne est dense, large et arrondie, et le tronc ne s’y prolonge guère, car il se ramifie tôt. Les rameaux sont étalés ou ascendants, en général moins rigides que ceux de C. monogyna, et tendent à retomber aux extrémités. Les bourgeons sont ovoïdes à subglobuleux, à sommet arrondi, et mesurent entre 1,1 et 2,1 millimètres de long sur 1,2 à 1,9 millimètre de large, avec des écailles brun foncé.
Feuilles
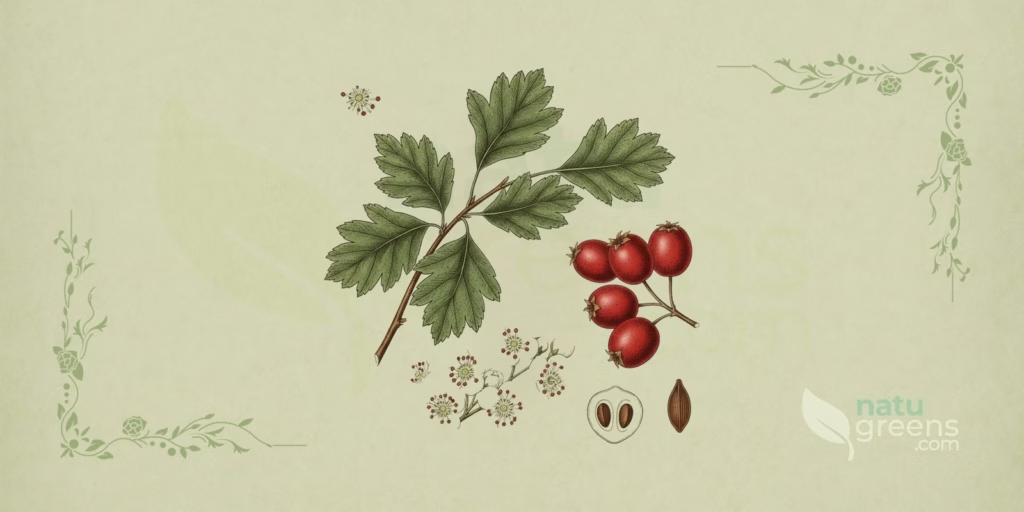
Les feuilles sont alternes, souvent coriaces, vert foncé et brillantes sur la face supérieure, vert pâle en dessous. Elles sont glabres hormis quelques poils épars le long des nervures principales sur les deux faces lorsqu’elles sont jeunes, et se caractérisent par l’absence des touffes de poils à l’aisselle des nervures, communes chez C. monogyna en Grande-Bretagne. Le contour va d’obovale à presque arrondi, avec un à trois paires de lobes obtus et peu profonds qui atteignent rarement la moitié de la distance jusqu’à la nervure médiane. Les lobes sont arrondis de contour et plus larges que longs, à marge crénelée-dentée sauf dans les sinus, et le lobe basal porte de 6 à 15 dents.
La taille varie selon la position sur le rameau, et cette variation a une valeur pratique pour qui récolte du matériel d’herbier. Les feuilles des rameaux longs sont les plus grandes et les plus profondément lobées, et mesurent de 1,9 à 7,2 centimètres sur 1,8 à 5,1 centimètres. Celles des rameaux courts se situent entre 2,0 et 6,0 centimètres sur 1,5 à 3,2 centimètres, et celles des rameaux florifères sont plus petites encore, avec un ou deux paires de lobes, voire aucun. Les nervures principales sont droites ou se courbent vers l’avant en direction du sommet de la feuille, contrairement à ce qui se produit chez C. monogyna, où elles se courbent vers l’arrière. La base est cunéiforme ou arrondie, le sommet acuminé, le pétiole mesure de 6 à 20 millimètres et les stipules sont bien visibles et foliacées sur les rameaux longs.
Fleurs
Les fleurs naissent surtout sur les rameaux courts, réunies en corymbes lâches de 3 à 11 unités, larges de 2,5 à 5,0 centimètres. Les pédicelles mesurent de 6 à 30 millimètres et sont glabres ou rarement villeux, un caractère qui aide à séparer l’espèce de C. monogyna, dont les pédicelles sont pubescents. Chaque fleur est hermaphrodite et mesure de 15 à 18 millimètres de diamètre. Les sépales, au nombre de cinq, sont largement triangulaires, aussi larges que longs, à marge entière et sommet aigu. Les cinq pétales sont blancs ou rose pâle, à papilles striées, et mesurent de 5 à 10 millimètres sur 5 à 9 millimètres. L’hypanthe fait de 3 à 4 millimètres et reste glabre.
Les étamines sont au nombre de 17 à 22, à filets pâles et anthères roses, rarement pourprées. Les styles sont généralement deux, et peuvent varier de un à cinq sur des fleurs isolées, les stigmates étant jaunes. Le nombre de styles constitue le caractère diagnostique le plus fiable du groupe, car il se traduit directement dans le nombre de noyaux du fruit et reste lisible même sur du matériel sec.
Fruits et Graines
Le fruit est une baie fausse subglobuleuse à ellipsoïde, rouge foncé à maturité, de 8 à 10 millimètres de diamètre chez la plupart des sujets et avec une amplitude enregistrée de 6 à 14 millimètres, sur 6 à 12 millimètres de long. Le volume moyen, d’environ 1,60 centimètre cube, dépasse le double de celui mesuré chez C. monogyna, proche de 0,73 centimètre cube. La surface est généralement glabre et dépourvue de protubérances basales, et le sommet porte la couronne de sépales persistants, recourbés ou étalés. La pulpe est jaunâtre, avec une teneur en eau comprise entre 68 et 77 pour cent.
Les noyaux, ou pyrènes, sont en général deux et suivent le nombre de styles de la fleur dont ils proviennent. Ils mesurent environ 5 à 6 millimètres, avec des excavations dorsale et ventro-latérales, et diffèrent subtilement de ceux de C. monogyna par leur extrémité plus obtuse, face au sommet pointu de l’espèce soeur. Chaque fruit renferme en moyenne de 2,1 à 2,8 graines, d’une masse individuelle de 60 à 68 milligrammes, donc plus petites que celles de C. monogyna, qui se situent entre 97 et 130 milligrammes. Les études d’écologie de la dispersion classent les fruits comme non toxiques, sans risque pour les animaux qui les consomment, êtres humains compris.
Écorce et Rameaux
L’écorce est gris brunâtre à brun orangé et se craquelle et se fissure avec l’âge. Les rameaux sont d’un gris brunâtre mat, densément disposés, et se montrent brillants et glabres lorsqu’ils sont jeunes. Les épines sont moins nombreuses et plus courtes que chez C. monogyna, et mesurent de 6 à 15 millimètres, une différence cohérente avec le port forestier de l’espèce, moins exposée à l’abroutissement que les populations de haie.
Répartition et Habitat
L’espèce est indigène d’Europe occidentale et centrale. L’aire naturelle s’étend des îles Britanniques vers l’est jusqu’à la Tchéquie et la Hongrie, avec une présence presque certainement indigène en Roumanie et en Ukraine. Vers le nord, elle atteint le sud de la Suède, la Lettonie et l’Estonie, et vers le sud elle gagne les Pyrénées espagnoles et l’Italie, très probablement Sicile comprise. Les bases taxonomiques signalent en outre sa présence en Allemagne, en Autriche, en Belgique, en Biélorussie, en Corse, au Danemark, en France, en Norvège, aux Pays-Bas, en Pologne, en Russie d’Europe, en Slovaquie et en Suisse. Elle est plus répandue dans la portion centre-septentrionale de cette aire et se raréfie sur les marges, comme en Belgique, tandis qu’elle est absente de Grèce.
Dans les îles Britanniques, la répartition est bien plus restreinte que celle de C. monogyna. L’espèce se concentre dans le sud et l’est de l’Angleterre et progresse naturellement jusqu’aux Midlands, d’où vient son nom vernaculaire anglais. Elle est en grande partie absente comme plante spontanée d’Écosse et du pays de Galles, et les mentions écossaises correspondent presque toujours à des sujets plantés. Son indigénat en Irlande reste discuté: on trouve des sujets âgés dans plusieurs comtés et il existe une part d’herbier de l’hybride datée de 1895, mais l’hypothèse la plus admise attribue sa présence à des plants de pépinière anglaise introduits lors des enclosures parlementaires.
Hors de l’aire naturelle, l’espèce a été portée vers diverses régions tempérées. Elle s’est naturalisée dans les Gulf Islands de l’État de Washington, au Canada et dans l’est des États-Unis, et elle a été introduite en Tasmanie et dans d’autres parties de l’Australie au dix-neuvième siècle pour la formation de haies, où elle est aujourd’hui considérée comme mauvaise herbe nuisible dans plusieurs États. On relève encore des mentions au Japon, en Nouvelle-Zélande, en Tanzanie et en Afrique de l’Ouest, ainsi que dans l’Himalaya tempéré de l’Inde, entre 1 800 et 3 000 mètres d’altitude.
L’habitat typique définit l’espèce autant que sa morphologie. Il s’agit d’une plante de forêt ancienne, tolérante à l’ombre, présente à l’intérieur des futaies mûres, en lisière de bois, dans les vieilles haies et sur les talus de limite, sur sols argileux. Elle préfère les sols de texture lourde, du limon à l’argile, et évite constamment la craie, le calcaire, les sols oolithiques et les argiles à silex, une restriction qui explique sa concentration dans les Midlands anglaises et dans le Weald du sud-est. La valeur indicatrice d’Ellenberg pour le pH en Grande-Bretagne est de 7, compatible avec des conditions faiblement acides à faiblement basiques. En altitude, elle va du niveau de la mer à l’ouest jusqu’à 810 mètres dans les Sudètes polonaises, 956 mètres en Slovénie, 1 281 mètres dans les monts Tatras et 1 560 mètres au Piano Ruggio, en Italie.
Culture
L’espèce est subatlantique et préfère un climat tempéré frais. Les moyennes relevées en Grande-Bretagne s’établissent à 3,5 degrés Celsius pour janvier et 16,2 degrés pour juillet, avec des précipitations annuelles voisines de 674 millimètres, donc dans des milieux légèrement plus chauds et plus secs que ceux qu’occupe C. monogyna. Elle supporte bien les hivers du centre et du nord de l’Europe et ne présente aucune exigence thermique qui la limiterait dans les zones tempérées.
Côté sol, elle pousse sur une large gamme de substrats, siliceux et modérément acides compris, et tolère une variation considérable d’humidité. Dans cette amplitude, toutefois, elle se comporte mieux sur limons et argiles, surtout les lourds. La tolérance à l’ombre est le trait agronomique qui la distingue: elle fleurit sans peine même sous couvert fermé et domine le sous-bois des taillis vieillis, une situation où C. monogyna ne parvient pas à s’installer. Là où la lumière augmente à la faveur d’une perturbation ou d’une coupe, le rapport s’inverse et l’espèce perd du terrain.
Multiplication par Semis
Les graines présentent une dormance double, alliant un tégument dur à une exigence physiologique de froid. Sans traitement préalable, la germination peut ne pas se produire avant 18 mois, voire avant la troisième saison de végétation suivant la production. Le protocole établi lors d’essais polonais consiste en une stratification chaude en milieu humide, avec une température alternant entre 20 et 30 degrés Celsius pendant 16 à 20 semaines, suivie d’une phase froide à 3 degrés pendant 16 à 18 semaines, période au terme de laquelle les radicelles pointent déjà. Ce traitement fait passer la germination de 2 à 4 pour cent à 87 à 94 pour cent, et les plantules lèvent quatre à six semaines après le semis.
La scarification chimique à l’acide sulfurique concentré pendant deux à trois heures, suivie d’une imbibition dans l’eau pendant 24 heures, permet de ramener la phase chaude de 16 à 20 semaines à quatre seulement, avec des taux de germination équivalents. Les graines sont orthodoxes et peuvent être séchées jusqu’à 9 à 13 pour cent d’humidité sans perte de viabilité, et supportent une conservation à moins 3 degrés Celsius pendant 12 mois avec une baisse modeste de la germination. La germination est épigée et la radicule se développe en une racine pivotante à ramifications latérales fines et courtes.
Multiplication Végétative et Santé des Plants
Les cultivars ornementaux se multiplient par greffage, une pratique qui préserve aussi des caractères floraux ne se transmettant pas par semis. L’espèce réagit bien à la coupe et forme de grosses cépées en régime de taillis, ce qui favorise son maintien dans les boisements gérés. Elle a également été évaluée comme porte-greffe nanisant pour le poirier, avec une compatibilité rapportée pour des clones de Pyrus communis et d’autres Maleae.
Le point sensible de la culture est l’état sanitaire. Les aubépines européennes, celle-ci comprise, sont très sensibles au feu bactérien causé par Erwinia amylovora, et les cultivars ‘Paul’s Scarlet’ et ‘Rosea Flore Pleno’ figurent parmi les plus atteints. Les plantations peuvent servir de réservoir d’inoculum pour les pommiers et poiriers voisins, même si le risque associé à C. laevigata reste inférieur à celui de C. monogyna du fait de sa présence plus forestière et plus éloignée des vergers. S’y ajoutent l’oïdium Podosphaera clandestina, les rouilles du genre Gymnosporangium, qui exigent un hôte alternant du genre Juniperus, et la tache foliaire provoquée par Entomosporium thuemenii et Diplocarpon mespili.
Phénologie
La floraison se déroule d’avril à juin et se décale vers la fin de cet intervalle à l’extrême nord de l’aire, en Suède. Dans le sud-est de l’Angleterre, la coïncidence avec le calendrier liturgique a valu à la plante le nom local de rose de Pentecôte. Les séries longues néerlandaises documentent une avance marquée: le début moyen de la floraison est passé du 17 mai, dans la série 1940 à 1968, au 1er mai dans la série 2001 à 2010. Les fleurs s’ouvrent avant que les feuilles ne soient pleinement développées, et plus tôt sur les arbustes que sur les arbres.
L’espèce feuille avant C. monogyna et fleurit quelque 8 à 14 jours avant elle. Cette anticipation ne suffit pas à constituer une barrière reproductive, car le recouvrement des périodes de floraison des deux espèces atteint 40 pour cent, ce qui entretient la formation continue de l’hybride. En conditions contrôlées, des plantes individuelles sont restées fleuries pendant 12 jours, les fleurs isolées durant 8 jours.
Les fleurs sont protogynes. Les anthères des étamines les plus externes libèrent le pollen un ou deux jours après l’ouverture de la fleur, et les filets se courbent vers l’intérieur les jours chauds, une disposition qui rendrait l’autopollinisation mécaniquement possible. L’espèce est pourtant largement auto-incompatible: les essais de croisement ont obtenu une nouaison de 30 à 59 pour cent des fleurs en pollinisation croisée, contre 2 pour cent seulement en autopollinisation. La pollinisation est entomophile, surtout par des hyménoptères et des diptères attirés par le nectar et par l’odeur des fleurs, qui résulte de l’émission de triméthylamine. Le pollen présente une viabilité élevée, de 96 à 98 pour cent.
Les fruits se développent sur environ 106 jours, contre 89 jours chez C. monogyna, et mûrissent entre juin et novembre, avec une maturation tardive dans les populations septentrionales. Un fruit mûr persiste sur la plante pendant quelque 64 jours, et l’arbre conserve des fruits mûrs pendant 82 jours en moyenne, contre 150 jours chez C. monogyna. La dispersion revient principalement aux oiseaux frugivores, au premier rang desquels le merle noir, la grive litorne, la grive mauvis et la grive musicienne, et les graines traversent le tube digestif ou sont régurgitées. Il n’existe pas de banque de graines persistante dans le sol, une particularité qui rend la régénération dépendante d’une pluie de graines récente.
Espèces Apparentées et Confusions
L’identification des Crataegus sur le terrain est reconnue difficile, et le matériel examiné doit comprendre des fruits mûrs et des feuilles de rameaux latéraux courts pour permettre une détermination sûre. Un sujet jugé sur les seules feuilles de pousses vigoureuses conduit aisément à l’erreur.
Distinction de Crataegus monogyna
C’est la confusion centrale du groupe et la raison d’être du rejet du nom C. oxyacantha. Les caractères qui séparent les deux espèces sont les suivants:
- Épines: moins nombreuses et plus courtes chez C. laevigata, de 6 à 15 millimètres, et plus longues et plus fréquentes chez C. monogyna.
- Lobes foliaires: un à trois paires de lobes peu profonds et arrondis, atteignant rarement la moitié de la distance jusqu’à la nervure médiane chez C. laevigata, contre cinq à sept lobes profonds et aigus qui dépassent les deux tiers de cette distance chez C. monogyna.
- Nervures principales: droites ou courbées vers l’avant chez C. laevigata, courbées vers l’arrière chez C. monogyna.
- Noyaux du fruit: C. laevigata compte généralement deux pyrènes, parfois trois; C. monogyna n’en a qu’un, exceptionnellement deux.
- Pédicelles et touffes de poils: pédicelles glabres et aisselles de nervures sans touffes de poils chez C. laevigata, contre pédicelles pubescents et touffes axillaires présentes chez C. monogyna en Grande-Bretagne.
- Styles: généralement deux chez C. laevigata, avec une variation de un à cinq; un seul chez C. monogyna.
- Taille de la fleur: au-dessus de 15 millimètres de diamètre chez C. laevigata, jusqu’à 15 millimètres chez C. monogyna.
Ce qui complique le tableau, c’est que les deux espèces sont interfécondes et produisent l’hybride Crataegus × media Bechst., de morphologie intermédiaire, à un ou deux styles et autant de noyaux. La seule barrière pertinente à l’hybridation tient à la séparation spatiale des habitats, et là où la fragmentation forestière a rapproché les populations, l’hybride est devenu fréquent, dans plusieurs régions britanniques plus commun que C. laevigata elle-même. Un sujet à deux styles n’est donc pas automatiquement C. laevigata, et le diagnostic gagne en fiabilité lorsque plusieurs caractères pointent dans le même sens.
Distinction de Crataegus mexicana
La séparation d’avec le tejocote est immédiate et ne repose pas sur des caractères subtils. L’espèce mexicaine produit des fruits de 1,5 à 3 centimètres de diamètre, jaune doré à orangé à maturité, face aux fruits rouge foncé de 8 à 10 millimètres de l’espèce européenne. Les feuilles de C. mexicana sont rhomboïdales-elliptiques à ovales-lancéolées, à marge dentée et sans lobation marquée, tandis que celles de C. laevigata sont obovales et lobées. L’inflorescence mexicaine réunit 2 à 6 fleurs en ombelle, contre les corymbes de 3 à 11 fleurs de l’européenne. S’y ajoutent la répartition entièrement disjointe, C. mexicana étant confinée aux montagnes du Mexique et du Guatemala, et la persistance d’un feuillage plus coriace chez l’espèce néotropicale.
Autres Espèces et l’Ambiguïté des Noms Communs
Outre C. monogyna, l’espèce s’hybride avec C. rhipidophylla, donnant C. × macrocarpa, et avec C. lindmanii, formant C. × calycina. On signale encore l’hybride intergénérique avec le néflier commun, Mespilus germanica, dénommé × Crataemespilus grandiflora, ainsi que les chimères de greffe connues sous le nom de Crataegomespilus, obtenues en greffant le néflier sur l’aubépine.
Une mise en garde s’impose au sujet de la nomenclature vernaculaire française. La langue possède bien une appellation propre à cette espèce, aubépine à deux styles, mais elle reste confinée aux flores et aux textes savants, tandis que l’usage courant emploie aubépine, épine blanche, épine de mai ou noble épine indifféremment pour les deux espèces européennes du genre. Le nom d’aubépine épineuse, également attaché à C. laevigata, prête lui aussi à confusion, puisque C. monogyna porte des épines plus longues et plus nombreuses. Devant tout texte français qui n’emploie que le nom commun, l’identification de l’espèce passe par la vérification du binôme cité et, si possible, des caractères décrits.
Phytochimie
Cette section décrit la composition chimique documentée pour l’espèce. Il s’agit d’une caractérisation analytique, sans rapport avec des effets chez l’être humain.
La teneur phénolique totale mesurée chez C. laevigata atteint 1 288 milligrammes pour 100 grammes de masse fraîche, avec des acides phénoliques totaux à 964 milligrammes pour 100 grammes, des valeurs proches de celles de C. monogyna et supérieures à celles de sept autres arbustes analysés dans la même étude. Dans les parties florifères d’échantillons européens sauvages, la teneur phénolique totale a varié de 3 à 19 grammes par kilogramme de masse sèche, pour une moyenne de 12 grammes par kilogramme.
La caractérisation par chromatographie couplée à la spectrométrie de masse a identifié 54 composés dans les feuilles et 47 dans les fleurs de l’espèce, contre 38 et 41 chez C. monogyna. Les classes représentées comprennent les acides chlorogéniques et d’autres acides phénoliques, les proanthocyanidines, les glycosides flavonoïdes et les aglycones flavonoïdes. Parmi les flavonoïdes décrits figurent l’apigénine, la catéchine, l’épicatéchine, l’hypéroside, l’isoquercitrine, l’isovitexine, la procyanidine B-2, la quercétine, la rutine et la vitexine. Les proanthocyanidines atteignent 40,6 grammes par kilogramme dans du matériel slovène, et la teneur totale en flavonoïdes des fleurs s’est révélée la plus élevée parmi dix espèces de Crataegus comparées.
La composition présente un intérêt taxonomique. La vitexine et ses dérivés se rencontrent à des concentrations plus élevées dans les feuilles des espèces européennes du genre, tandis que la rutine se concentre nettement chez les nord-américaines. L’absence d’isoorientine, d’orientine, de 8-méthoxykaempférol-3-O-glucoside et de 4 »-acétyl-vitexine-2 »-O-rhamnoside chez C. laevigata a été proposée comme critère chimique auxiliaire pour la séparer de C. monogyna, ce qui confère à la phytochimie un rôle d’appui à la délimitation des espèces.
Parmi les triterpènes, les acides oléanolique et ursolique sont les composants les plus marquants. Les analyses de composés organiques volatils ont détecté les sesquiterpènes caryophyllène et humulène dans les émissions florales, le farnésène et le monoterpène limonène apparaissant après la floraison. Ni alcaloïdes ni saponines véritables n’ont été décelés chez l’espèce, bien que le pseudo-saponoside tormentoside y ait été identifié. Des cristaux d’acide oxalique se rencontrent dans toutes les parties de la plante et représentent 0,065 pour cent de la masse sèche foliaire.
La concentration des métabolites répond aux conditions du milieu. Des plants soumis à dix jours de sécheresse ont montré une élévation de l’épicatéchine et de l’hypéroside avec une baisse de la vitexine et de l’acétylvitexine, tandis qu’un stress au froid à 4 degrés Celsius a fait monter la vitexine, l’épicatéchine, l’hypéroside, la quercétine et l’acétylvitexine. L’espèce accumule en outre des métaux lourds dans les racines et les feuilles lorsqu’elle est cultivée sur un sol contaminé.
Histoire et Ethnobotanique
La séparation évolutive entre C. laevigata et C. monogyna a été datée par analyse de l’ADN chloroplastique à une dizaine de millions d’années, ce qui fait de leur ressemblance morphologique un cas de conservation de la forme sur un intervalle considérable. Le registre fossile, en revanche, ne distingue pas les deux: les macrofossiles de bois et de charbon sont indiscernables, et il en va en règle générale de même pour les graines. Les grains de pollen se séparent statistiquement, puisque ceux de C. laevigata sont majoritairement sphéroïdaux, de 28 à 40 micromètres, à striation de faible relief, contre des grains allongés de 30 à 44 micromètres à relief élevé chez C. monogyna, mais le critère n’a jamais été mis en oeuvre dans la pratique paléobotanique.
L’aubépine est une plante commune des forêts européennes depuis le Mésolithique, et toute période culturelle du Néolithique à l’époque normande a laissé des traces du genre. La plus grande part du matériel préhistorique identifié correspond à C. monogyna, espèce pionnière plus efficace dans un paysage en ouverture, même si la possibilité que C. laevigata ait été sous-estimée par difficulté d’identification demeure ouverte.
Les usages historiques consignés pour le bois et pour la plante sont variés. Le bois, dense et au grain régulier, a servi à confectionner des manches d’outils et des cannes. L’écorce et les racines ont fourni une teinture jaune ou brune, et l’écorce a été employée en tannerie, une pratique documentée à Alger. Les fruits ont été consommés frais et transformés en jus, gelées et eaux-de-vie dans plusieurs régions d’Europe, et on les séchait pour l’hiver; les noyaux torréfiés ont servi de succédané de café. En Italie, l’aubépine a été couramment plantée pour clore les parcelles agricoles, une fonction perdue avec la mécanisation et la nécessité de faire circuler les machines, ce qui a entraîné la disparition presque complète de ces haies.
Dans le domaine de l’ancienne matière médicale, la mention remonte à Dioscoride, au premier siècle, qui a désigné la plante par le nom grec dont sortirait le binôme linnéen rejeté. C’est ce cheminement nomenclatural, et non quelque attribut botanique, qui a fixé Crataegus oxyacantha dans la littérature pharmaceutique européenne pendant si longtemps, raison pour laquelle le binôme continue d’apparaître dans des sources qui décrivent indifféremment l’une ou l’autre des deux espèces européennes.
Conservation
L’espèce est évaluée en Préoccupation Mineure sur la Liste rouge de l’UICN, une catégorie cohérente avec sa large répartition européenne. Elle figure également sur la Liste rouge des plantes vasculaires du Luxembourg, là aussi dans la catégorie de préoccupation mineure, aux côtés de C. monogyna et de C. rhipidophylla.
Ces chiffres masquent toutefois un processus qui mérite attention. La fréquence relevée de C. laevigata en Grande-Bretagne a peu changé depuis 1962, mais une partie de cette stabilité apparente tient à des plantations réalisées dans l’aire indigène et hors de celle-ci, et une autre à la facilité avec laquelle l’espèce est confondue avec l’hybride C. × media, si bien que certaines mentions nouvelles correspondent en réalité à l’hybride. Derrière cette apparence de stabilité, un fort indice de déclin pèse sur les populations génétiquement pures, en premier lieu dans le sud-est de l’Angleterre.
Le mécanisme est bien compris. La perturbation et la fragmentation des boisements ouvrent la voie à C. monogyna, qui pénètre des milieux autrefois occupés par la seule espèce d’ombre, et comme les deux sont pleinement interfécondes, la conséquence est une hybridation suivie d’introgression. L’évaluation la plus pessimiste de la littérature est allée jusqu’à suggérer, dès 1975, que la C. laevigata pure pourrait disparaître complètement à mesure que l’introgression progresserait, et un problème équivalent a été identifié en Belgique et en Pologne. Des populations relativement pures survivent là où les massifs forestiers sont vastes et peu fragmentés, comme dans les grandes forêts du nord-est de la France.
La situation s’inverse aux marges de l’aire. En Bulgarie, à l’extrême sud-est du territoire indigène, l’hybride C. × media est rare au point d’avoir été proposé pour inscription au livre rouge national avec une nécessité de protection légale. L’absence de banque de graines persistante dans le sol ajoute un facteur de fragilité, car le rétablissement d’une population dépend entièrement d’une dispersion récente par les oiseaux.
Curiosités
- La dispersion de l’espèce a été documentée à partir de sources inattendues: des noyaux d’aubépine ont été identifiés dans des fientes de grue, dans des déjections d’ours et d’ongulés, et il existe un récit ancien concernant un faucon pèlerin dont le perchoir accumulait des noyaux venus du jabot des pigeons capturés.
- De Candolle a consigné en 1825 une technique horticole consistant à donner les noyaux de la plante à manger aux dindons, leur passage par le tube digestif des oiseaux avançant la germination d’environ un an par rapport aux graines non traitées.
- L’odeur des fleurs, désagréable pour l’odorat humain, provient de l’émission de triméthylamine, le composé même que l’on associe à l’odeur du poisson en décomposition, et c’est précisément lui qui attire les diptères responsables d’une part de la pollinisation.
- Des essais danois sous serre ont mesuré à quel point l’espèce dépend des pollinisateurs: les plantes visitées par l’abeille découpeuse Megachile rotundata ont produit 269 fruits, contre un seul fruit sur les plantes maintenues sans accès aux insectes.
- Le cultivar ‘Paul’s Scarlet’, à fleurs doubles rouges, est apparu vers 1880 comme mutation de rameau du cultivar ‘Rosea Flore Pleno’ et possède un statut ambigu: en Grande-Bretagne et en Amérique du Nord on l’attribue à C. laevigata, alors qu’en Europe continentale on le traite d’ordinaire comme un cultivar de l’hybride C. × media.
- Un papillon minuscule, Coleophora coracipennella, perfore les boutons floraux pour se nourrir de pollen et est allé jusqu’à stériliser 20 pour cent des fleurs d’une population étudiée dans l’Oxfordshire, avec un effet direct sur la production de fruits de cette année-là.
- Le Glastonbury Thorn, l’aubépine légendaire liée à la tradition anglaise parce qu’elle fleurit deux fois l’an, n’appartient pas à cette espèce: il s’agit du cultivar ‘Biflora’ de C. monogyna, une attribution que les textes de vulgarisation intervertissent fréquemment.
- Le relevé classique de Southwood a comptabilisé 149 espèces d’insectes associées aux aubépines britanniques, un chiffre qui donne la mesure du rôle de ces arbres comme support de faune, même s’il reste bien en deçà des 284 espèces recensées sur les chênes.
Avertissement: ce contenu est informatif et ne remplace pas l’avis d’un professionnel de santé. Consultez un médecin ou un phytothérapeute avant d’utiliser des plantes médicinales, notamment pendant la grossesse, l’allaitement ou en cas de prise de médicaments.
Références et Études Scientifiques
Voir les 16 Références Citées
Études Scientifiques Évaluées par les Pairs (3)
- DOI2021 Thomas, P. A., Leski, T., La Porta, N., Dering, M., Iszkuło, G. Biological Flora of the British Isles: Crataegus laevigata. Journal of Ecology, 109(1), 572-596. 2021. ↗
- DOI2012 Edwards, J. E., Brown, P. N., Talent, N., Dickinson, T. A., Shipley, P. R. A review of the chemistry of the genus Crataegus. Phytochemistry, 79, 5-26. 2012. ↗
- DOI2021 Fichtner, A., Wissemann, V. Biological Flora of the British Isles: Crataegus monogyna. Journal of Ecology, 109, 541-571. 2021. ↗
Lectures Complémentaires (13)
- 1992 Christensen, K. I. Revision of Crataegus sect. Crataegus and nothosect. Crataeguineae (Rosaceae-Maloideae) in the Old World. Systematic Botany Monographs, 35, 1-199. 1992.
- 1974 Byatt, J. I. Application of the names Crataegus calycina Peterm. and C. oxyacantha L. Botanical Journal of the Linnean Society, 69, 15-21. 1974.
- 1975 Byatt, J. I. Hybridization between Crataegus monogyna Jacq. and C. laevigata (Poiret) DC. in south-eastern England. Watsonia, 10, 253-264. 1975.
- 2012 Christensen, K. I., Talent, N. Crataegus laevigata or C. levigata (Rosaceae), a paleographic analysis. Phyton (Horn, Austria), 52(2), 195-201. 2012.
- de Candolle, A. P. Prodromus Systematis Naturalis Regni Vegetabilis, pars 2. Paris. 1825.
- Poiret, J. L. M. Mespilus laevigata. In: Encyclopédie Méthodique, Botanique, 4(2), 439. Paris. 1798.
- 2006 Bujarska-Borkowska, B. Seed dormancy breaking in Crataegus laevigata. Dendrobiology, 56, 3-11. 2006.
- 2015 Karar, M. G. E., Kuhnert, N. UPLC-ESI-Q-TOF-MS/MS characterization of phenolics from Crataegus monogyna and Crataegus laevigata leaves, fruits and their derived drops. Journal of Chemical Biology & Therapeutics, 1, e102. 2015.
- 2012 Lo, E. Y. Y., Donoghue, M. J. Expanded phylogenetic and dating analyses of the apples and their relatives (Pyreae, Rosaceae). Molecular Phylogenetics and Evolution, 63, 230-243. 2012.
- 1991 Eriksson, O., Ehrlén, J. Phenological variation in fruit characteristics in vertebrate-dispersed plants. Oecologia, 86, 463-470. 1991.
- 2014 Sell, P., Murrell, G. Flora of Great Britain and Ireland, vol. 2. Cambridge University Press. 2014.
- International Plant Names Index. Crataegus laevigata (Poir.) DC. Royal Botanic Gardens Kew, Harvard University Herbaria and Australian National Herbarium. Enregistrement 723644-1. ↗
- Plants of the World Online. Crataegus laevigata (Poir.) DC. Royal Botanic Gardens Kew. ↗