Rheum tanguticum è un’erbacea perenne di grande taglia della famiglia Polygonaceae, endemica delle montagne della Cina nordoccidentale e dei margini orientali dell’altopiano Qinghai-Tibet. Forma ampie rosette basali di foglie profondamente incise sopra un rizoma spesso dall’interno arancione e, in estate, innalza un fusto florale cavo capace di superare i due metri, coronato da una pannocchia densa di fiori minuti e rossastri. Alla stessa famiglia appartengono il grano saraceno, le acetose del genere Rumex e il rabarbaro da orto coltivato nei giardini europei.
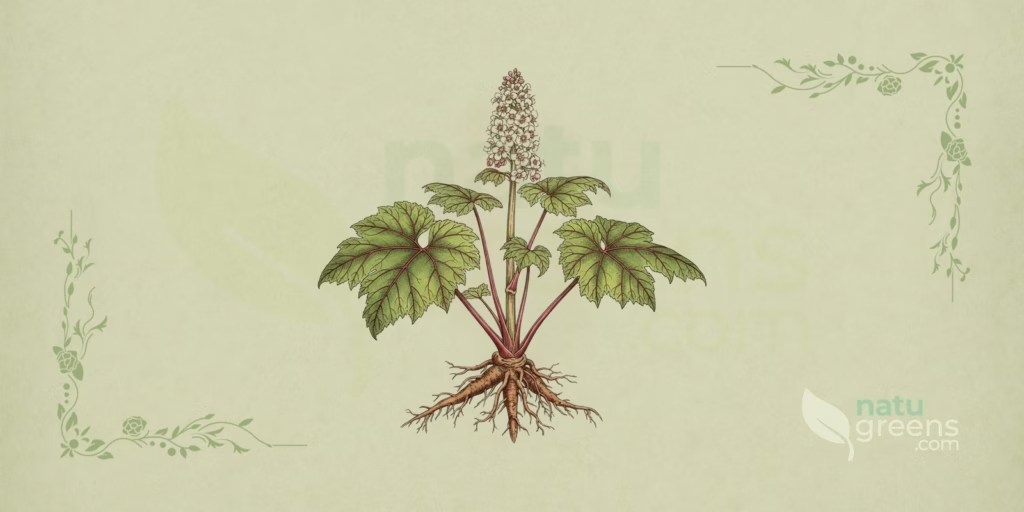
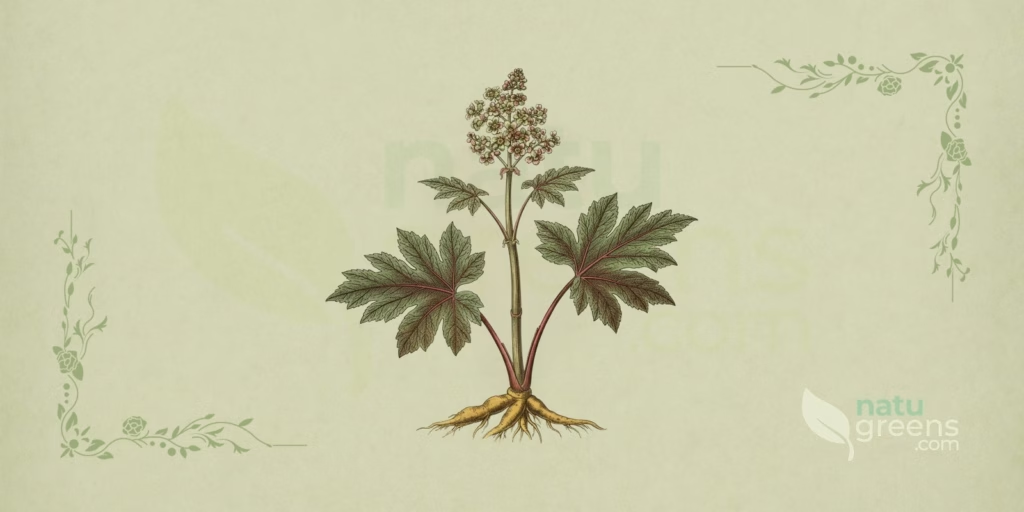
Ciò che distingue la specie all’interno del genere è il taglio delle foglie. Mentre i parenti più prossimi presentano lamine palmate a lobi larghi, qui i tre lobi centrali sono pennatosetti, divisi quasi fino alla nervatura in segmenti stretti e acuti. Questo dettaglio è valso alla pianta il nome cinese 鸡爪大黄 (ji zhua da huang), qualcosa come “da huang zampa di gallina”, ed è anche il carattere su cui poggia il suo riconoscimento come specie autonoma, una discussione che attraversa la letteratura botanica da oltre un secolo senza approdare a un consenso.
Questa scheda raccoglie quanto la letteratura botanica registra sul taxon: posizione tassonomica e sinonimia, morfologia comparata, ecologia d’alta quota, coltivazione, fenologia, distinzione rispetto ai congeneri, composizione chimica descrittiva, storia delle raccolte e situazione di conservazione.
Tassonomia
Il nome accettato è Rheum tanguticum (Maxim. ex Regel) Balf., pubblicato nel 1879 nelle Transactions of the Botanical Society of Edinburgh e registrato nell’IPNI con l’identificativo 696803-1. Il basionimo è Rheum palmatum var. tanguticum Maxim. ex Regel, il che spiega l’autoria composta. L’elevazione al rango di specie operata da Isaac Bayley Balfour non fu mai unanime, e una parte considerevole delle flore successive mantenne il taxon come varietà o sottospecie di Rheum palmatum. La stessa Flora della Cina, pur accettando la specie, annota che uno degli autori del trattamento la considera sinonimo di R. palmatum.
- Regno: Plantae
- Divisione: Tracheophyta
- Classe: Magnoliopsida
- Ordine: Caryophyllales
- Famiglia: Polygonaceae Juss., 1789
- Sottofamiglia: Polygonoideae
- Tribù: Rumiceae (i trattamenti più antichi impiegano Rheeae)
- Genere: Rheum L., 1753
- Specie: Rheum tanguticum (Maxim. ex Regel) Balf., 1879
Sinonimi e Taxa Infraspecifici
I sinonimi accettati rimandano proprio al periodo in cui il taxon circolava come subordinato a R. palmatum:
- Rheum palmatum subsp. tanguticum (Maxim. ex Regel) Stapf, 1930
- Rheum palmatum var. tanguticum Maxim. ex Regel, 1874 (basionimo)
All’interno della specie si riconoscono due varietà, separate dalla taglia e dalla densità dell’indumento:
- Rheum tanguticum var. liupanshanense C. Y. Cheng & T. C. Kao, 1975, da 0,6 a 1 metro, con fusto densamente pubescente e infiorescenza poco ramificata
- Rheum tanguticum var. tanguticum, da 1,5 a 2 metri, con fusto glabro oppure strigoso solo ai nodi superiori e infiorescenza molto ramificata
Etimologia del Binomio
Il nome generico Rheum deriva dal greco antico rha, designazione classica del rizoma essiccato che raggiungeva il Mediterraneo lungo le rotte continentali. Gli autori antichi collegarono la parola al Rha, nome greco del fiume Volga, lungo il quale transitava parte del materiale diretto in occidente, benché l’etimologia resti discussa. L’epiteto tanguticum rende omaggio ai Tangut, popolo di lingua tibeto-birmana che fondò l’impero Xixia e occupò le terre alte del Gansu e del Qinghai, proprio l’area da cui provennero le prime raccolte scientifiche della pianta.
Descrizione Morfologica del Rheum tanguticum
Si tratta di un’erbacea perenne robusta, alta da 0,6 a 2 metri, che trascorre l’inverno ridotta al sistema sotterraneo e riparte in primavera dalle gemme del rizoma. Il portamento è quello di un’ampia rosetta basale da cui si leva un unico fusto florale eretto, cavo e finemente solcato, glabro in alcuni individui e pubescente in altri. L’architettura è quella di una pianta adattata a stagioni vegetative brevi, che concentra in poche settimane la produzione di foglie grandi e di un’infiorescenza voluminosa.
Foglie
Le foglie basali sono il carattere diagnostico della specie. Hanno lamina orbicolare o largamente ovata, di 30-60 centimetri, con cinque nervature principali che partono dalla base subcordata e incisione palmata in cinque lobi. I tre lobi centrali sono pennatosetti, ossia suddivisi quasi fino alla nervatura mediana in segmenti stretti dall’apice strettamente acuto, il che conferisce all’intera foglia un aspetto assai più traforato di quello dei congeneri. La pagina inferiore è pubescente, mentre quella superiore presenta superficie papillosa o muricata, leggermente ruvida al tatto. Il picciolo è robusto e spesso tinto di rosso, soprattutto nelle piante giovani e nelle popolazioni esposte a forte radiazione. Le foglie caulinari sono poche e assai più piccole, anch’esse molto incise, e si accompagnano ad ampie ocree, pubescenti sulla faccia esterna, che abbracciano il fusto nel punto di inserzione.
Fiori
L’infiorescenza è una grande pannocchia terminale a rami convergenti, che si erge al di sopra del fogliame. I singoli fiori sono piccoli e passano inosservati da vicino, ma l’insieme produce un effetto visivo notevole per la sola quantità. Ogni fiore ha sei tepali orbicolari disposti in due verticilli, i tre interni più grandi e lunghi circa 1,5 millimetri. Il colore varia dal rosso porporino al rosa chiaro, di rado verdastro. Il pedicello è sottile, di 2-3 millimetri, articolato sotto la metà. L’ovario è largamente ovoide, con stilo breve e stimma rigonfio.
Frutti e Semi
Il frutto è un achenio trigono avvolto dalle ali membranose che si sviluppano dai pezzi florali persistenti. L’insieme misura 8-9,5 millimetri di lunghezza per 7-7,5 millimetri di larghezza, di contorno oblungo-ovoide o oblungo, con ali larghe 2-2,5 millimetri percorse da nervature longitudinali vicine al margine. La colorazione passa dal verde al bruno rossastro con l’avanzare della maturazione. I semi sono ovoidi e neri, piccoli e leggeri, condizione che favorisce il trasporto a opera del vento.
Radice e Fusto
Il sistema sotterraneo è formato da un rizoma spesso e dalle radici tuberose a esso associate, entrambi di colore giallo o arancione al taglio. Nelle piante mature questa massa sotterranea può superare vari chili e si sviluppa lentamente nel corso degli anni. Una particolarità anatomica contraddistingue la superficie di taglio del rizoma: fasci vascolari anomali disposti a raggiera producono una marezzatura di punti chiari e scuri, nota nella letteratura cinese come jin wen. Il fusto aereo, al contrario, è annuale, cavo ed effimero, e scompare dopo la fruttificazione.
Distribuzione e Habitat
La specie è endemica della Cina, con presenza confermata in Gansu, Qinghai, Shaanxi e Xizang, il che corrisponde al margine orientale dell’altopiano Qinghai-Tibet e alle catene montuose adiacenti, tra cui Min Shan, Qilian Shan e Qionglai Shan. L’areale complessivo di occupazione è ristretto e frammentato, con popolazioni separate da valli e spartiacque, tratto che la distingue da R. palmatum, di distribuzione più ampia.
La Flora della Cina colloca l’habitat in valli comprese tra 1600 e 3000 metri di quota, fascia in cui si concentrano le raccolte d’erbario. I lavori ecologici di campo condotti sull’altopiano documentano popolazioni a quote superiori, associate a praterie alpine, versanti pietrosi e sponde di corsi d’acqua, il che suggerisce un’ampiezza altitudinale maggiore di quella riportata nel trattamento floristico classico. Il clima di queste aree è continentale freddo, con inverni lunghi e rigidi, estati brevi, marcata escursione termica giornaliera e radiazione ultravioletta elevata per via della quota. I suoli preferiti sono profondi, ben drenati e di tessitura sciolta, condizione legata alla necessità di espansione del rizoma.
Nelle comunità in cui compare, la pianta convive con arbusti alpini dei generi Rhododendron e Salix e con praterie dominate da Kobresia. Non risultano naturalizzazioni fuori dall’areale nativo né comportamenti invasivi in alcuna regione. La specie viene coltivata come ornamentale da fogliame nei giardini temperati d’Europa, di norma sotto la designazione orticola di varietà di R. palmatum, senza che si conoscano fughe stabilizzate.
Coltivazione
La propagazione avviene per seme o per divisione del rizoma. I semi germinano meglio dopo un periodo di freddo umido, condizione che in natura è garantita dalla semina spontanea autunnale e dalla permanenza sotto la neve fino alla primavera. La divisione di cespi già affermati, eseguita a fine stagione vegetativa con porzioni che conservino gemme vitali, accorcia il tempo necessario alla maturità e preserva i caratteri della pianta madre, vantaggio rilevante nelle colture destinate a materiale uniforme.
La pianta richiede pieno sole e un terreno profondo, fertile e molto ben drenato, con pH prossimo alla neutralità, e non tollera il ristagno idrico in nessuna fase. La rusticità al freddo è notevole, coerente con l’origine, ma il caldo umido di bassa quota risulta limitante e spiega perché la coltivazione commerciale in Cina si concentri sulle terre alte di Gansu e Qinghai. La crescita è lenta: le piante ottenute da seme impiegano vari anni per raggiungere la taglia di raccolta, e i programmi di coltivazione in quota lavorano su cicli lunghi, di norma dal quarto al settimo anno.
Tra i problemi fitosanitari più citati figurano il marciume del rizoma, causato da funghi opportunisti in suoli mal drenati o saturi d’acqua durante il disgelo, e l’attacco di larve di curculionidi che perforano i tessuti sotterranei. Nelle colture d’alta quota, roditori e lagomorfi, soprattutto i pika del genere Ochotona, danneggiano radici e rizomi. La raccolta si effettua in autunno, quando la parte aerea dissecca, e il materiale viene lavato, sezionato e disidratato con essiccazione lenta al sole o in stufa a temperatura moderata.
Fenologia
La fioritura avviene in giugno e la fruttificazione tra luglio e agosto, calendario compresso che riflette la brevità dell’estate sulle terre alte. Le piante giovani restano vegetative per vari anni prima di emettere il primo scapo, e non tutti gli individui maturi fioriscono in ogni stagione, schema comune tra le perenni alpine che dipendono dalle riserve accumulate nel rizoma.
L’impollinazione nel genere Rheum è prevalentemente entomofila e coinvolge mosche, moscerini fungivori della famiglia Sciaridae e api di piccola taglia, gruppi che dominano la fauna dei visitatori florali alle quote in cui la pianta cresce. I fiori piccoli, riuniti e con tepali colorati si accordano con questo insieme di visitatori generalisti. La disseminazione è anemocora: le ali membranose del frutto agiscono da superficie di resistenza, e i venti forti tipici dell’altopiano trasportano le diaspore su distanze brevi o medie, con il contributo aggiuntivo del ruscellamento superficiale sui versanti e del trasporto su neve compattata. La letteratura di conservazione indica l’efficienza limitata di questa disseminazione come uno dei fattori che mantengono frammentate le popolazioni.
Specie Affini e Confusioni
La separazione da Rheum palmatum è il problema classico e resta ardua persino per gli specialisti. Il criterio più affidabile sta nell’incisione fogliare: in R. tanguticum i lobi centrali sono pennatosetti, suddivisi in segmenti stretti, mentre in R. palmatum i lobi sono larghi, triangolari e appena dentati o superficialmente incisi. Dove le due convivono, le forme intermedie sono frequenti, il che alimenta l’ipotesi di introgressione e concorre a spiegare l’instabilità tassonomica.
Altri congeneri con cui viene confusa o comparata:
- Rheum officinale Baill., di distribuzione più meridionale, con foglie a cinque o sette lobi superficiali e larghi, assai meno incise
- Rheum przewalskyi A. Los., anch’essa dell’altopiano, di taglia decisamente minore e con foglie coriacee segnate da macchie scure caratteristiche
- Rheum rhabarbarum L. e l’ibrido da orto Rheum × hybridum Murray, il rabarbaro da giardino, inconfondibili per le foglie cordate a margine soltanto ondulato, mai lobato, e per i piccioli spessi e rossastri
Fuori dal genere, la confusione più probabile si presenta allo stadio vegetativo, quando la rosetta basale ricorda quella di Arctium lappa L., la bardana maggiore, e quelle delle specie robuste di Rumex. La bardana si distingue per le foglie cordate intere, con pagina inferiore bianco-tomentosa, e le acetose per le foglie minori, con nervatura e ocree differenti. Vale la pena registrare un punto di sicurezza indipendente dall’identificazione: le lamine fogliari delle specie di Rheum accumulano ossalati solubili in concentrazione elevata e sono tossiche per ingestione, tanto per le persone quanto per cani, gatti e cavalli, con quadri che comportano irritazione digestiva e danno renale.
Fitochimica
Il profilo chimico del rizoma e delle radici è dominato dagli antrachinoni e dai loro derivati glicosilati. Tra gli agliconi liberi descritti figurano aloe-emodina, crisofanolo, emodina, fisciona e reina, accompagnati da forme coniugate come crisofanolo 1-O-beta-D-glucoside, crisofanolo 8-O-beta-D-glucoside e fisciona 8-O-beta-D-glucoside. Sono queste molecole a rendere conto del colore giallo arancio che compare non appena il rizoma viene sezionato.
Accanto agli antrachinoni, le analisi per cromatografia accoppiata a spettrometria di massa hanno identificato nel materiale di questa specie diantroni del gruppo dei sennosidi, stilbeni glicosilati derivati dal resveratrolo e dalla rapontigenina, galloilglucosi e altri tannini idrolizzabili, flavani e proantocianidine, fenilbutanoni, naftaleni glicosilati e acidi fenolici semplici. L’insieme documentato per le specie di rabarbaro da farmacopea supera il centinaio di composti distinti.
La distribuzione di questi metaboliti all’interno della pianta è disomogenea. Antrachinoni e tannini si concentrano nel sistema sotterraneo; piccioli e fusti devono la pigmentazione rossa alle antocianine; e le lamine fogliari accumulano preferenzialmente ossalati solubili. Gli studi di metabolomica che confrontano popolazioni lungo gradienti altitudinali registrano una variazione quantitativa marcata nei profili, con tenori di antrachinoni totali che oscillano in modo coerente a seconda della quota di provenienza del materiale.
Storia ed Etnobotanica
Il rizoma essiccato del rabarbaro asiatico circolò lungo le rotte continentali per secoli prima che venisse chiarita l’identità della pianta che lo produceva. Le fonti europee dal XVI al XVIII secolo designavano il materiale in base al tragitto percorso, e di lì nacquero nomi commerciali come rabarbaro di Turchia e rabarbaro di Moscovia. I trattati cinesi antichi, tra cui lo Shennong Bencao Jing, registravano già il materiale sotto il nome da huang, e le farmacopee imperiali successive ne mantennero la nomenclatura.
Il monopolio russo sul commercio, gestito dall’emporio di Kjachta lungo tutto il XVIII secolo, mantenne l’origine botanica come segreto commerciale deliberato. I fornitori consegnavano rizomi già puliti e sezionati, privi di foglie, fiori o qualsiasi struttura che permettesse l’identificazione, e i botanici europei trascorsero generazioni a formulare ipotesi a partire da frammenti secchi. Specie di più facile coltivazione in Europa e in Siberia, tra cui Rheum rhaponticum L. e Rheum rhabarbarum L., furono via via indicate come candidate all’origine del materiale asiatico, attribuzioni che si rivelarono errate.
La questione si risolse soltanto quando le spedizioni russe verso l’interno dell’Asia raggiunsero le popolazioni selvatiche. Nikolaj Prževal’skij, tra il 1870 e il 1873, e Grigorij Potanin, nel decennio successivo, raccolsero materiale fertile sull’altopiano tibetano orientale e consentirono di stabilire l’identità su basi botaniche. Eduard Regel descrisse il taxon nel 1874 come varietà di R. palmatum a partire da quel materiale, e Balfour lo elevò a specie cinque anni dopo. I Tangut onorati nell’epiteto abitavano la regione delle raccolte, e il nome cinese corrente, ji zhua da huang, conserva la lettura popolare della forma della foglia.
Conservazione
A oggi non esiste una valutazione globale pubblicata per la specie nella Lista Rossa IUCN, situazione che la mantiene formalmente come non valutata. La letteratura di conservazione cinese e i lavori di genetica delle popolazioni trattano però il taxon come minacciato in modo ricorrente, e la categoria Vulnerabile compare di frequente in quelle fonti, sostenuta da valutazioni nazionali e regionali. La specie non figura nemmeno negli allegati CITES, sicché il commercio internazionale non passa per quello strumento di controllo.
Le pressioni documentate si sommano in modo sfavorevole. La distribuzione è naturalmente ristretta e frammentata; il ciclo vitale è lungo e il tasso riproduttivo basso; la disseminazione anemocora copre distanze modeste e ostacola la ricolonizzazione delle aree svuotate. Su questo quadro incide la raccolta di piante selvatiche, storicamente intensa per via della domanda di mercato, che sottrae proprio gli individui maturi dal rizoma più grosso. Il pascolo di yak e ovini nelle praterie alpine degrada l’habitat, e il riscaldamento accelerato dell’altopiano Qinghai-Tibet, più rapido della media globale, tende a comprimere verso quote superiori la fascia climaticamente idonea, riducendo l’area disponibile.
Le risposte in corso passano per la coltivazione in quota secondo protocolli standardizzati di buone pratiche agricole, promossa da programmi governativi cinesi in sostituzione della raccolta spontanea, e per studi di modellizzazione della distribuzione volti a orientare la pianificazione delle aree di conservazione. I lavori sulla diversità genetica pubblicati a partire da marcatori molecolari indicano una variazione rilevante tra popolazioni, risultato che rafforza la necessità di conservare più nuclei e non un pugno di località.
Curiosità
- Il nome cinese della specie, ji zhua da huang, significa alla lettera “da huang zampa di gallina”, riferimento diretto ai lobi fogliari stretti e divergenti che richiamano le dita di un uccello.
- La superficie di taglio del rizoma mostra una marezzatura di punti disposti a raggiera, esito di fasci vascolari anomali e non di un qualche processo di lavorazione, carattere che funge da criterio anatomico per identificare il materiale essiccato.
- Nel corso del XVIII secolo il rizoma essiccato rientrò tra le merci più costose per unità di peso importate in Europa dall’Asia, e il segreto sulla sua origine botanica faceva parte del valore commerciale.
- La spedizione di Prževal’skij chiuse una disputa scientifica lunga più di due secoli portando le prime piante fertili osservate da europei in habitat naturale, e risolvendo in un colpo solo la questione di quale specie producesse il rabarbaro asiatico.
- Il genere Rheum comprende una delle piante alpine più singolari al mondo, Rheum nobile Hook. f. & Thomson, dell’Himalaya, le cui brattee traslucide sovrapposte formano una struttura che funziona da serra in miniatura e riscalda i fiori racchiusi all’interno.
Avviso: questo contenuto è informativo e non sostituisce il parere di un professionista sanitario. Consultare un medico o un fitoterapeuta prima di usare piante medicinali, soprattutto in gravidanza, durante l’allattamento o in caso di assunzione di farmaci.
Riferimenti e Studi Scientifici
Vedi Tutti i 12 Riferimenti Citati
- Balfour, I. B. Protologo di Rheum tanguticum. Transactions of the Botanical Society of Edinburgh, 13 (Appendice): cxlvi. 1879.
- 2020 Chinese Pharmacopoeia Commission. Pharmacopoeia of the People’s Republic of China. China Medical Science Press, Pechino. 2020.
- 1992 Foust, C. M. Rhubarb: The Wondrous Drug. Princeton University Press, Princeton. 1992.
- 2012 Hu, Y. et al. Genetic variation in Rheum palmatum and Rheum tanguticum (Polygonaceae), two medicinally and endemic species in China, using ISSR markers. PLOS ONE, 7 (12): e51667. 2012.
- 2026 IPNI. International Plant Names Index. Royal Botanic Gardens Kew, Harvard University Herbaria e Australian National Botanic Gardens. Registrazione urn:lsid:ipni.org:names:696803-1. Consultato nel 2026.
- 2026 IUCN. The IUCN Red List of Threatened Species. Unione Internazionale per la Conservazione della Natura. Consultato nel 2026.
- 2003 Li, A. J. et al. Polygonaceae. In: Wu, Z. Y.; Raven, P. H.; Hong, D. Y. (a cura di). Flora of China, vol. 5, p. 345. Science Press, Pechino, e Missouri Botanical Garden Press, Saint Louis. 2003.
- 2026 POWO. Plants of the World Online. Royal Botanic Gardens Kew. Consultato nel 2026.
- 2017 Qin, H. N. et al. Threatened species list of China’s higher plants. Biodiversity Science, 25 (7): 696-744. 2017.
- Regel, E. Protologo di Rheum palmatum var. tanguticum. Gartenflora, 23: 305. 1874.
- 2011 Sanchez, A.; Schuster, T. M.; Kron, K. A. Taxonomy of Polygonoideae (Polygonaceae): a new tribal classification. Taxon, 60 (1). 2011.
- Stapf, O. Protologo di Rheum palmatum subsp. tanguticum. Curtis’s Botanical Magazine, 153: t. 9200. 1930.