Rheum tanguticum est une grande herbacée vivace de la famille des Polygonaceae, endémique des montagnes du nord-ouest de la Chine et des marges orientales du plateau Qinghai-Tibet. Elle forme de larges rosettes basales de feuilles profondément découpées au-dessus d’un rhizome épais à l’intérieur orangé et, en été, elle dresse une tige florale creuse capable de dépasser deux mètres, couronnée d’une panicule dense de petites fleurs rougeâtres. La même famille abrite le sarrasin, les oseilles du genre Rumex et la rhubarbe potagère cultivée dans les jardins européens.
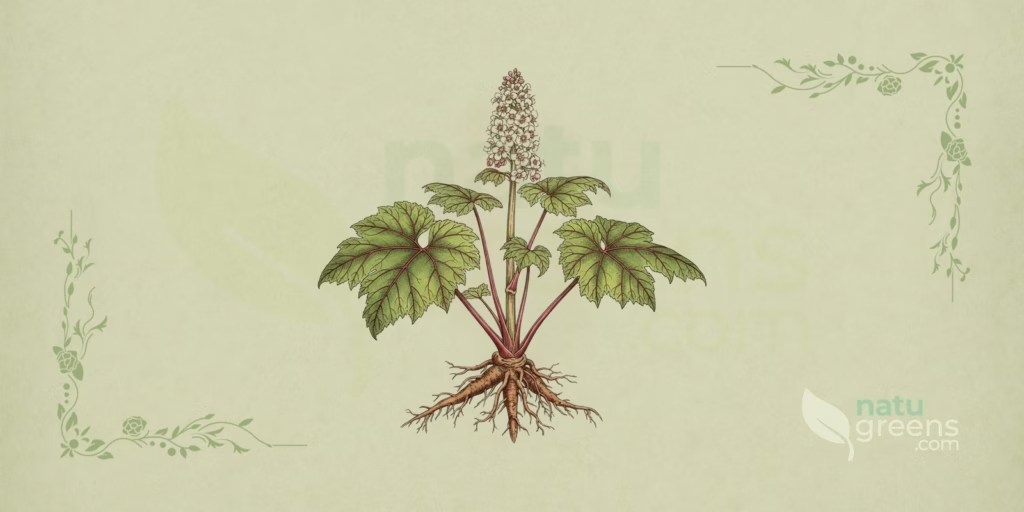
Ce qui distingue l’espèce au sein du genre tient au découpage de ses feuilles. Là où ses parents les plus proches portent des limbes palmés à lobes larges, les trois lobes centraux sont ici pennatiséqués, divisés presque jusqu’à la nervure en segments étroits et aigus. Ce détail lui a valu son nom chinois 鸡爪大黄 (ji zhua da huang), soit à peu près « da huang patte de poule », et c’est également le caractère qui fonde sa reconnaissance comme espèce autonome, une discussion qui traverse la littérature botanique depuis plus d’un siècle sans jamais aboutir à un consensus.
Cette fiche rassemble ce que la littérature botanique consigne sur le taxon : position taxinomique et synonymie, morphologie comparée, écologie d’altitude, culture, phénologie, distinction d’avec les congénères, composition chimique descriptive, histoire des récoltes et situation de conservation.
Taxonomie
Le nom accepté est Rheum tanguticum (Maxim. ex Regel) Balf., publié en 1879 dans les Transactions of the Botanical Society of Edinburgh et enregistré à l’IPNI sous l’identifiant 696803-1. Le basionyme est Rheum palmatum var. tanguticum Maxim. ex Regel, ce qui explique l’autorité composée. L’élévation au rang d’espèce par Isaac Bayley Balfour n’a jamais fait l’unanimité, et une part considérable des flores postérieures a maintenu le taxon comme variété ou sous-espèce de Rheum palmatum. La Flore de Chine elle-même, tout en acceptant l’espèce, signale en note que l’un des auteurs du traitement la tient pour un synonyme de R. palmatum.
- Règne : Plantae
- Division : Tracheophyta
- Classe : Magnoliopsida
- Ordre : Caryophyllales
- Famille : Polygonaceae Juss., 1789
- Sous-famille : Polygonoideae
- Tribu : Rumiceae (les traitements plus anciens emploient Rheeae)
- Genre : Rheum L., 1753
- Espèce : Rheum tanguticum (Maxim. ex Regel) Balf., 1879
Synonymes et Taxons Infraspécifiques
Les synonymes acceptés renvoient précisément à la période où le taxon circulait comme subordonné à R. palmatum :
- Rheum palmatum subsp. tanguticum (Maxim. ex Regel) Stapf, 1930
- Rheum palmatum var. tanguticum Maxim. ex Regel, 1874 (basionyme)
Deux variétés sont reconnues au sein de l’espèce, séparées par le port et par la densité de l’indument :
- Rheum tanguticum var. liupanshanense C. Y. Cheng & T. C. Kao, 1975, de 0,6 à 1 mètre, à tige densément pubescente et à inflorescence peu ramifiée
- Rheum tanguticum var. tanguticum, de 1,5 à 2 mètres, à tige glabre ou strigueuse aux seuls nœuds supérieurs et à inflorescence très ramifiée
Étymologie du Binôme
Le nom générique Rheum vient du grec ancien rha, désignation classique du rhizome séché qui parvenait en Méditerranée par les routes continentales. Les auteurs anciens ont rattaché le mot au Rha, nom grec de la Volga, par laquelle transitait une partie du matériel en direction de l’occident, même si l’étymologie reste discutée. L’épithète tanguticum rend hommage aux Tangoutes, peuple de langue tibéto-birmane qui fonda l’empire Xixia et occupa les hautes terres du Gansu et du Qinghai, précisément la zone d’où provinrent les premières récoltes scientifiques de la plante.
Description Morphologique
Il s’agit d’une herbacée vivace robuste, de 0,6 à 2 mètres de hauteur, qui passe l’hiver réduite à son système souterrain et repart au printemps depuis les bourgeons du rhizome. Le port est celui d’une large rosette basale d’où s’élance une unique tige florale dressée, creuse et finement sillonnée, glabre chez certains individus et pubescente chez d’autres. L’architecture est celle d’une plante adaptée aux saisons de croissance brèves, qui concentre en quelques semaines la production de grandes feuilles et d’une inflorescence volumineuse.
Feuilles
Les feuilles basales constituent le caractère diagnostique de l’espèce. Le limbe est orbiculaire à largement ové, de 30 à 60 centimètres, avec cinq nervures principales partant de la base subcordée et un découpage palmé en cinq lobes. Les trois lobes centraux sont pennatiséqués, c’est-à-dire subdivisés presque jusqu’à la nervure médiane en segments étroits à apex étroitement aigu, ce qui donne à la feuille entière un aspect bien plus dentelé que chez les congénères. La face inférieure est pubescente et la face supérieure présente une surface papilleuse à muriquée, légèrement rugueuse au toucher. Le pétiole est robuste et souvent teinté de rouge, surtout chez les jeunes plantes et dans les populations exposées à un fort rayonnement. Les feuilles caulinaires sont peu nombreuses et nettement plus petites, elles aussi très découpées, et s’accompagnent d’ochréas amples, pubescentes sur la face externe, qui embrassent la tige à l’insertion.
Fleurs
L’inflorescence est une grande panicule terminale aux rameaux convergents, qui se dresse au-dessus du feuillage. Les fleurs individuelles sont petites et passent inaperçues de près, mais l’ensemble produit un effet visuel considérable par le nombre. Chaque fleur compte six tépales orbiculaires disposés en deux verticilles, les trois internes plus grands et mesurant environ 1,5 millimètre. La couleur va du rouge pourpre au rose pâle, rarement verdâtre. Le pédicelle est grêle, de 2 à 3 millimètres, articulé sous le milieu. L’ovaire est largement ovoïde, à style court et stigmate renflé.
Fruits et Graines
Le fruit est un akène trigone enveloppé par les ailes membraneuses issues des pièces florales persistantes. L’ensemble mesure de 8 à 9,5 millimètres de long sur 7 à 7,5 millimètres de large, de contour oblong-ovoïde à oblong, avec des ailes de 2 à 2,5 millimètres de large parcourues de nervures longitudinales proches de la marge. La coloration passe du vert au brun rougeâtre à mesure que la maturation avance. Les graines sont ovoïdes et noires, petites et légères, ce qui favorise le transport par le vent.
Racine et Tige
Le système souterrain se compose d’un rhizome épais et des racines tubéreuses qui lui sont associées, les uns et les autres de couleur jaune à orangée à la coupe. Chez les plantes matures, cette masse souterraine peut dépasser plusieurs kilos et se développe lentement au fil des années. Une particularité anatomique marque la surface de coupe du rhizome : des faisceaux vasculaires anormaux disposés en éventail rayonnant produisent un marbrage de points clairs et sombres, connu dans la littérature chinoise sous le nom de jin wen. La tige aérienne, au contraire, est annuelle, creuse et éphémère, et disparaît après la fructification.
Répartition et Habitat
L’espèce est endémique de Chine, avec une présence confirmée au Gansu, au Qinghai, au Shaanxi et au Xizang, ce qui correspond à la bordure orientale du plateau Qinghai-Tibet et aux chaînes montagneuses adjacentes, parmi lesquelles le Min Shan, le Qilian Shan et le Qionglai Shan. L’aire totale d’occupation est restreinte et fragmentée, les populations étant séparées par des vallées et des lignes de partage des eaux, un trait qui la distingue de R. palmatum, de répartition plus large.
La Flore de Chine situe l’habitat dans des vallées comprises entre 1600 et 3000 mètres d’altitude, tranche où se concentrent les récoltes d’herbier. Les travaux écologiques de terrain menés sur le plateau documentent des populations à des cotes supérieures, associées à des prairies alpines, à des versants pierreux et à des berges de cours d’eau, ce qui suggère une amplitude altitudinale plus grande que celle retenue par le traitement floristique classique. Le climat de ces secteurs est continental froid, avec des hivers longs et rigoureux, des étés courts, une amplitude thermique journalière marquée et un rayonnement ultraviolet élevé du fait de l’altitude. Les sols recherchés sont profonds, bien drainés et de texture meuble, exigence liée au besoin d’expansion du rhizome.
Dans les communautés où elle apparaît, la plante côtoie des arbustes alpins des genres Rhododendron et Salix ainsi que des prairies dominées par Kobresia. Aucune naturalisation hors de l’aire native n’est signalée, non plus qu’un comportement envahissant dans quelque région que ce soit. L’espèce est cultivée comme ornementale à feuillage dans les jardins tempérés d’Europe, généralement sous l’appellation horticole de variété de R. palmatum, sans qu’on lui connaisse d’échappées établies.
Culture
La multiplication se fait par semis ou par division du rhizome. Les graines germent mieux après une période de froid humide, condition assurée dans la nature par le semis naturel d’automne et par les mois passés sous la neige jusqu’au printemps. La division de touffes établies, réalisée en fin de saison de croissance avec des fragments conservant des bourgeons viables, raccourcit le délai jusqu’à la maturité et préserve les caractères du pied donneur, avantage appréciable lorsqu’on recherche du matériel homogène.
La plante exige le plein soleil et un sol profond, fertile et très bien drainé, au pH proche de la neutralité, et ne tolère l’engorgement à aucun stade. La rusticité au froid est remarquable, cohérente avec l’origine, mais la chaleur humide de basse altitude devient limitante et explique pourquoi la culture commerciale en Chine se concentre sur les hautes terres du Gansu et du Qinghai. La croissance est lente : les plants issus de semis mettent plusieurs années à atteindre la taille de récolte, et les programmes de culture en altitude travaillent sur des cycles longs, généralement de la quatrième à la septième année.
Parmi les problèmes phytosanitaires les plus cités figurent la pourriture du rhizome, causée par des champignons opportunistes dans les sols mal drainés ou gorgés d’eau au moment du dégel, et l’attaque de larves de charançons qui perforent les tissus souterrains. En culture d’altitude, rongeurs et lagomorphes, surtout les pikas du genre Ochotona, endommagent racines et rhizomes. La récolte a lieu en automne, quand la partie aérienne se dessèche, et le matériel est lavé, sectionné puis déshydraté par séchage lent au soleil ou en étuve à température modérée.
Phénologie
La floraison a lieu en juin et la fructification entre juillet et août, calendrier resserré qui reflète la brièveté de l’été sur les hautes terres. Les jeunes plantes demeurent végétatives pendant plusieurs années avant d’émettre leur première hampe, et tous les individus matures ne fleurissent pas chaque saison, schéma courant chez les vivaces alpines qui dépendent des réserves accumulées dans le rhizome.
La pollinisation dans le genre Rheum est essentiellement entomophile et fait intervenir des mouches, des sciarides de la famille des Sciaridae et de petites abeilles, groupes qui dominent la faune des visiteurs floraux aux altitudes où croît la plante. Les fleurs petites, groupées et à tépales colorés s’accordent avec cet ensemble de visiteurs généralistes. La dissémination est anémochore : les ailes membraneuses du fruit font office de surface de traînée, et les vents forts caractéristiques du plateau emportent les diaspores sur de courtes à moyennes distances, avec l’apport supplémentaire du ruissellement de surface sur les versants et du transport sur neige tassée. La littérature de conservation pointe l’efficacité limitée de cette dissémination comme l’un des facteurs qui maintiennent les populations fragmentées.
Espèces Apparentées et Confusions
La séparation d’avec Rheum palmatum est le problème classique et reste délicate, y compris pour les spécialistes. Le critère le plus fiable réside dans le découpage foliaire : chez R. tanguticum, les lobes centraux sont pennatiséqués, subdivisés en segments étroits, tandis que chez R. palmatum ils sont larges, triangulaires et simplement dentés ou faiblement incisés. Là où les deux cohabitent, les formes intermédiaires sont fréquentes, ce qui alimente l’hypothèse d’introgression et contribue à expliquer l’instabilité taxinomique.
Autres congénères avec lesquels elle est confondue ou comparée :
- Rheum officinale Baill., de répartition plus méridionale, aux feuilles à cinq ou sept lobes peu profonds et larges, bien moins découpées
- Rheum przewalskyi A. Los., également du plateau, de port nettement plus modeste et à feuilles coriaces marquées de taches sombres caractéristiques
- Rheum rhabarbarum L. et l’hybride potager Rheum × hybridum Murray, la rhubarbe de jardin, reconnaissables entre toutes à leurs feuilles cordées à marge seulement ondulée, jamais lobée, et à leurs pétioles épais et rougeâtres
Hors du genre, la confusion la plus probable survient au stade végétatif, quand la rosette basale rappelle celle d’Arctium lappa L., la grande bardane, et celles des espèces robustes de Rumex. La bardane s’en sépare par ses feuilles cordées entières à face inférieure blanche-tomenteuse, et les oseilles par leurs feuilles plus petites, à nervation et ochréas distinctes. Un point de sécurité mérite d’être consigné indépendamment de l’identification : les limbes foliaires des espèces de Rheum accumulent des oxalates solubles en concentration élevée et sont toxiques par ingestion, aussi bien pour les personnes que pour les chiens, les chats et les chevaux, avec des tableaux associant irritation digestive et atteinte rénale.
Phytochimie du Rheum tanguticum
Le profil chimique du rhizome et des racines est dominé par les anthraquinones et leurs dérivés glycosylés. Parmi les aglycones libres décrites figurent l’aloé-émodine, le chrysophanol, l’émodine, la physcione et la rhéine, accompagnées de formes conjuguées telles que le chrysophanol 1-O-bêta-D-glucoside, le chrysophanol 8-O-bêta-D-glucoside et la physcione 8-O-bêta-D-glucoside. Ces molécules sont responsables de la couleur jaune orangé qui apparaît dès que le rhizome est sectionné.
À côté des anthraquinones, les analyses par chromatographie couplée à la spectrométrie de masse ont identifié dans le matériel de cette espèce des dianthrones du groupe des sennosides, des stilbènes glycosylés dérivés du resvératrol et de la rhapontigénine, des galloylglucoses et d’autres tanins hydrolysables, des flavanes et des proanthocyanidines, des phénylbutanones, des naphtalènes glycosylés et des acides phénoliques simples. L’ensemble documenté pour les espèces de rhubarbe de pharmacopée dépasse la centaine de composés distincts.
La répartition de ces métabolites dans la plante est inégale. Les anthraquinones et les tanins se concentrent dans le système souterrain ; les pétioles et les tiges doivent leur pigmentation rouge aux anthocyanes ; et les limbes foliaires accumulent préférentiellement des oxalates solubles. Les études de métabolomique comparant des populations le long de gradients altitudinaux enregistrent une variation quantitative marquée des profils, avec des teneurs en anthraquinones totales qui fluctuent de façon cohérente selon la cote d’origine du matériel.
Histoire et Ethnobotanique
Le rhizome séché de la rhubarbe asiatique a circulé par les routes continentales pendant des siècles avant que l’identité de la plante qui le produisait ne soit élucidée. Les sources européennes des XVIe au XVIIIe siècle désignaient le matériel d’après le trajet parcouru, d’où sont venus des noms commerciaux comme rhubarbe de Turquie et rhubarbe de Moscovie. Les traités chinois anciens, parmi lesquels le Shennong Bencao Jing, consignaient déjà le matériel sous le nom de da huang, et les pharmacopées impériales postérieures ont conservé cette nomenclature.
Le monopole russe sur ce commerce, conduit depuis le comptoir de Kiakhta tout au long du XVIIIe siècle, a maintenu l’origine botanique au rang de secret commercial délibéré. Les fournisseurs livraient des rhizomes déjà nettoyés et sectionnés, sans feuilles, sans fleurs ni la moindre structure permettant l’identification, et les botanistes européens ont passé des générations à formuler des hypothèses à partir de fragments secs. Des espèces plus faciles à cultiver en Europe et en Sibérie, parmi lesquelles Rheum rhaponticum L. et Rheum rhabarbarum L., ont été successivement avancées comme candidates à l’origine du matériel asiatique, attributions qui se sont révélées erronées.
La question ne fut tranchée que lorsque les expéditions russes vers l’intérieur de l’Asie atteignirent les populations sauvages. Nikolaï Prjevalski, entre 1870 et 1873, puis Grigori Potanine, la décennie suivante, récoltèrent du matériel fertile sur le plateau tibétain oriental et permirent d’établir l’identité sur des bases botaniques. Eduard Regel décrivit le taxon en 1874 comme variété de R. palmatum à partir de ce matériel, et Balfour l’éleva au rang d’espèce cinq ans plus tard. Les Tangoutes honorés par l’épithète habitaient la région des récoltes, et le nom chinois courant, ji zhua da huang, consigne la lecture populaire de la forme de la feuille.
Conservation
À ce jour, aucune évaluation mondiale n’a été publiée pour l’espèce sur la Liste rouge de l’UICN, situation qui la maintient formellement comme non évaluée. La littérature de conservation chinoise et les travaux de génétique des populations traitent pourtant le taxon comme menacé de manière récurrente, et la catégorie Vulnérable revient fréquemment dans ces sources, appuyée sur des évaluations nationales et régionales. L’espèce ne figure pas davantage aux annexes de la CITES, de sorte que le commerce international n’est pas soumis à cet instrument de contrôle.
Les pressions documentées s’additionnent de façon défavorable. La répartition est naturellement restreinte et fragmentée ; le cycle de vie est long et le taux de reproduction faible ; la dissémination par le vent couvre des distances modestes et rend malaisée la recolonisation des secteurs vidés. À ce tableau s’ajoute la récolte de plantes sauvages, historiquement intense en raison de la demande du marché, qui prélève justement les individus mûrs aux plus gros rhizomes. Le pâturage des yaks et des ovins dans les prairies alpines dégrade l’habitat, et le réchauffement accéléré du plateau Qinghai-Tibet, plus rapide que la moyenne mondiale, tend à comprimer vers les cotes supérieures la tranche climatiquement favorable, réduisant d’autant la surface disponible.
Les réponses engagées passent par la culture en altitude sous protocoles normalisés de bonnes pratiques agricoles, encouragée par des programmes gouvernementaux chinois en remplacement de la cueillette sauvage, et par des études de modélisation de la répartition destinées à orienter la planification des aires de conservation. Les travaux de diversité génétique publiés à partir de marqueurs moléculaires indiquent une variation notable entre populations, résultat qui renforce la nécessité de conserver plusieurs noyaux et non une poignée de localités.
Curiosités
- Le nom chinois de l’espèce, ji zhua da huang, signifie littéralement « da huang patte de poule », référence directe aux lobes foliaires étroits et divergents qui évoquent les doigts d’un oiseau.
- La surface de coupe du rhizome présente un marbrage de points rayonnants, résultat de faisceaux vasculaires anormaux et non d’un quelconque procédé de préparation, caractère qui sert de critère anatomique pour identifier le matériel séché.
- Au XVIIIe siècle, le rhizome séché comptait parmi les marchandises les plus chères au poids que l’Europe importait d’Asie, et le secret entourant son origine botanique faisait partie de sa valeur marchande.
- L’expédition de Prjevalski a clos une controverse scientifique de plus de deux siècles en rapportant les premières plantes fertiles observées par des Européens en habitat naturel, réglant d’un coup la question de l’espèce qui produisait la rhubarbe asiatique.
- Le genre Rheum compte l’une des plantes alpines les plus singulières au monde, Rheum nobile Hook. f. & Thomson, de l’Himalaya, dont les bractées translucides empilées forment une structure qui fonctionne comme une serre miniature et réchauffe les fleurs qu’elle abrite.
Avertissement: ce contenu est informatif et ne remplace pas l’avis d’un professionnel de santé. Consultez un médecin ou un phytothérapeute avant d’utiliser des plantes médicinales, notamment pendant la grossesse, l’allaitement ou en cas de prise de médicaments.
Références et Études Scientifiques
Voir les 12 Références Citées
- Balfour, I. B. Protologue de Rheum tanguticum. Transactions of the Botanical Society of Edinburgh, 13 (Annexe) : cxlvi. 1879.
- 2020 Chinese Pharmacopoeia Commission. Pharmacopoeia of the People’s Republic of China. China Medical Science Press, Pékin. 2020.
- 1992 Foust, C. M. Rhubarb: The Wondrous Drug. Princeton University Press, Princeton. 1992.
- 2012 Hu, Y. et al. Genetic variation in Rheum palmatum and Rheum tanguticum (Polygonaceae), two medicinally and endemic species in China, using ISSR markers. PLOS ONE, 7 (12) : e51667. 2012.
- 2026 IPNI. International Plant Names Index. Royal Botanic Gardens Kew, Harvard University Herbaria et Australian National Botanic Gardens. Enregistrement urn:lsid:ipni.org:names:696803-1. Consulté en 2026.
- 2026 IUCN. The IUCN Red List of Threatened Species. Union internationale pour la conservation de la nature. Consulté en 2026.
- 2003 Li, A. J. et al. Polygonaceae. Dans : Wu, Z. Y.; Raven, P. H.; Hong, D. Y. (dir.). Flora of China, vol. 5, p. 345. Science Press, Pékin, et Missouri Botanical Garden Press, Saint Louis. 2003.
- 2026 POWO. Plants of the World Online. Royal Botanic Gardens Kew. Consulté en 2026.
- 2017 Qin, H. N. et al. Threatened species list of China’s higher plants. Biodiversity Science, 25 (7) : 696 à 744. 2017.
- Regel, E. Protologue de Rheum palmatum var. tanguticum. Gartenflora, 23 : 305. 1874.
- 2011 Sanchez, A.; Schuster, T. M.; Kron, K. A. Taxonomy of Polygonoideae (Polygonaceae): a new tribal classification. Taxon, 60 (1). 2011.
- Stapf, O. Protologue de Rheum palmatum subsp. tanguticum. Curtis’s Botanical Magazine, 153 : t. 9200. 1930.