Il Crataegus laevigata è il biancospino dei boschi antichi dell’Europa occidentale e centrale, un piccolo albero che occupa l’interno ombroso delle fustaie mature mentre il congenere più noto domina le siepi e i margini aperti. Appartiene alle Rosaceae, la famiglia che riunisce il melo, il pero, la rosa e la fragola, e vi si colloca nella tribù delle Maleae, il gruppo dei frutti pomacei. In Gran Bretagna, dove è stato oggetto di uno degli studi ecologici più dettagliati mai dedicati a una specie legnosa europea, funziona da pianta indicatrice di bosco antico, una condizione che consente di leggere la storia di una foresta a partire da ciò che vi cresce.
Poche piante europee si portano dietro una vicenda nomenclaturale tanto ingarbugliata. Per oltre due secoli questa specie e il Crataegus monogyna sono stati considerati una cosa sola, sotto il nome di Crataegus oxyacantha, un binomio poi respinto formalmente per ambiguità proprio perché nessuno riuscì a stabilire a quale delle due piante Linneo si riferisse. La traccia di quella confusione sopravvive nella letteratura antica, nei cataloghi vivaistici e sulle etichette commerciali, e obbliga chi legge fonti anteriori al Novecento a esaminare il materiale descritto prima di accettare il nome stampato sopra.
Questa pagina raccoglie la scheda botanica della specie: classificazione formale, caratteri di riconoscimento sul campo, distribuzione e ambiente, esigenze colturali, calendario riproduttivo, parenti stretti con cui viene confusa, composizione chimica descrittiva, documentazione storica ed etnografica e situazione di conservazione.
Tassonomia
La posizione della specie nella classificazione botanica attuale è la seguente:
- Regno: Plantae
- Divisione: Tracheophyta (Magnoliophyta, angiosperme)
- Classe: Magnoliopsida (eudicotiledoni)
- Ordine: Rosales
- Famiglia: Rosaceae
- Sottofamiglia: Amygdaloideae
- Tribù: Maleae
- Genere: Crataegus L., 1753
- Specie: Crataegus laevigata (Poir.) DC., 1825
Il basionimo è Mespilus laevigata Poir., pubblicato nel 1798 nell’Encyclopédie Méthodique, e il trasferimento al genere Crataegus si deve ad Augustin Pyramus de Candolle, nel secondo volume del Prodromus Systematis Naturalis Regni Vegetabilis, del 1825. La scheda dell’IPNI conferma la paternità del nome e la pagina di pubblicazione originale.
Il genere è tra i più difficili della famiglia. A seconda del trattamento adottato, il numero di specie accettate oscilla tra circa 140 e oltre un migliaio, un’ampiezza che non riflette l’ignoranza degli specialisti bensì la biologia del gruppo: ibridazione estesa, apomissia e poliploidia producono popolazioni intermedie che resistono a confini netti.
Sinonimi Accettati
- Crataegus coriacea Gand.
- Crataegus helvetica Walo Koch
- Crataegus oxyacantha f. laevigata (Poir.) Beck
- Crataegus oxyacanthoides Thuill.
- Crataegus palmstruchii Lindm.
- Crataegus subinermis Gand.
- Mespilus digyna Gray
- Mespilus intermedia Poir.
- Mespilus laevigata Poir.
- Mespilus oxyacanthoides (Thuill.) DC.
- Oxyacantha obtusata (DC.) Roem.
- Oxyacantha vulgaris (DC.) Roem.
Il Rifiuto del Nome Crataegus oxyacantha
Linneo riunì sotto Crataegus oxyacantha quelle che oggi si riconoscono come due specie distinte, e gli autori regionali di quasi tutta Europa continuarono a impiegare il binomio come termine aggregato. La prima flora britannica a separare C. laevigata da C. monogyna fu quella di Babington, nel 1843, che le trattò come varietà pur suggerendo già che potessero costituire specie autonome. L’ambiguità si risolse per via formale soltanto quando Byatt, nel 1974, dimostrò che il nome linneano non poteva essere applicato con sicurezza a nessuna delle due piante, il che ne comportò il rifiuto.
Resta inoltre una discussione minore sulla grafia dell’epiteto. Gutermann sostenne nel 2011 che la forma corretta fosse levigata, sulla base della sua lettura della pubblicazione di De Candolle, ma l’esame accurato dell’originale condotto da Christensen e Talent nel 2012 confermò laevigata come grafia valida.
Sottospecie
Il trattamento di Sell e Murrell riconosce due entità infraspecifiche, considerate da altri autori come varietà. La subsp. laevigata prevale nell’ovest dell’areale e nelle terre basse, ed è la forma dominante in Gran Bretagna, con foglie di 15-35 millimetri, quasi glabre e prive di ciuffi di peli alle ascelle delle nervature della pagina inferiore. La subsp. palmstruchii è più frequente in montagna e a est, con foglie di 30-50 millimetri, nervature più densamente pubescenti sulla pagina inferiore, ciuffi di peli ascellari presenti, ipanzio peloso e frutti ellissoidi più grandi, di 10-14 millimetri per 13-15 millimetri.
Etimologia
Il nome generico Crataegus deriva dal greco krataigos, a sua volta da kratys, forza o durezza. La seconda parte del composto ammette più di una lettura: alcuni autori la associano ad akis, punta acuta, in riferimento alle spine, mentre altri la collegano ad aix, capra, evocando la siepe viva capace di contenere il gregge. Le tre interpretazioni convergono sugli stessi attributi della pianta, la durezza del legno e l’armamento dei rami. L’epiteto laevigata deriva dal latino laevigare, lisciare o levigare, e descrive la superficie glabra e lucida del fogliame, un carattere che è valso alla specie anche il nome inglese di biancospino liscio.
Descrizione Morfologica
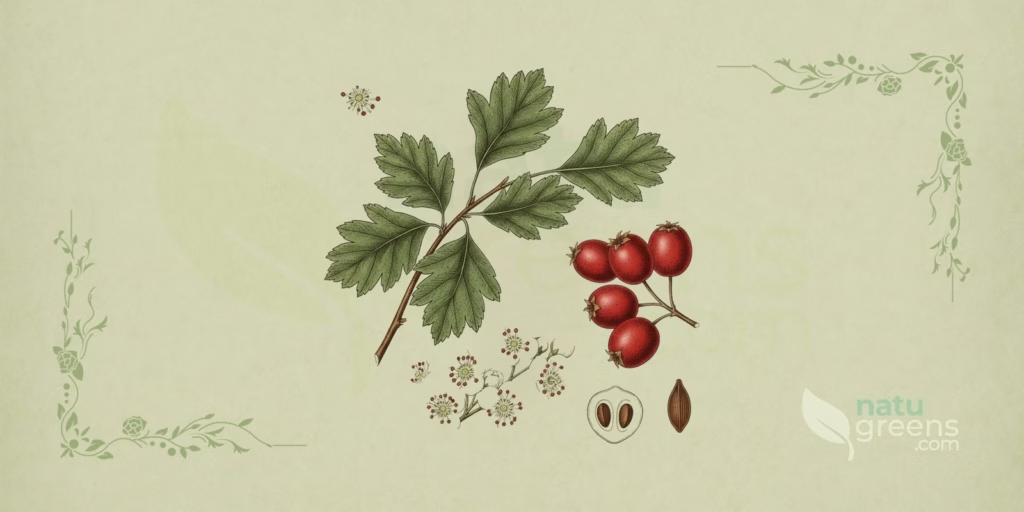
Piccolo albero deciduo che raggiunge con una certa regolarità gli 8 metri di altezza ed eccezionalmente i 12 metri, benché si presenti con altrettanta frequenza come arbusto policaule dal portamento disordinato. La chioma è densa, larga e arrotondata, e il fusto non si prolunga molto al suo interno perché si ramifica presto. I rami sono patenti o ascendenti, in genere meno rigidi di quelli di C. monogyna, e tendono a ricadere alle estremità. Le gemme sono ovoidi o subglobose, con apice arrotondato, e misurano tra 1,1 e 2,1 millimetri di lunghezza per 1,2-1,9 millimetri di larghezza, con perule bruno scuro.
Foglie
Le foglie sono alterne, spesso coriacee, verde scuro e lucide sulla pagina superiore e verde pallido su quella inferiore. Sono glabre salvo per peli sparsi lungo le nervature principali su entrambe le pagine quando sono giovani, e mancano in modo caratteristico dei ciuffi di peli alle ascelle delle nervature, comuni in C. monogyna in Gran Bretagna. Il contorno va da obovato a quasi rotondo, con uno o tre paia di lobi ottusi e poco profondi che raramente arrivano a metà della distanza dalla nervatura centrale. I lobi sono arrotondati nel contorno e più larghi che lunghi, con margine crenato-seghettato salvo che nei seni, e il lobo basale porta da 6 a 15 denti.
Le dimensioni variano a seconda della posizione sul ramo, e questa variazione ha un valore pratico per chi raccoglie materiale d’erbario. Le foglie dei rami lunghi sono le più grandi e le più profondamente lobate, e misurano da 1,9 a 7,2 centimetri per 1,8-5,1 centimetri. Quelle dei rami brevi si collocano tra 2,0 e 6,0 centimetri per 1,5-3,2 centimetri, e quelle dei rami fioriferi sono ancora più piccole, con uno o due paia di lobi oppure senza. Le nervature principali sono diritte o si curvano in avanti verso l’apice della foglia, al contrario di quanto avviene in C. monogyna, dove si curvano all’indietro. La base è cuneata o arrotondata, l’apice acuminato, il picciolo misura da 6 a 20 millimetri e le stipole sono ben visibili e fogliacee sui rami lunghi.
Fiori
I fiori nascono soprattutto sui rami brevi, riuniti in corimbi lassi di 3-11 unità, larghi da 2,5 a 5,0 centimetri. I pedicelli misurano da 6 a 30 millimetri e sono glabri o raramente villosi, un carattere che aiuta a separare la specie da C. monogyna, i cui pedicelli sono pubescenti. Ogni fiore è ermafrodito e misura da 15 a 18 millimetri di diametro. I sepali, cinque di numero, sono largamente triangolari, tanto larghi quanto lunghi, a margine intero e apice acuto. I cinque petali sono bianchi o rosa pallido, con papille striate, e misurano da 5 a 10 millimetri per 5-9 millimetri. L’ipanzio è di 3-4 millimetri ed è glabro.
Gli stami sono da 17 a 22, con filamenti pallidi e antere rosate, raramente purpuree. Gli stili sono di norma due, con variazione da uno a cinque nei fiori isolati, e gli stimmi sono gialli. Il numero di stili costituisce il carattere diagnostico più affidabile del gruppo, perché si traduce direttamente nel numero di noccioli del frutto e resta leggibile anche su materiale essiccato.
Frutti e Semi
Il frutto è un pomo da subgloboso a ellissoide, rosso scuro a maturità, con 8-10 millimetri di diametro nella maggior parte degli esemplari e un’ampiezza registrata di 6-14 millimetri, per 6-12 millimetri di lunghezza. Il volume medio, di circa 1,60 centimetri cubi, è più del doppio di quello misurato in C. monogyna, prossimo a 0,73 centimetri cubi. La superficie è in genere glabra e priva di protuberanze basali, e l’apice porta la corona di sepali persistenti, ricurvi o patenti. La polpa è giallastra, con un contenuto di umidità compreso tra il 68 e il 77 per cento.
I noccioli, o pireni, sono in genere due e seguono il numero di stili del fiore che li ha originati. Misurano circa 5-6 millimetri, con escavazioni dorsale e ventro-laterali, e differiscono sottilmente da quelli di C. monogyna per l’estremità più ottusa, a fronte dell’apice appuntito della specie sorella. Ogni frutto contiene in media da 2,1 a 2,8 semi, con una massa individuale di 60-68 milligrammi, dunque più piccoli di quelli di C. monogyna, che si collocano tra 97 e 130 milligrammi. Gli studi di ecologia della dispersione classificano i frutti come non tossici, senza rischio per gli animali che li consumano, esseri umani inclusi.
Corteccia e Rametti
La corteccia è di un grigio brunastro tendente al bruno aranciato e si screpola e fessura con l’età. I rametti sono di un grigio brunastro opaco, disposti fittamente, e si presentano lucidi e glabri quando sono giovani. Le spine sono meno numerose e più corte che in C. monogyna, e misurano da 6 a 15 millimetri, una differenza coerente con l’ecologia forestale della specie, meno esposta al brucamento rispetto alle popolazioni di siepe.
Distribuzione e Habitat
La specie è originaria dell’Europa occidentale e centrale. L’areale naturale si estende dalle isole britanniche verso est fino a Cechia e Ungheria, con una presenza quasi certamente autoctona in Romania e in Ucraina. A nord raggiunge la Svezia meridionale, la Lettonia e l’Estonia, e a sud arriva ai Pirenei spagnoli e all’Italia, con ogni probabilità Sicilia compresa. Le banche dati tassonomiche ne registrano inoltre la presenza in Austria, Belgio, Bielorussia, Corsica, Danimarca, Francia, Germania, Norvegia, Paesi Bassi, Polonia, Russia europea, Slovacchia e Svizzera. È più diffusa nella porzione centro-settentrionale di quest’area e si fa rara ai margini, come in Belgio, mentre manca in Grecia.
Nelle isole britanniche la distribuzione è assai più ristretta di quella di C. monogyna. La specie si concentra nel sud e nell’est dell’Inghilterra e avanza naturalmente fino alle Midlands, da cui deriva il suo nome vernacolare inglese. È in larga misura assente come pianta spontanea dalla Scozia e dal Galles, e le segnalazioni scozzesi corrispondono quasi sempre a esemplari piantati. Se sia o meno autoctona in Irlanda resta oggetto di discussione: vi sono esemplari maturi in diverse contee e un reperto d’erbario dell’ibrido datato 1895, ma l’ipotesi più accreditata attribuisce la sua presenza a materiale vivaistico inglese introdotto durante le recinzioni parlamentari.
Fuori dall’areale naturale la specie è stata portata in diverse regioni temperate. Si è naturalizzata nelle Gulf Islands dello stato di Washington, in Canada e negli Stati Uniti orientali, ed è stata introdotta in Tasmania e in altre parti dell’Australia nell’Ottocento per la formazione di siepi, dove oggi è considerata pianta infestante nociva in vari stati. Esistono inoltre segnalazioni da Giappone, Nuova Zelanda, Tanzania e Africa occidentale, oltre che dall’Himalaya temperato dell’India, tra i 1.800 e i 3.000 metri di quota.
L’habitat tipico definisce la specie tanto quanto la sua morfologia. Si tratta di una pianta di bosco antico, tollerante l’ombra, che si trova all’interno delle fustaie mature, ai margini dei boschi, nelle siepi vecchie e sulle scarpate di confine su suoli argillosi. Predilige terreni di tessitura pesante, dal franco all’argilloso, ed evita con costanza il gesso, il calcare, i suoli oolitici e le argille con selce, una restrizione che spiega la sua concentrazione nelle Midlands inglesi e nel Weald del sud-est. Il valore indicatore di Ellenberg per il pH in Gran Bretagna è 7, compatibile con condizioni da debolmente acide a debolmente basiche. In quota va dal livello del mare a ovest fino a 810 metri nei Sudeti polacchi, 956 metri in Slovenia, 1.281 metri nei monti Tatra e 1.560 metri a Piano Ruggio, in Italia.
Coltivazione
La specie è subatlantica e predilige un clima temperato fresco. Le medie registrate in Gran Bretagna si attestano a 3,5 gradi Celsius per gennaio e 16,2 gradi per luglio, con precipitazioni annue intorno ai 674 millimetri, dunque in ambienti leggermente più caldi e asciutti di quelli occupati da C. monogyna. Sopporta bene gli inverni del centro e del nord Europa e non presenta esigenze termiche che la limitino nelle zone temperate.
Quanto al suolo, cresce su una fascia ampia di substrati, compresi quelli silicei e moderatamente acidi, e tollera una notevole variazione di umidità. Entro questa ampiezza, però, si comporta meglio sui terreni franchi e argillosi, soprattutto quelli pesanti. La tolleranza all’ombra è il tratto agronomico che la distingue: fiorisce senza difficoltà anche sotto copertura chiusa e domina il sottobosco dei cedui invecchiati, una situazione in cui C. monogyna non riesce a insediarsi. Dove la luce aumenta per un disturbo o per un taglio, il rapporto si rovescia e la specie perde terreno.
Propagazione da Seme
I semi presentano una dormienza doppia, che combina il tegumento duro con un’esigenza fisiologica di freddo. Senza trattamento preventivo la germinazione può non verificarsi prima di 18 mesi, o addirittura prima della terza stagione vegetativa successiva alla produzione. Il protocollo messo a punto in prove polacche consiste in una stratificazione calda in ambiente umido, con temperatura alternata tra 20 e 30 gradi Celsius per 16-20 settimane, seguita da una fase fredda a 3 gradi per 16-18 settimane, al termine della quale le radichette già spuntano. Quel trattamento porta la germinazione dal 2-4 per cento all’87-94 per cento, e le plantule emergono da quattro a sei settimane dopo la semina.
La scarificazione chimica in acido solforico concentrato per due o tre ore, seguita da imbibizione in acqua per 24 ore, consente di ridurre la fase calda da 16-20 settimane a sole quattro, con tassi di germinazione equivalenti. I semi sono ortodossi e possono essere essiccati fino al 9-13 per cento di umidità senza perdita di vitalità, e tollerano la conservazione a meno 3 gradi Celsius per 12 mesi con un calo modesto della germinazione. La germinazione è epigea e la radichetta si sviluppa in un fittone con radici laterali sottili e corte.
Propagazione Vegetativa e Difesa Fitosanitaria
Le cultivar ornamentali si moltiplicano per innesto, una pratica che conserva anche caratteri florali che non si trasmettono per seme. La specie risponde bene al taglio e forma ceppaie grandi in regime di ceduo, il che ne favorisce la permanenza nei boschi gestiti. È stata inoltre valutata come portinnesto nanizzante per il pero, con compatibilità segnalata per cloni di Pyrus communis e altre Maleae.
Il punto sensibile della coltivazione è la sanità delle piante. I biancospini europei, questa specie compresa, sono molto suscettibili al colpo di fuoco batterico causato da Erwinia amylovora, e le cultivar ‘Paul’s Scarlet’ e ‘Rosea Flore Pleno’ figurano tra le più colpite. Gli impianti possono fungere da serbatoio di inoculo per meli e peri vicini, anche se il rischio associato a C. laevigata è minore di quello di C. monogyna per la sua presenza più forestale e più lontana dai frutteti. Vi si aggiungono l’oidio Podosphaera clandestina, le ruggini del genere Gymnosporangium, che richiedono un ospite alternante del genere Juniperus, e la maculatura fogliare provocata da Entomosporium thuemenii e Diplocarpon mespili.
Fenologia
La fioritura si svolge da aprile a giugno e si sposta verso la fine di questo intervallo all’estremo nord dell’areale, in Svezia. Nel sud-est dell’Inghilterra la coincidenza con il calendario liturgico è valsa alla pianta il nome locale di rosa di Pentecoste. I dati olandesi di serie lunga documentano un anticipo notevole: l’inizio medio della fioritura è passato dal 17 maggio, nella serie dal 1940 al 1968, al 1 maggio nella serie dal 2001 al 2010. I fiori si aprono prima che le foglie siano pienamente sviluppate, e più presto sugli arbusti che sugli alberi.
La specie mette le foglie prima di C. monogyna e fiorisce circa 8-14 giorni prima di essa. Questo anticipo non basta a costituire una barriera riproduttiva, perché la sovrapposizione dei periodi di fioritura delle due specie arriva al 40 per cento, il che alimenta la formazione continua dell’ibrido. In condizioni controllate, singole piante sono rimaste fiorite per 12 giorni, con fiori isolati che sono durati 8 giorni.
I fiori sono protogini. Le antere degli stami più esterni liberano il polline uno o due giorni dopo l’apertura del fiore, e i filamenti si incurvano verso l’interno nelle giornate calde, una disposizione che renderebbe meccanicamente possibile l’autoimpollinazione. La specie è però in larga misura autoincompatibile: le prove di incrocio hanno ottenuto allegagione nel 30-59 per cento dei fiori con impollinazione incrociata, contro appena il 2 per cento con autoimpollinazione. L’impollinazione è entomofila, soprattutto per opera di imenotteri e ditteri attratti dal nettare e dall’odore dei fiori, che deriva dall’emissione di trimetilammina. Il polline presenta una vitalità alta, del 96-98 per cento.
I frutti si sviluppano nell’arco di circa 106 giorni, contro gli 89 giorni di C. monogyna, e maturano tra giugno e novembre, con maturazione tardiva nelle popolazioni settentrionali. Un frutto maturo persiste sulla pianta per circa 64 giorni, e l’albero mantiene frutti maturi per una media di 82 giorni, contro i 150 giorni di C. monogyna. La dispersione spetta soprattutto agli uccelli frugivori, in primo luogo il merlo, la cesena, il tordo sassello e il tordo bottaccio, e i semi attraversano il tratto digerente oppure vengono rigurgitati. Non esiste una banca di semi persistente nel suolo, una caratteristica che rende la rinnovazione dipendente da una pioggia di semi recente.
Specie Affini e Confusioni
L’identificazione dei Crataegus sul campo è notoriamente difficile, e il materiale esaminato deve comprendere frutti maturi e foglie di rami laterali brevi per consentire una determinazione sicura. Un esemplare giudicato solo dalle foglie dei getti vigorosi porta facilmente all’errore.
Distinzione da Crataegus monogyna
Questa è la confusione centrale del gruppo e la ragione per cui il nome C. oxyacantha è stato respinto. I caratteri che separano le due specie sono i seguenti:
- Dimensione del fiore: oltre 15 millimetri di diametro in C. laevigata, fino a 15 millimetri in C. monogyna.
- Lobi fogliari: uno o tre paia di lobi poco profondi e arrotondati, che raramente arrivano a metà della distanza dalla nervatura centrale in C. laevigata, contro cinque o sette lobi profondi e acuti che superano i due terzi di quella distanza in C. monogyna.
- Nervature principali: diritte o curvate in avanti in C. laevigata, curvate all’indietro in C. monogyna.
- Noccioli del frutto: C. laevigata ha di norma due pireni, e può arrivare a tre; C. monogyna ne ha uno solo, occasionalmente due.
- Pedicelli e ciuffi di peli: pedicelli glabri e ascelle delle nervature senza ciuffi di peli in C. laevigata, contro pedicelli pubescenti e ciuffi ascellari presenti in C. monogyna in Gran Bretagna.
- Spine: meno numerose e più corte in C. laevigata, da 6 a 15 millimetri, e più lunghe e frequenti in C. monogyna.
- Stili: di norma due in C. laevigata, con variazione da uno a cinque; uno solo in C. monogyna.
A complicare il quadro c’è il fatto che le due specie sono interfertili e producono l’ibrido Crataegus × media Bechst., di morfologia intermedia, con uno o due stili e altrettanti noccioli. L’unica barriera rilevante all’ibridazione è la separazione spaziale degli habitat, e dove la frammentazione forestale ha avvicinato le popolazioni l’ibrido è diventato frequente, in diverse regioni britanniche più comune della stessa C. laevigata. Un esemplare con due stili, dunque, non è automaticamente C. laevigata, e la diagnosi acquista affidabilità quando più caratteri puntano nella stessa direzione.
Distinzione da Crataegus mexicana
La separazione rispetto al tejocote è immediata e non dipende da caratteri sottili. La specie messicana produce pomi di 1,5-3 centimetri di diametro, dal giallo dorato all’arancio a maturità, a fronte dei frutti rosso scuro di 8-10 millimetri della specie europea. Le foglie di C. mexicana sono romboidali-ellittiche o ovato-lanceolate, a margine seghettato e senza lobatura marcata, mentre quelle di C. laevigata sono obovate e lobate. L’infiorescenza messicana riunisce da 2 a 6 fiori in ombrella, contro i corimbi di 3-11 fiori dell’europea. Vi si aggiungono la distribuzione del tutto disgiunta, con C. mexicana confinata alle montagne di Messico e Guatemala, e il fogliame più persistente e più coriaceo della specie neotropicale.
Altre Specie e l’Ambiguità dei Nomi Comuni
Oltre che con C. monogyna, la specie si ibrida con C. rhipidophylla, dando C. × macrocarpa, e con C. lindmanii, formando C. × calycina. Si segnala inoltre l’ibrido intergenerico con il nespolo comune, Mespilus germanica, denominato × Crataemespilus grandiflora, oltre alle chimere di innesto note come Crataegomespilus, ottenute innestando il nespolo sul biancospino.
Conviene un avvertimento sulla nomenclatura vernacolare italiana. La lingua dispone del nome biancospino selvatico per questa specie, ma l’uso corrente impiega biancospino da solo, o le forme dialettali come maggiaiola e spino bianco, per entrambe le specie europee del genere senza distinguerle, e nella maggior parte del territorio il riferimento implicito è C. monogyna, di gran lunga la più diffusa. Davanti a qualsiasi testo italiano che usi solo il nome comune, l’identificazione della specie dipende dalla verifica del binomio citato e, quando possibile, dei caratteri descritti.
Fitochimica
Questa sezione descrive la composizione chimica documentata per la specie. Si tratta di una caratterizzazione analitica, senza alcun rapporto con effetti sulle persone.
Il contenuto fenolico totale misurato in C. laevigata raggiunge 1.288 milligrammi per 100 grammi di massa fresca, con acidi fenolici totali a 964 milligrammi per 100 grammi, valori prossimi a quelli di C. monogyna e superiori a quelli di altri sette arbusti analizzati nello stesso studio. Nelle parti fiorifere di campioni europei spontanei, il contenuto fenolico totale è variato da 3 a 19 grammi per chilogrammo di massa secca, con una media di 12 grammi per chilogrammo.
La caratterizzazione mediante cromatografia accoppiata a spettrometria di massa ha identificato 54 composti nelle foglie e 47 nei fiori della specie, contro 38 e 41 in C. monogyna. Le classi rappresentate comprendono acidi clorogenici e altri acidi fenolici, proantocianidine, glicosidi flavonoidici e agliconi flavonoidici. Tra i flavonoidi descritti figurano apigenina, catechina, epicatechina, iperoside, isoquercitrina, isovitexina, procianidina B-2, quercetina, rutina e vitexina. Le proantocianidine arrivano a 40,6 grammi per chilogrammo in materiale sloveno, e il contenuto totale di flavonoidi dei fiori è risultato il più alto tra dieci specie di Crataegus messe a confronto.
La composizione presenta un interesse tassonomico. La vitexina e i suoi derivati compaiono a concentrazione più alta nelle foglie delle specie europee del genere, mentre la rutina si concentra in modo marcato in quelle nordamericane. L’assenza di isoorientina, orientina, 8-metossicampferolo-3-O-glucoside e 4”-acetil-vitexina-2”-O-ramnoside in C. laevigata è stata proposta come criterio chimico ausiliario per separarla da C. monogyna, il che conferisce alla fitochimica un ruolo di supporto alla delimitazione delle specie.
Tra i triterpeni, gli acidi oleanolico e ursolico sono i componenti di maggior rilievo. Le analisi dei composti organici volatili hanno rilevato i sesquiterpeni cariofillene e umulene nelle emissioni florali, con farnesene e il monoterpene limonene che compaiono dopo la fioritura. Non sono stati rilevati alcaloidi né saponine vere nella specie, benché vi sia stato identificato lo pseudosaponoside tormentoside. Cristalli di acido ossalico si trovano in tutte le parti della pianta e rappresentano lo 0,065 per cento della massa secca fogliare.
La concentrazione dei metaboliti risponde alle condizioni ambientali. Le piantine sottoposte a dieci giorni di siccità hanno mostrato un aumento di epicatechina e iperoside con riduzione di vitexina e acetilvitexina, mentre lo stress da freddo a 4 gradi Celsius ha fatto salire vitexina, epicatechina, iperoside, quercetina e acetilvitexina. La specie accumula inoltre metalli pesanti in radici e foglie quando viene coltivata su suolo contaminato.
Storia ed Etnobotanica
La separazione evolutiva tra C. laevigata e C. monogyna è stata datata mediante analisi del DNA cloroplastico a circa dieci milioni di anni, il che fa della somiglianza morfologica tra le due un caso di conservazione della forma lungo un intervallo considerevole. Il registro fossile, invece, non le distingue: i macrofossili di legno e carbone sono indistinguibili, e di regola lo stesso vale per i semi. I granuli pollinici si possono separare statisticamente, dato che quelli di C. laevigata sono in prevalenza sferoidali, di 28-40 micrometri e con striature di basso rilievo, contro granuli allungati di 30-44 micrometri e rilievo alto in C. monogyna, ma il criterio non è mai stato applicato nella pratica paleobotanica.
Il biancospino è una pianta comune nei boschi europei fin dal Mesolitico, e ogni periodo culturale dal Neolitico all’epoca normanna ha lasciato testimonianze del genere. La maggior parte del materiale preistorico identificato corrisponde a C. monogyna, specie pioniera più efficiente in un paesaggio in fase di apertura, benché resti aperta la possibilità che C. laevigata sia stata sottostimata per difficoltà di identificazione.
Gli usi storici documentati per il legno e per la pianta sono vari. Il legno, denso e a grana uniforme, è stato impiegato nella confezione di manici di attrezzi e bastoni da passeggio. La corteccia e le radici hanno fornito una tintura gialla o bruna, e la corteccia è stata utilizzata nella concia, una pratica documentata ad Algeri. I frutti sono stati consumati freschi e trasformati in succhi, gelatine e acquaviti in diverse regioni europee, e venivano essiccati per il consumo invernale; i noccioli tostati sono serviti da surrogato del caffè. In Italia il biancospino è stato piantato correntemente per recintare le particelle agricole, una funzione perduta con la meccanizzazione e con la necessità di far circolare le macchine, il che ha portato alla scomparsa quasi completa di quelle siepi.
Nel campo dell’antica materia medica, la menzione risale a Dioscoride, nel primo secolo, che designò la pianta con il nome greco da cui sarebbe nato il binomio linneano poi respinto. Fu quel percorso nomenclaturale, e non un qualche attributo botanico, a fissare Crataegus oxyacantha nella letteratura farmaceutica europea per così tanto tempo, ragione per cui il binomio continua a comparire in fonti che descrivono indifferentemente l’una o l’altra delle due specie europee.
Conservazione
La specie è valutata come a Minore Preoccupazione nella Lista Rossa dell’IUCN, una categoria coerente con la sua ampia distribuzione europea. Compare inoltre nella Lista Rossa delle piante vascolari del Lussemburgo, anche lì nella categoria di minore preoccupazione, accanto a C. monogyna e a C. rhipidophylla.
Quelle cifre nascondono però un processo che merita attenzione. La frequenza registrata di C. laevigata in Gran Bretagna è cambiata poco dal 1962, ma una parte di questa stabilità apparente deriva da impianti realizzati dentro e fuori l’areale nativo, e un’altra dalla facilità con cui la specie viene confusa con l’ibrido C. × media, il che fa sì che alcune segnalazioni nuove corrispondano in realtà all’ibrido. Dietro quell’apparenza di stabilità c’è un forte indizio di declino delle popolazioni geneticamente pure, con particolare gravità nel sud-est inglese.
Il meccanismo è ben compreso. Il disturbo e la frammentazione dei boschi aprono spazio a C. monogyna, che penetra in ambienti prima occupati soltanto dalla specie d’ombra, e poiché le due sono pienamente interfertili la conseguenza è l’ibridazione seguita da introgressione. La valutazione più pessimistica della letteratura arrivò a suggerire, già nel 1975, che la C. laevigata pura potesse scomparire del tutto con l’avanzare dell’introgressione, e un problema equivalente è stato individuato in Belgio e in Polonia. Sopravvivono popolazioni relativamente pure dove i complessi forestali sono grandi e poco frammentati, come nelle estese foreste del nord-est della Francia.
La situazione si rovescia ai margini dell’areale. In Bulgaria, all’estremo sud-est dell’area nativa, l’ibrido C. × media è raro al punto da essere stato proposto per l’inserimento nel libro rosso nazionale con necessità di protezione legale. L’assenza di una banca di semi persistente nel suolo aggiunge un fattore di fragilità, perché il recupero di una popolazione dipende interamente da una dispersione recente da parte degli uccelli.
Curiosità
- La dispersione della specie è stata documentata a partire da fonti inattese: noccioli di biancospino sono stati identificati in deiezioni di gru, di orsi e di ungulati, ed esiste un resoconto antico su un falco pellegrino il cui posatoio accumulava noccioli provenienti dal gozzo dei piccioni catturati.
- De Candolle registrò nel 1825 una tecnica orticola che consisteva nel dare i noccioli della pianta in pasto ai tacchini, il cui passaggio attraverso il tratto digerente degli uccelli anticipava la germinazione di circa un anno rispetto ai semi non trattati.
- L’odore dei fiori, sgradevole per l’olfatto umano, deriva dall’emissione di trimetilammina, lo stesso composto associato all’odore del pesce in decomposizione, ed è proprio esso ad attirare i ditteri responsabili di una parte dell’impollinazione.
- Le prove danesi in serra hanno misurato quanto la specie dipenda dagli impollinatori: le piante visitate dall’ape tagliafoglie Megachile rotundata hanno prodotto 269 frutti, contro un solo frutto sulle piante tenute senza accesso agli insetti.
- La cultivar ‘Paul’s Scarlet’, a fiori doppi rossi, comparve intorno al 1880 come mutazione di ramo della cultivar ‘Rosea Flore Pleno’ e ha uno statuto ambiguo: in Gran Bretagna e in Nord America viene attribuita a C. laevigata, mentre nell’Europa continentale si tratta di solito come cultivar dell’ibrido C. × media.
- Una falena minuscola, Coleophora coracipennella, perfora i boccioli florali per nutrirsi di polline e arrivò a sterilizzare il 20 per cento dei fiori di una popolazione studiata nell’Oxfordshire, con un riflesso diretto sulla produzione di frutti di quell’anno.
- Il Glastonbury Thorn, il biancospino leggendario legato alla tradizione inglese perché fiorisce due volte l’anno, non appartiene a questa specie: si tratta della cultivar ‘Biflora’ di C. monogyna, un’attribuzione che i testi divulgativi scambiano di frequente.
- Il censimento classico di Southwood ha contato 149 specie di insetti associate ai biancospini britannici, una cifra che dà la misura del ruolo di questi alberi come sostegno per la fauna, per quanto resti ben al di sotto delle 284 specie registrate sulle querce.
Avviso: questo contenuto è informativo e non sostituisce il parere di un professionista sanitario. Consultare un medico o un fitoterapeuta prima di usare piante medicinali, soprattutto in gravidanza, durante l’allattamento o in caso di assunzione di farmaci.
Riferimenti e Studi Scientifici
Vedi Tutti i 16 Riferimenti Citati
Studi Scientifici Peer-Reviewed (3)
- DOI2021 Thomas, P. A., Leski, T., La Porta, N., Dering, M., Iszkuło, G. Biological Flora of the British Isles: Crataegus laevigata. Journal of Ecology, 109(1), 572-596. 2021. ↗
- DOI2012 Edwards, J. E., Brown, P. N., Talent, N., Dickinson, T. A., Shipley, P. R. A review of the chemistry of the genus Crataegus. Phytochemistry, 79, 5-26. 2012. ↗
- DOI2021 Fichtner, A., Wissemann, V. Biological Flora of the British Isles: Crataegus monogyna. Journal of Ecology, 109, 541-571. 2021. ↗
Letture Complementari (13)
- 1992 Christensen, K. I. Revision of Crataegus sect. Crataegus and nothosect. Crataeguineae (Rosaceae-Maloideae) in the Old World. Systematic Botany Monographs, 35, 1-199. 1992.
- 1974 Byatt, J. I. Application of the names Crataegus calycina Peterm. and C. oxyacantha L. Botanical Journal of the Linnean Society, 69, 15-21. 1974.
- 1975 Byatt, J. I. Hybridization between Crataegus monogyna Jacq. and C. laevigata (Poiret) DC. in south-eastern England. Watsonia, 10, 253-264. 1975.
- 2012 Christensen, K. I., Talent, N. Crataegus laevigata or C. levigata (Rosaceae), a paleographic analysis. Phyton (Horn, Austria), 52(2), 195-201. 2012.
- de Candolle, A. P. Prodromus Systematis Naturalis Regni Vegetabilis, pars 2. Paris. 1825.
- Poiret, J. L. M. Mespilus laevigata. In: Encyclopédie Méthodique, Botanique, 4(2), 439. Paris. 1798.
- 2006 Bujarska-Borkowska, B. Seed dormancy breaking in Crataegus laevigata. Dendrobiology, 56, 3-11. 2006.
- 2015 Karar, M. G. E., Kuhnert, N. UPLC-ESI-Q-TOF-MS/MS characterization of phenolics from Crataegus monogyna and Crataegus laevigata leaves, fruits and their derived drops. Journal of Chemical Biology & Therapeutics, 1, e102. 2015.
- 2012 Lo, E. Y. Y., Donoghue, M. J. Expanded phylogenetic and dating analyses of the apples and their relatives (Pyreae, Rosaceae). Molecular Phylogenetics and Evolution, 63, 230-243. 2012.
- 1991 Eriksson, O., Ehrlén, J. Phenological variation in fruit characteristics in vertebrate-dispersed plants. Oecologia, 86, 463-470. 1991.
- 2014 Sell, P., Murrell, G. Flora of Great Britain and Ireland, vol. 2. Cambridge University Press. 2014.
- International Plant Names Index. Crataegus laevigata (Poir.) DC. Royal Botanic Gardens Kew, Harvard University Herbaria and Australian National Herbarium. Scheda 723644-1. ↗
- Plants of the World Online. Crataegus laevigata (Poir.) DC. Royal Botanic Gardens Kew. ↗