Le Camellia sinensis est l’arbuste persistant à feuilles larges dont proviennent tous les thés véritables du monde. Le vert, le blanc, le jaune, l’oolong, le noir et le puerh ne sont pas des plantes différentes : ce sont les produits d’une seule espèce, que séparent le stade auquel la feuille est cueillie et le degré d’oxydation qu’on lui fait subir ensuite. L’espèce appartient aux Theaceae, une famille ligneuse de l’ordre des Ericales qui réunit environ neuf genres répartis dans les régions tropicales et subtropicales d’Asie et des Amériques.
Son aire indigène couvre l’Himalaya oriental, le sud de la Chine et le nord de l’Indochine, une bande de forêt subtropicale humide où il pousse en sous-bois. Des siècles de culture ont transformé cet arbuste forestier en la culture pérenne la plus plantée de la planète après les graminées alimentaires, avec des plantations commerciales dans plus de soixante pays et une variation morphologique interne assez marquée pour que la taxinomie moderne reconnaisse cinq variétés botaniques sous le même nom.
Le texte qui suit traite de la plante et non de la boisson. Il rassemble la classification formelle et la synonymie vérifiées auprès de l’IPNI et de Plants of the World Online, les caractères d’identification sur le terrain, l’écologie et la répartition indigène, les pratiques agronomiques de culture, le calendrier phénologique, les espèces du genre qui prêtent à confusion dans les jardins, la composition chimique décrite dans la littérature, l’histoire botanique et la situation de conservation.
Pour les usages traditionnels, les propriétés et les modes de préparation de cette plante, consultez l’article Thé Vert (Camellia sinensis): Propriétés et Bienfaits.
Le thé vert n'est pas une espèce à part: c'est la feuille de Camellia sinensis cueillie à un stade précis et très peu oxydée.
Le thé vert, le blanc, l'oolong et le noir proviennent tous du même arbuste.
Taxinomie
Le nom accepté est Camellia sinensis (L.) Kuntze, confirmé dans l’International Plant Names Index sous l’enregistrement 828548-1 et reconnu comme accepté par Plants of the World Online. Otto Kuntze a publié la combinaison actuelle dans la Revisio Generum Plantarum, en 1887, transférant dans Camellia le basionyme que Linné avait décrit en 1753 sous le nom de Thea sinensis. La classification ci-dessous suit la circonscription adoptée par Kew :
- Règne : Plantae
- Division : Streptophyta (angiospermes ; Magnoliophyta dans la nomenclature traditionnelle)
- Classe : Equisetopsida (Magnoliopsida dans les classifications plus anciennes)
- Sous-classe : Magnoliidae
- Ordre : Ericales
- Famille : Theaceae Mirb.
- Genre : Camellia L.
- Espèce : Camellia sinensis (L.) Kuntze (1887)
Synonymes
Contrairement à ce que suggère la littérature ancienne, la synonymie acceptée aujourd’hui est courte. Plants of the World Online ne reconnaît que deux noms :
- Camellia thea Link (1822), nom illégitime et superflu
- Thea sinensis L. (1753), le basionyme
Une correction mérite d’être signalée, car elle circule mal dans les sources secondaires. Des noms comme Thea bohea L. et Thea viridis L., abondamment cités dans les textes du dix-neuvième siècle comme s’ils désignaient respectivement la plante du thé noir et celle du thé vert, ne soutiennent pas cette séparation. La différence entre les deux produits n’a jamais été botanique mais relève du traitement après récolte, et la taxinomie a fini par trancher en rassemblant le tout sous un nom spécifique unique.
Variétés Acceptées
Plants of the World Online reconnaît cinq variétés infraspécifiques, dont deux concentrent la quasi-totalité de la production mondiale :
- Camellia sinensis var. assamica (Royle ex Hook.) Steenis : port arborescent, grandes feuilles membraneuses, adaptée au climat tropical humide. Elle domine en Assam, au Sri Lanka, au Kenya et en Asie du Sud-Est.
- Camellia sinensis var. dehungensis (Hung T.Chang, H.S.Wang & B.H.Chen) T.L.Ming : variété du Yunnan, à répartition restreinte.
- Camellia sinensis var. madoensis T.V.Nguyen, V.D.Luong & N.Trieu Le : décrite du Vietnam et connue de peu de populations.
- Camellia sinensis var. pubilimba Hung T.Chang : reconnaissable à la pubescence dense de la face inférieure de la feuille, surtout le long de la nervure médiane. Elle se rencontre dans le sud de la Chine.
- Camellia sinensis var. sinensis : la variété type, arbustive, à petites feuilles coriaces et bonne tolérance au froid. Elle domine les plantations de Chine orientale, du Japon, de Corée et de Taïwan.
L’ancienne var. cambodiensis, fréquente dans la bibliographie agronomique, ne figure pas parmi les taxons acceptés et correspond à du matériel aujourd’hui placé dans la circonscription de la var. assamica.
Étymologie
Linné a forgé le nom générique en hommage à Georg Joseph Kamel, jésuite morave qui vécut de 1661 à 1706 et se consacra à l’étude de la flore des Philippines, son patronyme latinisé en Camellus. L’épithète sinensis vient du latin tardif et signifie « de Chine », en référence au territoire d’où parvinrent en Europe les premiers spécimens connus de la science occidentale, alors même que l’aire indigène de l’espèce dépasse largement les frontières chinoises. Le nom courant de la boisson a suivi une autre route : les langues qui ont reçu le produit par voie terrestre ont adopté des variantes de « cha », d’après la lecture cantonaise et mandarine du caractère 茶, tandis que celles approvisionnées par mer, via le port d’Amoy dans le sud du Fujian, ont adopté des variantes de « te ».
Description Morphologique
Le port varie fortement selon la variété et la conduite. Laissée sans taille, la var. assamica forme un arbre à tronc unique qui atteint quinze mètres en forêt, tandis que la var. sinensis reste un arbuste ramifié dès la base, entre un mètre cinquante et cinq mètres. En plantation commerciale, les deux extrêmes disparaissent : la taille répétée maintient la plante entre un mètre et un mètre cinquante et induit une surface horizontale dense de pousses, la table de cueillette, qui constitue la structure réellement exploitée. L’écorce est lisse, brun grisâtre, et la couronne tend vers un contour arrondi et compact.
Feuilles
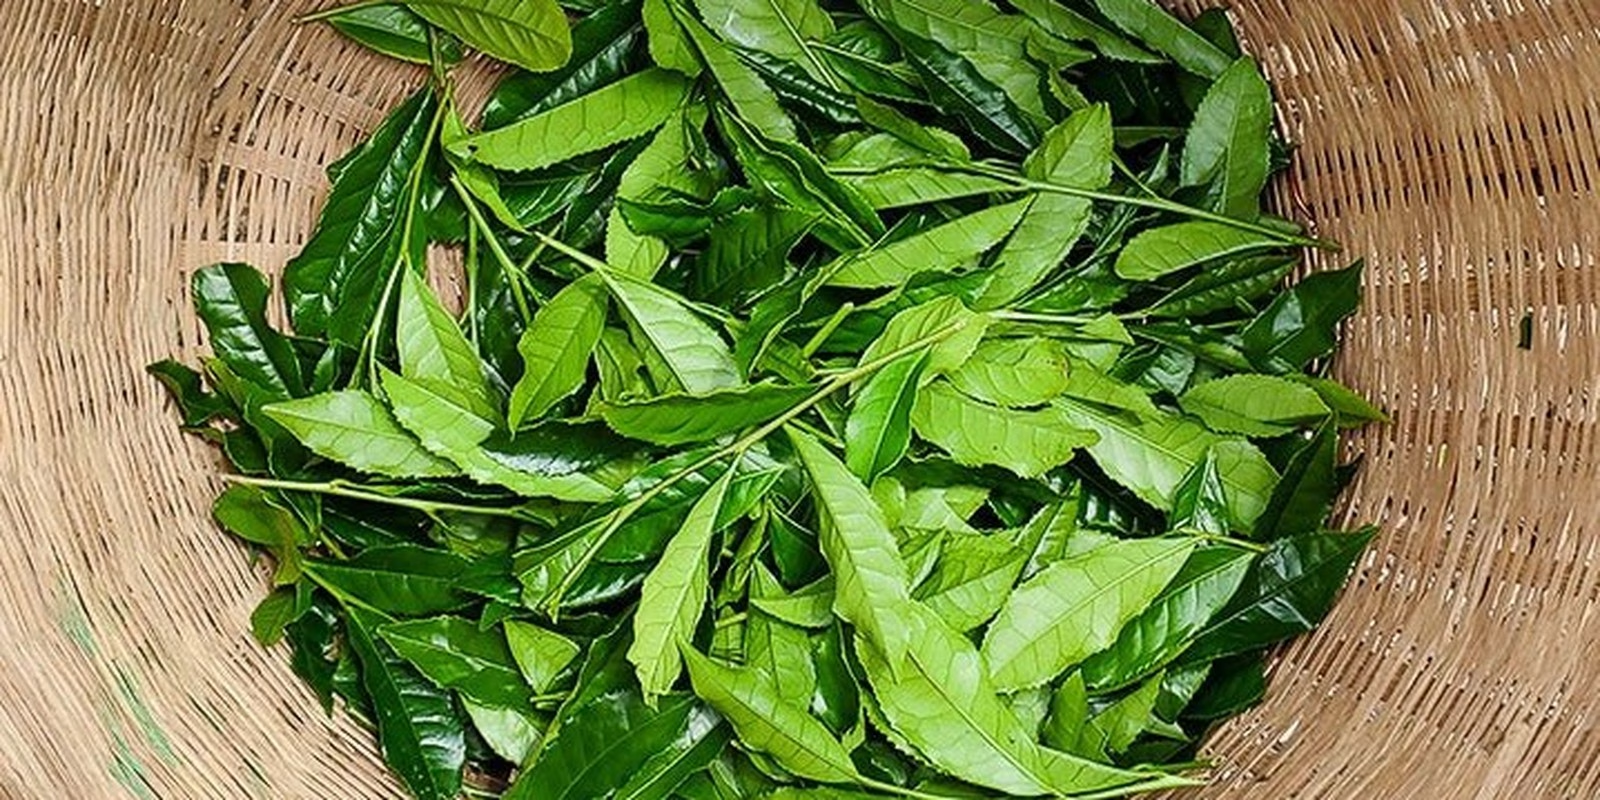
Feuilles fraîchement cueillies de Camellia sinensis dans un panier de bambou. Le limbe elliptique-lancéolé, la marge finement dentée et les nervures secondaires qui se recourbent avant d’atteindre le bord réunissent les caractères qui permettent de reconnaître l’espèce sur le terrain.
Les feuilles sont alternes, simples, persistantes et de texture coriace, à limbe oblong-lancéolé à elliptique. La longueur est le caractère qui sépare le mieux les deux variétés principales : de quatre à huit centimètres chez la var. sinensis et de dix à vingt-cinq centimètres chez la var. assamica, pour une largeur de deux à huit centimètres. La face supérieure est vert foncé et brillante, l’inférieure plus claire et mate. La marge présente une dentelure fine et régulière, et la nervation est pennée, avec sept à neuf paires de nervures secondaires saillantes en dessous, qui s’incurvent avant d’atteindre la marge. Le pétiole est court, de cinq à dix millimètres. Les bourgeons apicaux encore fermés sont couverts de trichomes blancs argentés, caractère à l’origine des appellations commerciales du type Silver Tip.
Fleurs
Les fleurs sont hermaphrodites et naissent isolées ou par groupes de deux à quatre à l’aisselle des feuilles, sur de courts pédicelles recourbés. Elles mesurent de deux à quatre centimètres de diamètre et réunissent cinq à huit pétales, généralement sept, blancs à crème, légèrement parfumés et de texture délicate. Le calice compte cinq ou six sépales verdâtres et persistants. L’androcée est nombreux, avec deux cents à trois cents étamines à filets jaunes soudés à la base et anthères orangées, formant le disque voyant caractéristique du genre. Le style se termine par un stigmate trifide. La pollinisation est entomophile et dépend surtout des abeilles et de petits coléoptères. L’espèce est largement auto-incompatible, trait qui explique la forte variabilité des plantes issues de semis et la préférence de la culture moderne pour la multiplication végétative.
Fruits et Graines
Le fruit est une capsule ligneuse et lisse, de teinte brune à maturité, de deux à trois centimètres de diamètre, trilobée ou tétralobée selon le nombre de loges fertiles. La déhiscence est loculicide. Chaque capsule abrite une à quatre graines globuleuses d’un à un centimètre et demi de diamètre, à tégument brun et albumen riche en lipides, qui représentent quinze à vingt-deux pour cent du poids sec. La maturation est lente et demande neuf à douze mois après l’anthèse, si bien que fleurs et fruits du cycle précédent cohabitent sur le même rameau une bonne partie de l’année.
Racine et Tige
La plantule développe une racine pivotante bien marquée qui, chez la plante adulte, cède la place à un système mixte, à racines latérales abondantes et à profondeur utile d’un à trois mètres selon le sol. Cette profondeur est le principal facteur de tolérance aux sécheresses courtes. Le système racinaire est sensible à l’engorgement prolongé et supporte mal les sols compactés ou à nappe phréatique haute, ce qui explique la préférence agronomique pour les versants bien drainés. La tige est ligneuse, à ramification sympodiale abondante, et forme des nœuds rapprochés qui portent la densité de pousses exploitée à la cueillette.
Répartition et Habitat
D’après Plants of the World Online, l’aire indigène s’étend de l’Himalaya oriental au sud de la Chine et au nord de l’Indochine, Hainan comprise. Les unités d’enregistrement reconnues sont, par ordre alphabétique : Assam, Chine centre-sud, Chine sud-est, Hainan, Himalaya oriental, Laos, Myanmar, Thaïlande et Vietnam.
Le biome d’occurrence est le subtropical humide. À l’état naturel, la plante occupe le sous-bois de forêts sempervirentes de versant, sur des sols acides, profonds et riches en matière organique, à des altitudes allant de quelques centaines de mètres à plus de deux mille. L’exigence d’acidité est stricte et l’intervalle de pH compris entre quatre et demi et six définit une grande part de la géographie productive mondiale. L’espèce tolère l’ombrage partiel, condition qui reproduit le milieu forestier d’origine et que l’agronomie japonaise a convertie en technique délibérée de culture.
Hors de l’aire indigène, la culture s’est répandue dans toute la ceinture tropicale et subtropicale. Les principaux pôles de production se situent en Chine, en Inde, au Kenya, au Sri Lanka, en Turquie, au Vietnam et en Indonésie, avec des plantations plus modestes au Japon, à Taïwan, en Géorgie, en Iran, au Rwanda, au Malawi, en Argentine et au Brésil. La culture brésilienne se concentre dans la vallée du Ribeira, dans l’État de São Paulo, lancée dans les années 1930 par des immigrants japonais autour d’Iguape, Pariquera-Açu et Registro, avec des noyaux plus petits dans le nord du Paraná.
Culture
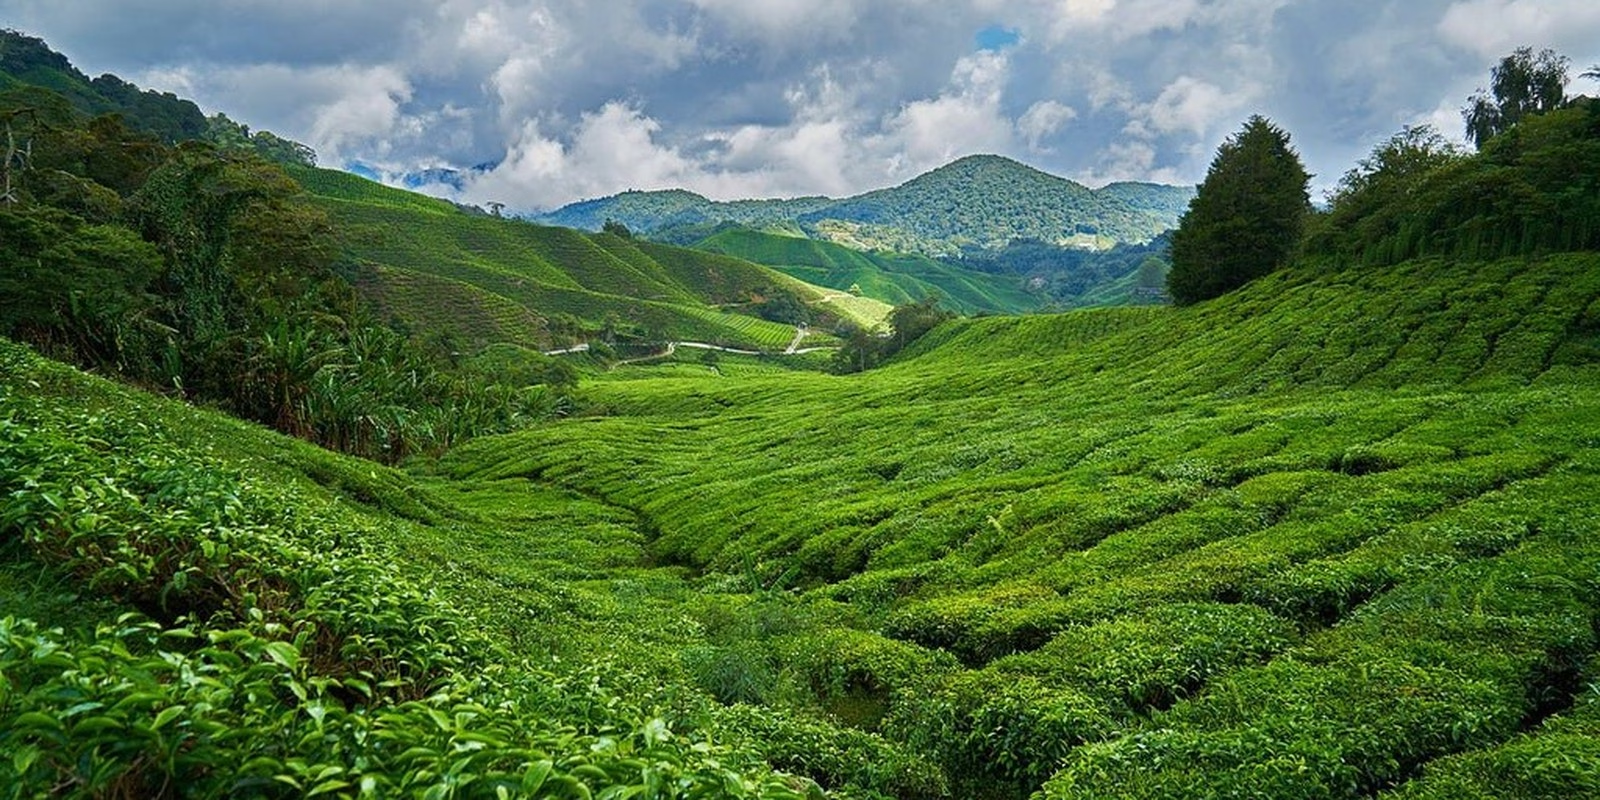
Plantation commerciale de Camellia sinensis sur un versant tropical d’altitude. La taille d’entretien maintient la hauteur de cueillette et provoque la surface continue de jeunes pousses appelée table de cueillette, sur des sols acides et bien drainés.
La multiplication commerciale se fait presque entièrement par bouturage semi-ligneux, avec des boutures de cinq à huit centimètres portant une ou deux feuilles, traitées à l’auxine et enracinées en substrat humide sur soixante à quatre-vingt-dix jours. Ce choix découle de l’auto-incompatibilité de l’espèce, qui rend la descendance issue de graines trop hétérogène pour une plantation uniforme. Le semis subsiste dans les programmes d’amélioration et dans les petites exploitations familiales, avec une germination lente de soixante à cent vingt jours, et la culture de tissus se développe pour la multiplication rapide de cultivars sélectionnés.
Les exigences édaphoclimatiques sont étroites. La plage thermique favorable se situe entre quinze et vingt-huit degrés Celsius sur l’année, la var. sinensis supportant des minimales proches de zéro et la var. assamica exigeant au moins douze degrés. Les gelées sévères sont fatales. La pluviométrie annuelle requise va de mille cinq cents à trois mille millimètres bien répartis, avec une humidité relative de soixante-dix à quatre-vingt-dix pour cent, et les vents forts constants provoquent une abrasion foliaire suffisante pour justifier des brise-vent dans les plantations commerciales.
L’écartement usuel combine un mètre vingt à un mètre cinquante entre les rangs et soixante à quatre-vingts centimètres entre les plants, ce qui donne des densités de dix mille à quatorze mille plants par hectare. L’azote est l’élément le plus demandé en culture intensive, suivi du potassium, du phosphore et du zinc. La conduite repose sur trois tailles aux fonctions distinctes : la taille de formation, les trois premières années, force la croissance latérale et monte la table de cueillette ; la taille d’entretien, annuelle ou bisannuelle, maintient la hauteur de récolte et stimule le débourrement ; et la taille de rajeunissement, appliquée tous les huit à douze ans, rabat la plante à trente ou cinquante centimètres pour reconstruire la couronne.
La cueillette n’exploite que l’extrémité en croissance de chaque rameau et suit des standards consacrés allant du bourgeon seul à l’ensemble bourgeon plus deux feuilles. Les plantations de haute valeur sont cueillies à la main ; la mécanisation dessert la production à grande échelle. La plante entre en production commerciale vers la troisième année, atteint son pic entre dix et trente ans et reste productive cinq à dix décennies sous une conduite adaptée.
Phénologie
Le cycle annuel associe une longue période de croissance végétative à une floraison concentrée en fin de saison. Le débourrement se fait par vagues successives, connues dans la littérature agronomique sous le nom de flushes, séparées par des intervalles de sept à quatorze jours durant la saison de croissance. En climat tropical, le processus est pratiquement continu toute l’année ; en climat tempéré ou subtropical, il se concentre en quatre à six vagues entre le printemps et l’automne, avec une dormance hivernale marquée.
La floraison a lieu en automne et au début de l’hiver, ce qui correspond aux mois de septembre à janvier dans l’hémisphère nord et de mars à juillet dans l’hémisphère sud. Chaque fleur ne reste réceptive que quelques jours. La fructification est lente et la capsule mûrit neuf à douze mois plus tard, de sorte que la chute des fruits mûrs coïncide à peu près avec la floraison suivante. Dans les plantations conduites en taille fréquente, la floraison est fortement réduite, car l’élimination continue des extrémités détourne la croissance vers des pousses végétatives et limite la formation de bourgeons floraux.
Espèces Apparentées et Confusions
Le genre Camellia compte environ deux cent cinquante espèces acceptées, concentrées en Asie orientale et du Sud-Est. Dans les jardins et les pépinières, la confusion est fréquente, surtout hors de la période de floraison :
- Camellia japonica L. : le camélia ornemental classique, avec des dizaines de milliers de cultivars enregistrés. Il se distingue par ses feuilles larges, épaisses et très luisantes et par ses grandes fleurs, de cinq à treize centimètres, rouges, roses ou blanches, ouvertes en fin d’hiver et au printemps. Aucun emploi dans la production de thé.
- Camellia nitidissima Chi : espèce chinoise remarquable par ses fleurs jaune doré, cas rarissime dans le genre. Un habitat restreint et une forte pression de cueillette l’ont placée sous protection légale en Chine.
- Camellia oleifera Abel : le camélia à huile, cultivé à grande échelle dans le sud de la Chine pour ses graines, dont on extrait une huile alimentaire et cosmétique. Il ressemble à C. sinensis par le port et la feuille, mais porte des fleurs plus grandes et des capsules nettement plus volumineuses.
- Camellia reticulata Lindl. : espèce du Yunnan aux plus grandes fleurs du genre, jusqu’à quinze centimètres de diamètre, et aux feuilles à nervation réticulée bien visible. Exclusivement ornementale.
- Camellia sasanqua Thunb. : ornementale japonaise à floraison automnale, à feuilles plus petites et plus minces et à fleurs moyennes, de cinq à sept centimètres, blanches à rosées. Ses graines fournissent également de l’huile.
- Camellia taliensis (W.W.Sm.) Melch. : le parent sauvage le plus proche, indigène du Yunnan et du nord du Myanmar. Il s’en sépare par des caractères floraux fins, et sa proximité génétique en fait une pièce centrale des travaux sur l’origine du thé cultivé.
Les critères pratiques face aux deux ornementales les plus courantes tiennent bien. La fleur de C. sinensis est petite, blanche et à étamines jaunes proéminentes, face à la fleur grande et souvent double de C. japonica. Sa feuille est plus étroite et sa dentelure plus fine que chez l’une comme chez l’autre. Le calendrier aide aussi : C. sasanqua fleurit en automne, C. sinensis de l’automne au début de l’hiver et C. japonica de la fin de l’hiver au printemps.
Phytochimie du Thé Vert
La feuille de Camellia sinensis figure parmi les matériels végétaux les mieux caractérisés chimiquement, et la description qui suit est strictement compositionnelle. Les groupes documentés dans la littérature sont, par ordre alphabétique :
- Acides aminés libres : la L-théanine, ou gamma-glutamyléthylamide, est l’acide aminé non protéique dominant et fournit une bonne part de l’azote soluble de la feuille jeune. Sa concentration baisse sous forte lumière et monte à l’ombre, relation que l’agronomie japonaise exploite dans les plantations couvertes.
- Caroténoïdes et dérivés volatils : lutéine, bêta-carotène et néoxanthine, dont la dégradation oxydative engendre des composés volatils des classes des ionones et des terpénoïdes qui composent le profil aromatique de la feuille transformée.
- Flavonols et acides phénoliques : glycosides de kaempférol, de myricétine et de quercétine, ainsi que les acides gallique, chlorogénique et coumaroylquinique.
- Méthylxanthines : la caféine est la principale et se situe entre deux et quatre pour cent du poids sec de la feuille jeune, accompagnée de théobromine et de théophylline en quantités bien moindres. Ces alcaloïdes puriques sont associés dans la littérature écologique à la défense contre l’herbivorie.
- Polyphénols de type flavan-3-ol : le groupe le plus abondant, représentant entre vingt et trente pour cent du poids sec de la feuille jeune. Il réunit le gallate d’épigallocatéchine, l’épigallocatéchine, le gallate d’épicatéchine et l’épicatéchine, ainsi que les catéchines non épimères correspondantes.
- Saponines triterpéniques : les théasaponines, concentrées surtout dans les graines et l’écorce racinaire.
Sur le plan sensoriel, cette composition explique le comportement du matériel. Les flavan-3-ols rendent compte de l’astringence et de l’amertume, la théanine de la sensation décrite comme umami, et les méthylxanthines apportent une amertume de fond. Le traitement après récolte modifie profondément le tableau. Lorsque la feuille est macérée et exposée à l’air, la polyphénol oxydase libérée par la rupture cellulaire convertit les flavan-3-ols en théaflavines et théarubigines, pigments allant de l’orangé au rouge. C’est le degré de cette conversion qui sépare les types de thé, et non une quelconque différence entre les plantes.
L’huile extraite des graines se compose majoritairement d’acide oléique, avec des fractions moindres d’acides linoléique, palmitique et stéarique, profil proche de celui de l’huile d’olive.
Une remarque de toxicité s’applique au présent et ne dépend d’aucun usage. Les feuilles et les résidus de feuille contiennent de la caféine et de la théobromine à des concentrations qui présentent un risque réel d’intoxication pour les chiens, les chats, les chevaux et les oiseaux domestiques, espèces qui métabolisent lentement les méthylxanthines. Le matériel végétal sec ou humide jeté dans un compost accessible aux animaux domestiques mérite prudence. Les théasaponines de la graine sont pareillement décrites comme irritantes et ichtyotoxiques.
Histoire et Ethnobotanique
La tradition chinoise attribuait la découverte de l’infusion à l’empereur mythique Shen Nung, situé vers 2737 avant l’ère commune, récit qui relève de la légende fondatrice et non du registre historique. La documentation vérifiable commence bien plus tard. Le Cha Jing, traité que Lu Yu composa entre 760 et 780 de l’ère commune sous la dynastie Tang, est le plus ancien texte entièrement consacré à la plante et à sa transformation, et l’on y trouve déjà des descriptions de culture, de cueillette et de classement des feuilles. La plante figurait aussi dans les compendiums de matière médicale chinois de la période, et l’essor de la consommation en Asie orientale a accompagné la diffusion du bouddhisme, des moines portant des graines au Japon au début du neuvième siècle.
Le contact européen fut tardif et indirect. Des marchands portugais et néerlandais apportèrent le produit en Europe au dix-septième siècle, mais la plante elle-même resta inconnue de la botanique occidentale pendant des décennies. Engelbert Kaempfer, médecin allemand au service de la Compagnie néerlandaise des Indes orientales, observa les cultures au Japon entre 1690 et 1692 et publia la première description européenne fondée sur l’observation directe. C’est sur ce matériel et sur des spécimens secs envoyés de Chine que Linné établit Thea sinensis dans la Species Plantarum, en 1753. Le transfert définitif dans Camellia, proposé par Otto Kuntze en 1887, clôtura plus d’un siècle d’instabilité nomenclaturale.
L’épisode aux conséquences agronomiques les plus lourdes se déroula dans le nord-est de l’Inde. Robert Bruce y consigna des populations sauvages à larges feuilles en Assam vers 1823, la confirmation botanique venant la décennie suivante, ce qui ouvrit la voie à l’établissement commercial de la culture dans la région à partir de 1839 sous la Compagnie britannique des Indes orientales. Peu d’années plus tard, entre 1848 et 1851, le botaniste écossais Robert Fortune achemina vers l’Inde, pour le compte de la même compagnie, des milliers de plants et de graines obtenus en Chine ainsi que des ouvriers qualifiés, opération qui brisa le monopole chinois et redessina la géographie mondiale de la culture.
Dans les sociétés d’origine, la plante déborda largement le champ agricole. Le rituel japonais du thé, le chanoyu, formalisé par Sen no Rikyu au seizième siècle, et les pratiques de préparation du sud de la Chine ont consolidé des formes de sociabilité qui ont traversé les siècles. Les feuilles de vieux pieds du Yunnan étaient pressées en blocs qui servirent de monnaie d’échange le long des routes commerciales reliant la région au Tibet.
Conservation
La Liste rouge de l’UICN classe Camellia sinensis en Données insuffisantes, catégorie DD. La contradiction apparente entre ce statut et l’omniprésence agricole de l’espèce s’explique simplement : l’évaluation porte sur les populations sauvages, mal délimitées et difficiles à distinguer d’anciennes plantations retournées à l’état subspontané, et non sur la surface cultivée, qui dépasse cinq millions d’hectares dans le monde. L’espèce ne figure pas aux annexes de la CITES.
Les préoccupations réelles de conservation sont d’un autre ordre. Le remplacement de plantations traditionnelles hétérogènes, issues de semis, par des monocultures clonales dérivées de quelques cultivars a fortement rétréci la base génétique de la culture, situation que les banques de germoplasme de Chine, d’Inde et du Japon cherchent à compenser en conservant d’anciennes accessions. Au Yunnan survivent des sujets de grande taille et d’âge estimé à plusieurs siècles, traités comme patrimoine biologique et en partie inclus dans des aires protégées, mais exposés à la pression de cueillette en raison de la valeur commerciale attachée à leurs feuilles. Le changement climatique affecte inégalement les régions productrices, avec un déplacement de la bande altitudinale favorable à Darjeeling, une irrégularité des saisons au Sri Lanka et une augmentation des événements extrêmes en Afrique de l’Est.
Le tableau est plus grave chez d’autres espèces du genre. Plusieurs camélias à fleurs jaunes du sud de la Chine et du nord du Vietnam, dont C. nitidissima, occupent des habitats restreints, subissent une cueillette illégale intense et relèvent de catégories de menace, et quelques espèces du genre sont déjà données pour éteintes à l’état sauvage.
Curiosités
- Georg Joseph Kamel, le jésuite honoré dans le nom du genre, mourut à Manille en 1706 sans avoir jamais vu un théier. L’hommage vint de Linné et n’eut aucun rapport avec l’espèce.
- Le partage mondial entre les formes « cha » et « te » reproduit la géographie du commerce. Les langues qui ont reçu le produit par voie terrestre ont adopté des variantes de « cha », tandis que celles approvisionnées par mer via le port d’Amoy ont adopté des variantes de « te ».
- Réduire la lumière qui atteint la plante dans les semaines précédant la récolte élève la teneur en théanine et abaisse celle en catéchines. La technique de couvrir les plantations soutient depuis des siècles la production des thés ombrés d’Uji.
- La cicadelle Empoasca onukii est un ravageur dans presque toute l’Asie productrice, mais à Taïwan son attaque est délibérément tolérée. La réponse de la plante à la piqûre modifie le profil des composés volatils de la feuille et donne l’oolong connu sous le nom d’Oriental Beauty.
- Fleurs et fruits de cycles différents cohabitent des mois durant sur le même rameau, car la capsule met près d’un an à mûrir et arrive à terme quand la plante fleurit déjà de nouveau.
- Le cultivar japonais Yabukita, sélectionné par Hikosaburo Sugiyama en 1908, occupe à lui seul plus de soixante-dix pour cent de la surface plantée du Japon, cas extrême du rétrécissement génétique qui inquiète les banques de germoplasme.
Avertissement: ce contenu est informatif et ne remplace pas l’avis d’un professionnel de santé. Consultez un médecin ou un phytothérapeute avant d’utiliser des plantes médicinales, notamment pendant la grossesse, l’allaitement ou en cas de prise de médicaments.
Références et Études Scientifiques
Voir les 10 Références Citées
Études Scientifiques Évaluées par les Pairs (4)
- DOI2012 Chen, L. ; Apostolides, Z. ; Chen, Z. M. (dir.). Global Tea Breeding: Achievements, Challenges and Perspectives. Springer, Berlin. 2012. ↗
- DOI2020 Hazra, A. ; Saha, P. ; Das, A. Genetic Diversity and Breeding of Tea (Camellia sinensis L.). Dans : Cash Crops. Springer, Cham. 2020. ↗
- DOI2014 Mondal, T. K. Breeding and Biotechnology of Tea and its Wild Species. Springer India, New Delhi. 2014. ↗
- DOI2014 Owuor, P. O. ; Kamau, D. M. The Conservation of Tea Genetic Resources. Plant Genetic Resources, 12(S1), S100-S104. 2014. ↗
Sources Institutionnelles (1)
- GOV2007 Ming, T. L. ; Bartholomew, B. Theaceae. Dans : Flora of China, vol. 12. Science Press et Missouri Botanical Garden Press, Pékin et Saint-Louis. 2007. ↗
Lectures Complémentaires (5)
- IPNI. International Plant Names Index : Camellia sinensis (L.) Kuntze, enregistrement 828548-1. Royal Botanic Gardens Kew, Harvard University Herbaria et Australian National Botanic Gardens. ↗
- Kuntze, O. Revisio Generum Plantarum, vol. 1. Arthur Felix, Leipzig. 1891. ↗
- Linné, C. Species Plantarum, vol. 1, p. 515. Laurentius Salvius, Stockholm. 1753. ↗
- POWO. Plants of the World Online : Camellia sinensis (L.) Kuntze. Royal Botanic Gardens, Kew. ↗
- Royal Botanic Gardens, Kew. Tea Plant : Camellia sinensis. Kew Science, Plant Profiles. ↗