Hamamelis virginiana est un grand arbuste caduc, parfois un petit arbre à troncs multiples, qui occupe le sous-bois des forêts décidues de l’est de l’Amérique du Nord. Il appartient aux Hamamelidaceae, famille à répartition morcelée entre l’Asie tempérée, l’Amérique du Nord, l’Afrique australe et l’Australie, qui compte une trentaine de genres et un peu moins d’une centaine d’espèces ligneuses. Au sein de cet ensemble, le genre Hamamelis est petit et ancien, et c’est l’espèce nord-américaine qui couvre la plus vaste aire continue.
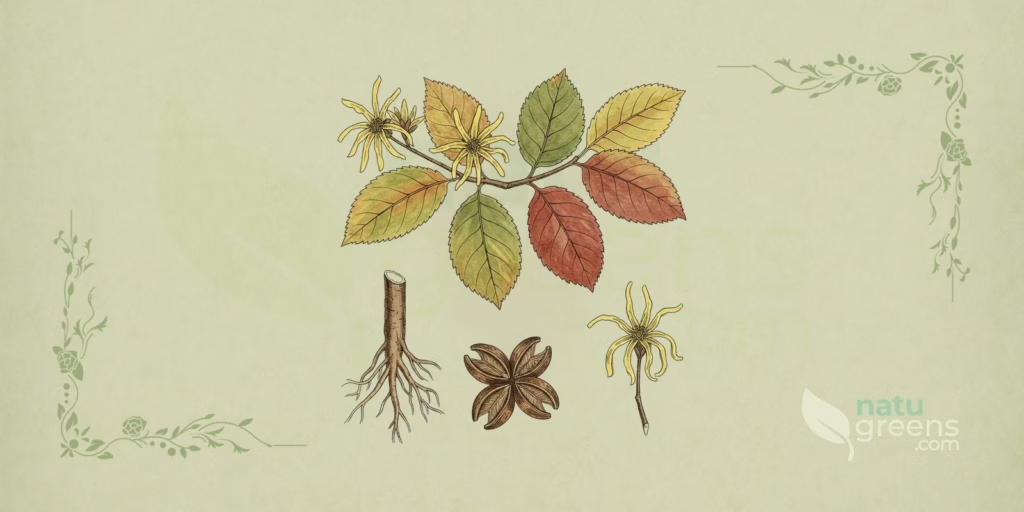
Ce qui rend la plante remarquable n’est ni sa taille ni son feuillage, mais son calendrier. Alors que le reste du sous-bois tempéré entre en dormance et perd ses feuilles, elle ouvre des fleurs jaunes aux pétales en rubans entre octobre et décembre, à un moment où presque aucun autre ligneux de la même forêt n’est en anthèse. Le cycle reproducteur s’étale sur près d’une année entière, si bien que les capsules mûres de la saison précédente pendent le plus souvent aux rameaux mêmes qui portent les fleurs nouvelles. Cette coexistence de la fleur et du fruit est à l’origine du nom du genre et constitue la clé d’identification la plus fiable sur le terrain.
Cette page rassemble la fiche botanique de l’espèce: classification formelle validée dans l’IPNI et dans POWO, description morphologique chiffrée, répartition naturelle, exigences de culture, phénologie, distinction d’avec ses congénères et d’avec les sosies d’autres familles, composition phytochimique descriptive, documentation historique et ethnobotanique, et situation de conservation.
Taxonomie
L’espèce a été décrite par Linné en 1753, dans le premier volume du Species Plantarum, et le nom est resté accepté sans modification depuis lors. La classification suit la circonscription actuelle de l’ordre des Saxifragales, dans lequel les Hamamelidaceae ont été replacées à la suite des travaux de phylogénie moléculaire qui ont démantelé l’ancien ordre des Hamamelidales.
- Règne: Plantae
- Division: Tracheophyta
- Classe: Magnoliopsida
- Ordre: Saxifragales
- Famille: Hamamelidaceae
- Sous-famille: Hamamelidoideae
- Tribu: Hamamelideae
- Genre: Hamamelis Gronov. ex L.
- Espèce: Hamamelis virginiana L., Sp. Pl. 1: 124 (1753)
L’IPNI enregistre le protologue dans le Species Plantarum 1: 124, daté de 1753, et POWO reconnaît l’espèce ainsi que deux taxons infraspécifiques acceptés: la variété type, Hamamelis virginiana var. virginiana, répandue sur toute l’aire nord-américaine, et Hamamelis virginiana var. mexicana (Standl.) C.Lane, cantonnée aux sierras de Coahuila et de Nuevo León, dans le nord-est du Mexique. Cette dernière avait d’abord été publiée comme espèce autonome, Hamamelis mexicana Standl., en 1937, et une partie de la littérature la traite encore à ce rang.
Pour la synonymie, POWO retient Trilopus virginiana (L.) Raf., de 1838, comme synonyme homotypique. Plusieurs noms du dix-neuvième siècle et du début du vingtième ont circulé en lien avec l’espèce ou avec ses formes, parmi lesquels Hamamelis androgyna Walter, Hamamelis corylifolia Moench, Hamamelis dioica Walter, Hamamelis macrophylla Pursh et Lomilis ciliata Raf. S’y ajoutent des variétés et des formes décrites par des auteurs nord-américains, comme H. virginiana var. angustifolia Nieuwl., H. virginiana var. orbiculata Nieuwl., H. virginiana f. parvifolia Fernald et H. virginiana f. rubescens Rehder, aujourd’hui sans reconnaissance dans les référentiels de référence.
Le nom de genre vient du grec ancien hamamelis, terme que les auteurs classiques appliquaient à un arbre fruitier d’identité incertaine, sans doute un néflier ou un sorbier. La lecture courante décompose le mot en hama, ensemble, et melon, pomme ou fruit d’arbre, par allusion à la présence simultanée de fleurs et de fruits sur le même rameau, trait que l’espèce américaine affiche de façon spectaculaire. L’épithète virginiana renvoie à la Virginie coloniale, région d’où sont parties les premières récoltes envoyées en Europe.
Description Morphologique
Grand arbuste caduc à petit arbre, atteignant 3 à 5 mètres de hauteur dans la plupart des populations et jusqu’à 8 mètres en situation favorable, avec des relevés exceptionnels proches de 10 mètres. Le tronc est court et presque toujours multiple, conséquence de la reprise vigoureuse depuis la souche, ce qui produit des touffes ouvertes au contour irrégulier. La ramification alterne en zigzag, avec des rameaux ascendants dans la partie interne et horizontaux aux extrémités, dessinant une couronne aérée qui laisse passer beaucoup de lumière. L’écorce est lisse et grise à brune chez les sujets jeunes, puis devient légèrement écailleuse et fissurée avec l’âge; les jeunes rameaux portent une pubescence rouille qui disparaît la deuxième année. La croissance est lente, de l’ordre de 10 à 20 centimètres de hauteur par an, et des sujets centenaires sont documentés dans les forêts mûres.
Feuilles
Les feuilles sont alternes, disposées sur deux rangs, simples et caduques, avec des stipules caduques qui laissent des cicatrices visibles. Le limbe est obovale à largement elliptique, de 7 à 15 centimètres de long sur 5 à 10 de large, à sommet arrondi ou obtus. La base est le caractère le plus utile pour la reconnaissance: nettement asymétrique, un côté s’insérant plus bas que l’autre sur le pétiole, et souvent subcordée. La marge est ondulée-crénelée, à dents larges et arrondies qui donnent à la feuille un contour sinueux. La nervation est pennée, avec 5 à 7 paires de nervures secondaires qui courent parallèlement jusqu’à la marge, imprimées sur la face supérieure et saillantes sur l’inférieure. La face adaxiale est vert foncé et mate, tandis que l’abaxiale, plus claire, porte des poils étoilés sur les nervures. Le pétiole mesure de 5 à 15 millimètres et il est poilu. À l’automne le feuillage prend une teinte jaune d’or uniforme avant la chute.
Fleurs
Les fleurs se rassemblent en glomérules axillaires courts, de deux à quatre par axe, répartis le long des rameaux de l’année. Chaque fleur possède quatre sépales courts et persistants, jaune verdâtre sur la face interne et couverts de poils rouille sur l’externe, et quatre pétales linéaires, en forme de ruban étroit, de 10 à 20 millimètres. La couleur va du jaune pâle au jaune vif, rarement à base rougeâtre. Dans le bouton les pétales restent enroulés en spirale et se déploient à mesure que la fleur s’ouvre. L’androcée compte quatre étamines courtes, à anthères s’ouvrant par des valves articulées, alternant avec quatre staminodes nettement dilatés qui font office de structures nectarifères. L’ovaire est bicarpellé et partiellement infère, surmonté de deux styles courts et divergents. Le parfum est ténu et sucré, surtout perceptible aux heures les plus chaudes de la journée. Lorsque la température chute, les pétales s’enroulent de nouveau sur eux-mêmes, puis se déroulent quand l’air se réchauffe, un cycle qui peut se répéter bien des fois au fil des semaines de floraison.
Fruits et Graines
Le fruit est une capsule ligneuse ovoïde de 10 à 14 millimètres, pubescente, enveloppée à la base par l’hypanthe persistant et couronnée de deux becs cornus qui correspondent aux styles desséchés. La maturation demande environ douze mois à compter de l’anthèse, ce qui explique la présence simultanée de fleurs nouvelles et de capsules mûres sur le même rameau. L’ouverture est explosive: la déshydratation différentielle des couches internes de l’endocarpe crée une tension croissante jusqu’à ce que les valves se séparent brusquement et projettent les graines. Chaque capsule contient deux graines oblongues de 5 à 9 millimètres, noires et luisantes, à tégument dur et à albumen huileux. Les projections atteignent plusieurs mètres, avec des relevés de terrain proches de neuf mètres depuis le pied mère.
Racine et Tige
Le système racinaire est diffus, avec une racine pivotante peu marquée et un fort développement latéral, concentré dans les 60 premiers centimètres du profil. Cette organisation s’accorde au sol forestier à litière épaisse dans lequel l’espèce pousse naturellement. La base de la tige a une grande aptitude à émettre des rejets adventifs, aussi bien depuis le collet que depuis les racines superficielles, et c’est ce caractère qui soutient l’architecture en touffe et la reprise rapide après une coupe ou un dommage mécanique. Les rameaux de premier ordre ont une moelle pleine et des lenticelles claires, et les bourgeons sont nus, dépourvus d’écailles protectrices, exposés et seulement revêtus de poils.
Répartition et Habitat
L’espèce est indigène de l’est de l’Amérique du Nord. Au Canada elle se rencontre au Nouveau-Brunswick, en Nouvelle-Écosse, en Ontario et au Québec. Aux États-Unis l’aire couvre pratiquement tout le territoire à l’est des Grandes Plaines, du Maine et du Minnesota au nord jusqu’à la Floride, à l’est du Texas et à la Louisiane au sud, en passant par l’Alabama, l’Arkansas, la Caroline du Nord, la Caroline du Sud, la Géorgie, l’Illinois, l’Indiana, l’Iowa, le Kentucky, le Michigan, le Mississippi, le Missouri, l’Ohio, l’Oklahoma, la Pennsylvanie, le Tennessee, la Virginie, la Virginie-Occidentale et le Wisconsin, sans compter les petits États du nord-est. Au Mexique la variété mexicana occupe des taches isolées de forêt de montagne au Coahuila et au Nuevo León, à l’extrême sud de la répartition du genre en Amérique.
L’habitat type est le sous-bois des forêts décidues et mixtes dominées par les érables, les bouleaux, les chênes et les hêtres. La plante se rencontre souvent sur les versants de mi-ombre, dans les ravins rocheux, en bordure boisée des ruisseaux et, dans le sud-est, sur les buttes sableuses de végétation sempervirente appelées hammocks. L’amplitude altitudinale va du niveau de la mer à environ 1 500 mètres. Elle préfère les sols acides à légèrement acides, frais, profonds et riches en matière organique, avec une bonne couche de litière, mais elle tolère des profils plus secs en position de versant. Le climat de l’aire indigène est tempéré continental à tempéré humide, avec des hivers rigoureux, et l’espèce supporte des températures très basses sans dommage apparent pour ses tissus ligneux.
Hors de son aire d’origine, la plante est cultivée depuis plus de deux siècles dans les collections botaniques et les jardins d’Europe et de l’est de l’Asie, sans qu’aucun comportement envahissant ait été documenté. La croissance lente, la dépendance à un sol forestier acide et la dispersion à courte portée limitent sa capacité à gagner les milieux naturels.
Culture
La multiplication par semis exige de lever une double dormance. Les capsules doivent être récoltées avant la déhiscence explosive, au début de l’automne, et les graines passent par une période chaude suivie d’une période froide avant de germer, si bien que la levée n’intervient en général qu’au deuxième printemps après le semis. Les plants poussent lentement et dépassent rarement le demi-mètre la première année. Le bouturage de bois semi-aoûté prélevé au début de l’été fonctionne, mais avec des taux d’enracinement irréguliers. Pour les cultivars ornementaux, surtout ceux de l’hybride Hamamelis × intermedia, le greffage sur porte-greffe de H. virginiana est la méthode standard des pépinières, qui tire parti de la vigueur et de la rusticité de l’espèce américaine.
Quant aux exigences, la plante se développe aussi bien à mi-ombre qu’en plein soleil, mais elle fleurit plus densément lorsqu’elle reçoit au moins quelques heures de lumière directe. Le sol doit être acide, dans une fourchette de pH de 4,5 à 6,5, frais, perméable et bien pourvu en matière organique. Les substrats calcaires et l’engorgement prolongé sont les deux conditions que l’espèce ne tolère pas. La pluviométrie convenable se situe entre 800 et 1 500 millimètres par an, bien répartis, et un paillis de feuilles ou d’écorce aide à maintenir l’humidité et l’acidité du profil. L’espacement à la plantation doit tenir compte de couronnes adultes de plusieurs mètres de diamètre. La taille se limite au retrait des rameaux morts ou entrecroisés à la fin de l’hiver, car les interventions sévères défigurent l’architecture naturelle en touffe.
Parmi les organismes associés, le plus visible est le puceron Hormaphis hamamelidis, qui provoque des galles coniques sur la face supérieure des feuilles, voyantes mais sans effet notable sur la vigueur de la plante. Des chenilles défoliatrices comme Alsophila pometaria et Malacosoma americanum apparaissent de façon sporadique. Du côté des maladies, on relève l’oïdium à la fin de l’été, des taches foliaires dues à Phyllosticta hamamelidis et le pourridié à Armillaria mellea sur les sols mal drainés ou chez les plantes affaiblies.
La floraison commence entre la sixième et la dixième année chez les plants de semis, et plus tôt chez les sujets greffés. Dans la filière nord-américaine, rameaux et écorce sont récoltés pendant le repos végétatif, avec rotation des parcelles et régénération par rejets, une pratique bien établie dans l’État du Connecticut, qui concentre la transformation industrielle de l’espèce depuis le dix-neuvième siècle.
Phénologie
La floraison se produit en automne et au début de l’hiver de l’hémisphère nord, concentrée entre octobre et novembre et prolongée jusqu’en décembre dans les populations méridionales. Aux latitudes les plus hautes, les premières fleurs peuvent s’ouvrir dès septembre, quand le feuillage commence à jaunir. Ce décalage par rapport au calendrier des autres ligneux de la même forêt est le trait phénologique qui définit l’espèce, et l’anthèse se prolonge souvent sur plusieurs semaines parce que les pétales s’enroulent et se protègent pendant les vagues de froid, puis se redéploient quand la température remonte.
La pollinisation est assurée par des insectes actifs en fin de saison, au moment où l’offre florale est minimale. Des diptères de plusieurs familles et des microlépidoptères figurent parmi les visiteurs relevés, et les études sur la pollinisation automnale en forêt tempérée attribuent une partie des visites nocturnes à des noctuelles capables d’élever leur température corporelle par frisson musculaire avant l’envol. La quantité de nectar par fleur est faible, mais l’absence presque totale de concurrence florale à cette période compense la modestie de la récompense.
La fructification s’achève l’automne suivant. Après la fécondation, le développement du fruit entre dans une phase lente pendant l’hiver, s’accélère au printemps et en été et culmine avec la maturation de la capsule environ douze mois après l’ouverture de la fleur. La dispersion primaire est balistique, les graines étant projetées à plusieurs mètres. Vient ensuite une étape secondaire assurée par les fourmis, attirées par le tissu nutritif de la graine, ainsi que par de petits rongeurs et des oiseaux granivores qui transportent et enfouissent une partie du matériel. La germination, comme on l’a déjà signalé, est retardée et se produit en général à la deuxième saison favorable.
Espèces Apparentées du Genre Hamamelis et Confusions
Le genre Hamamelis ne compte que peu d’espèces, avec une répartition disjointe entre l’Amérique du Nord et l’est de l’Asie. Les référentiels reconnaissent H. japonica Siebold & Zucc., du Japon, H. mollis Oliv., du centre et du sud de la Chine, H. vernalis Sarg., du centre sud des États-Unis, et H. virginiana elle-même. À ce noyau s’ajoute H. ovalis S.W.Leonard, décrite en 2006 à partir de populations du sud du Mississippi et encore traitée de manière variable selon les bases taxonomiques. L’hybride horticole Hamamelis × intermedia Rehder, croisement entre les deux espèces asiatiques, est à l’origine de la plupart des cultivars ornementaux en circulation.
La confusion la plus fréquente sur le terrain concerne H. vernalis, et l’époque de floraison tranche la question dans la majorité des cas: l’espèce des Ozarks ouvre ses fleurs entre janvier et mars, à la fin de l’hiver, alors que H. virginiana fleurit en automne. Les pétales de H. vernalis sont en outre bien plus courts, souvent rougeâtres ou orangés à la base, et ses feuilles sont d’ordinaire glauques en dessous. H. ovalis se distingue par des feuilles plus grandes et plus arrondies et par des pétales rouge pourpre, uniques dans le genre, mais sa présence naturelle se limite à un petit secteur du sud du Mississippi. Les deux espèces asiatiques fleurissent en hiver et, sur le continent américain, ne se rencontrent qu’en culture.
Hors du genre, le sosie classique est Corylus americana, le noisetier d’Amérique, dont les feuilles reprennent le contour obovale, la marge crénelée et la base asymétrique. La distinction est immédiate dès que l’on regarde les structures reproductrices: le noisetier produit des chatons mâles pendants à la fin de l’hiver et des fruits enveloppés d’une cupule foliacée, jamais des fleurs jaunes à pétales linéaires. Un autre membre de la même famille, le genre Fothergilla, présente lui aussi un feuillage voisin, mais ses inflorescences sont des épis denses et blanchâtres formés d’étamines seules, sans pétales, et elles apparaissent au printemps. En pratique, l’association d’une base foliaire oblique, de dents larges et arrondies sur la marge et de fleurs jaunes à quatre pétales en ruban en automne est diagnostique et ne se retrouve chez aucun autre ligneux de la région.
Phytochimie
Le profil chimique de l’espèce est dominé par les composés phénoliques, les tanins hydrolysables venant en tête. Le marqueur caractéristique est l’hamamélitanin, un ester galloylé de l’hamamélose qui donne son nom à la plante dans la littérature phytochimique, accompagné de galloyl-hamaméloses à divers degrés de substitution et de gallotanins de glucose portant de cinq à dix unités d’acide gallique. La fraction condensée est constituée de proanthocyanidines, avec des procyanidines et des prodelphinidines bâties sur des unités de catéchine, d’épicatéchine et d’épigallocatéchine, y compris des dérivés galloylés et les esters benzoïques décrits dans l’écorce. Les analyses de composition situent les tanins hydrolysables aux alentours des quatre cinquièmes des polyphénols totaux, le reste revenant aux proanthocyanidines.
La répartition de ces composés varie beaucoup d’un organe à l’autre, et c’est là l’une des particularités les mieux documentées de l’espèce. Les dosages par chromatographie liquide montrent une concentration d’hamamélitanin dans l’écorce très supérieure à celle des feuilles et à celle de la tige, de l’ordre de dizaines de fois pour les premières et de près d’une centaine de fois pour la seconde. Les teneurs en tanins totaux rapportées se situent entre 8 et 12 pour cent dans l’écorce et entre 3 et 10 pour cent dans les feuilles, avec des variations selon la période de récolte et la provenance du matériel.
Aux côtés des tanins figurent des flavonoïdes glycosylés, parmi lesquels l’astragaline et d’autres dérivés du kaempférol, l’isoquercitrine, la quercitrine et la myricétine, cette dernière plus liée aux feuilles. Des acides phénoliques libres et conjugués complètent le tableau, l’acide gallique et les acides caféoylquiniques étant les plus souvent cités. La fraction volatile est réduite et comprend l’hexénol et d’autres composés de feuille verte, l’eugénol et des traces de safrol. Un contraste chimique mérite d’être noté: les tanins n’étant pas volatils, le distillat obtenu par entraînement à la vapeur à partir des rameaux n’en contient pratiquement pas, à la différence des extraits hydroalcooliques issus de l’écorce, dans lesquels la fraction tannique est majoritaire.
Histoire et Ethnobotanique
La plante occupe une place de premier plan dans la documentation ethnographique de l’est nord-américain. Les relevés des dix-huitième et dix-neuvième siècles attestent que des peuples comme les Iroquois, les Mohegan, les Osage et les Potawatomi employaient l’écorce et les feuilles en compresses et en bains appliqués sur la peau, et que le bois servait à d’autres usages domestiques. Les colons anglais ont intégré une partie de ces pratiques à leur propre répertoire au cours de la période coloniale, et c’est de ce transfert que naît la présence de l’espèce dans la littérature populaire nord-américaine.
Le nom anglais witch hazel, que l’on rend parfois littéralement par noisetier des sorcières, a une origine moins pittoresque qu’il n’y paraît. Le premier élément vient du moyen anglais wiche ou wych, qui signifie souple et s’appliquait aux arbres à rameaux flexibles, et non du mot désignant la sorcière, avec lequel il a seulement convergé par dérive phonétique. Le second élément renvoie à la ressemblance du feuillage avec celui du noisetier d’Europe. La souplesse des rameaux a conduit les colons anglais à s’en servir comme baguettes de sourcier pour chercher l’eau souterraine, pratique venue d’Europe et transplantée sur le nouveau territoire, ce qui a renforcé l’association erronée avec la sorcellerie.
Linné a formalisé le nom en 1753 à partir de matériel provenant de Virginie, après avoir eu recours à l’ouvrage de Gronovius sur la flore de cette colonie. Un siècle plus tard, dans les années 1840, la distillation à l’échelle commerciale débute au Connecticut, associée au nom de Thomas Newton Dickinson, et l’État en vient à concentrer la production mondiale du distillat, position qu’il conserve depuis. Au cours du vingtième siècle, le produit a été inscrit dans les recueils pharmaceutiques officiels de plusieurs pays, ce qui a consolidé l’espèce comme l’une des rares plantes ligneuses nord-américaines dotée d’une filière industrielle propre et ininterrompue depuis plus d’un siècle et demi.
La floraison hors saison a également laissé sa trace dans les lettres. Henry David Thoreau a noté à plusieurs reprises dans ses journaux la rencontre des fleurs jaunes en novembre, et l’image de la plante qui fleurit quand la forêt s’est déjà retirée est devenue récurrente dans l’écriture naturaliste de la Nouvelle-Angleterre.
Conservation
La Liste rouge de l’UICN classe Hamamelis virginiana dans la catégorie Préoccupation mineure, sigle LC, au terme d’une évaluation qui reconnaît l’étendue de sa répartition, son abondance dans les communautés de sous-bois et l’absence de déclin démographique significatif. L’espèce ne figure dans aucune des annexes de la CITES et n’apparaît sur aucune liste nationale d’espèces menacées dans les pays où elle pousse.
Les pressions documentées sont locales et indirectes. La plus notable est l’abroutissement intense par le cerf de Virginie, Odocoileus virginianus, dont les populations ont fortement augmenté dans une grande partie de l’est des États-Unis et qui empêche la régénération du sous-bois ligneux dans les forêts fragmentées. La conversion de forêt mûre en usage agricole ou urbain réduit l’habitat de prédilection, et la récolte commerciale de rameaux exerce une pression localisée, même si elle se pratique en régime de rotation qui s’appuie sur la forte capacité de rejet de la plante.
La situation est tout autre pour une congénère nord-américaine: H. ovalis, restreinte à quelques populations du sud du Mississippi, a une aire d’occupation minuscule et se voit traitée comme un taxon préoccupant dans les inventaires régionaux de flore rare du sud-est des États-Unis.
Curiosités
- Des fleurs fraîchement ouvertes et des capsules mûres de la saison précédente occupent le même rameau au même moment, situation peu commune chez les ligneux tempérés et origine probable du nom du genre, qui porte l’idée du fruit et de la fleur réunis.
- L’ouverture de la capsule s’entend. Les récolteurs qui conservent des fruits mûrs dans des sacs de papier rapportent des claquements et le bruit des graines heurtant les parois du récipient pendant plusieurs jours.
- Les pétales en ruban jouent le rôle d’un mécanisme réversible de protection contre le froid: ils s’enroulent sur eux-mêmes quand la température baisse et se redéploient à la chaleur, ce qui permet à une même fleur de rester viable des semaines durant en plein automne avancé.
- Le puceron Hormaphis hamamelidis provoque des galles coniques sur la face supérieure des feuilles et, dans les populations de basse altitude, alterne ses générations entre l’hamamélis et le bouleau noir, Betula nigra, avant de revenir à sa plante d’origine à la fin de l’été.
- La répartition du genre, partagée entre l’est de l’Asie et l’est de l’Amérique du Nord, reproduit un schéma que l’on retrouve aussi chez Liquidambar et Liriodendron et qui remonte à des flores continentales plus continues du Tertiaire, hypothèse étayée par les analyses phylogénétiques et biogéographiques du groupe.
Avertissement: ce contenu est informatif et ne remplace pas l’avis d’un professionnel de santé. Consultez un médecin ou un phytothérapeute avant d’utiliser des plantes médicinales, notamment pendant la grossesse, l’allaitement ou en cas de prise de médicaments.
Références et Études Scientifiques
Voir les 9 Références Citées
Études Scientifiques Évaluées par les Pairs (2)
- DOI1988 Vennat, B., Pourrat, H., Pouget, M. P., Gross, D., Pourrat, A. Tannins from Hamamelis virginiana: identification of proanthocyanidins and hamamelitannin quantification in leaf, bark, and stem extracts. Planta Medica, 54(5), 454-457. 1988. ↗
- DOI2010 Xie, L., Yi, T. S., Li, R., Li, D. Z., Wen, J. Evolution and biogeographic diversification of the witch-hazel genus (Hamamelis L., Hamamelidaceae) in the Northern Hemisphere. Molecular Phylogenetics and Evolution, 56(2), 675-689. 2010. ↗
Lectures Complémentaires (7)
- 1997 Flora of North America Editorial Committee. Hamamelis virginiana L. Flora of North America North of Mexico, vol. 3. Oxford University Press, New York. 1997.
- International Plant Names Index. Hamamelis virginiana L., Sp. Pl. 1: 124 (1753). Royal Botanic Gardens, Kew. ↗
- IUCN. Hamamelis virginiana. The IUCN Red List of Threatened Species. Évaluation en catégorie Préoccupation mineure (LC).
- 2006 Leonard, S. W. A new species of witch-hazel (Hamamelis: Hamamelidaceae) apparently endemic to southern Mississippi. Sida, 22(2), 849-856. 2006.
- Linnaeus, C. Species Plantarum, vol. 1, p. 124. Laurentius Salvius, Stockholm. 1753.
- Plants of the World Online. Hamamelis virginiana L. Royal Botanic Gardens, Kew. ↗
- Standley, P. C. Studies of American plants. Publications of the Field Museum of Natural History, Botanical Series, 17, 192. 1937.